追悼 利根川進先生抗体遺伝子の多様化メカニズムの解明
東京大学名誉教授
発行日:2026年10月25日Published: October 25, 2026
© 2026 公益社団法人日本生化学会© 2026 The Japanese Biochemical Society
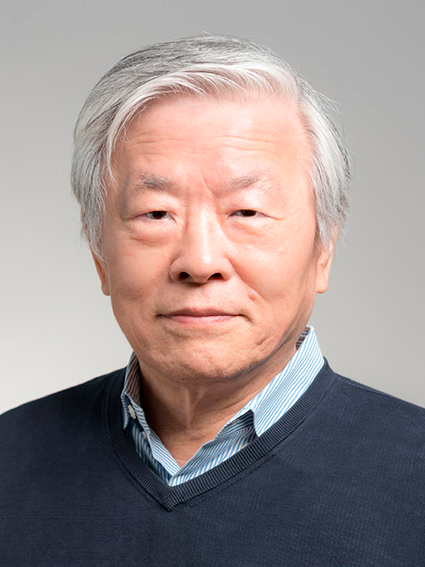
2026年7月11日,利根川進先生が86歳で亡くなられました.未だ現役の神経科学者として活躍して居られ,これからが仕上げという時だったので,突然の訃報に驚いて居ります.私は先生が大学院時代を過ごされたカリフォルニア大学San Diego校(UCSD)のBonner Hallで1977年に御会いする機会があり,それが縁でスイスのBasel免疫学研究所(BII)で抗体遺伝子の多様化の研究を御一緒する事となりました1‒4).その頃は未だ抗体タンパク質のアミノ酸配列のデータを基に,高頻度突然変異で抗体の多様化が説明出来るのではないかとか,N末端側の可変(V:variable)領域とC末端側の定常(C: constant)領域が異なる遺伝子によってコードされているのではないか(Dreyer & Bennet hypothesis5))等と言われて居りました.しかし実験的には未だ,抗体mRNAのDNAに対するhybridization kineticsを基に抗体遺伝子の数を予想している時代でした.
その頃,利根川グループではλIの軽鎖遺伝子をいち早くクローニングして,V遺伝子とC遺伝子がリンパ細胞の分化過程で持ち寄られる事を明らかにしていましたが6),遺伝子の多様化や組み換えメカニズムについては,依然謎のままでした.当時研究室で使っていたλIのシステムはV遺伝子が1個であり高頻度突然変異の解析には適していたものの,遺伝子組み換えによる多様化メカニズムの解明には向いていませんでした.そこで目を付けたのがもう一つの軽鎖システムであるκ遺伝子でした.私は当時sabbaticalで研究所に滞在していたMartin Weigert博士からVκ21ファミリーの軽鎖を発現する多発性骨髄腫のサンプルを多数貰い受け,それらの抗体遺伝子のDNA配列を詳しく調べました.ここでκ軽鎖のシステムでは,1個のCκ遺伝子の少し上流に五つのJセグメント(V領域とC領域をjoinさせる遺伝子断片)が見つかり,その更に上流に多数のVκ遺伝子がクラスターをなして存在する事が判明しました.これらの遺伝子解析データをアミノ酸の配列データと比較する事によって,多数のVκ遺伝子と複数のJκセグメントがランダムに組み合わされて様々なV‒J配列が出来るというCombinatorial Diversification(組み合わせによる多様化)の概念が出てきたのです.
ここでは更にもう一つ予期せぬ発見がありました.即ち,同じ組み合わせでVκ遺伝子とJκセグメントが繋がる場合でも,リンパ細胞毎にその結合部位の配列に微妙な違いが出るのです.私は最初塩基配列の読み違いではないかとX線フイルムを確認しましたが,間違いではありませんでした.この組み換え位置に生じる塩基配列の違いは,DNAの切断端にExo-nucleaseが働いて欠失が起こる為であり,更に重鎖ではTerminal deoxy-nucleotidyl Transferase(TdT)による切断端へのヌクレオチドの付加が生じる事も判明し,Junctional Diversification(組み換え位置に生じる多様化)というもう一つの多様化要因が示唆されたのでした.重鎖遺伝子系ではその後,V遺伝子群とJクラスターとの間に多数の短い遺伝子片,D(diversity)セグメントが発見され,重鎖では超可変領域Ⅲの多様性が飛躍的に増す事が判明しました.こうして軽鎖のV×Jと重鎖のV×D×Jの掛け合わせに加え,抗体が軽鎖と重鎖の組み合わせから成る事を考慮すると,計算上106の多様性が説明出来る事になります.これに組み換え位置に生じるヌクレオチドの欠失や付加による多様化を加えると,少なくとも更に2桁の多様性を抗体に付与する事が可能であるという事がわかりました.
こうした中,DNA組み換えメカニズムについても大きな進展があり,V,D,Jの各遺伝子断片の組み換え位置にCACTGTGとGGTTTTTGTという組み換えシグナル配列(Recombination Signal Sequence:RSS)が発見され,二つの配列を隔てるスペーサーが常に12 bpもしくは23 bpである事が判明しました.更に興味深い事に,V‒(D)‒J組み換えはヘテロなスペーサーの組み合わせ(12-RSS vs. 23-RSS)でしか起こらない事がわかり,T細胞受容体のα,β,γ,δの遺伝子系にも普遍的に適用される12/23の組み換えルールが確立したのです.ここでこの組み換え反応を進化学的に見ると,祖先型V遺伝子の3′側に入り込んだトランスポゾンがJセグメントやDセグメントをV遺伝子から切り離し,各遺伝子断片が遺伝子重複によって増幅した後,その挿入の逆反応である切り出し反応が今のV-(D)-J組み換えに利用されているという事も見えてきたのです.
こうして抗体遺伝子の体細胞組み換えと多様性創出のメカニズムが解明された訳ですが,今から振り返ってみますと我々の知恵で謎が解き明かされたというよりも,解くべき問いを立てそれに向き合う中で人の知恵を超えた新たな事実が我々の前に姿を現したというのが率直な感想でした.こうしてあっという間のBaselでの4年間でしたが,抗体遺伝子の多様化の問題が一区切りついて利根川先生はBostonのMITに,私はカリフォルニア大学Berkeley校(UCB)に移る事となりました.惜しくもライン川沿いにあったBaselの免疫学研究所は2001年に閉鎖となり,今となっては兵どもが夢の跡となってしまいました.利根川先生はMITに移られた後,T細胞受容体の研究を精力的に行い更に神経科学に研究の分野を移して記憶メカニズムの解明にチャレンジされました(詳細は御本人が書かれたJT生命誌館のScientist Library 79号7)を参照).
こうして振り返ってみますと,利根川先生は常に次のQuestionを探し新しい遺伝子操作技術を取り入れて問題を遺伝子から攻めるという,分子遺伝学の創始者で理論物理学者だったMax Delbrück博士の流れを汲む正統派の分子生物学者であったと思います.最近では記憶・学習のメカニズムの解明にエングラムという概念を導入し神経科学に新しい道を拓き,二つ目のノーベル賞をと期待されていましたが惜しくも亡くなられ残念でなりません.私がBaselに移った頃の先生はまだ30代でいつも黒のセーターに黒のズボン,スリムな体型の精悍なイメージで小さなフォルクスワーゲンに乗って居られました.夜中3時頃まで私の実験室で議論をしていて,これで我々はJacob & Monod8)を超えたと二人で大いに盛り上がったのも昨日の事の様に思い出されます.先生は京都からSan Diegoに出て以来60 年余り,正に疾風怒涛,研究一筋の人生を送られました.最後に御疲れ様と申し上げると共に,先生の御冥福を御祈りして筆を擱きたいと思います.
東京大学名誉教授 坂野 仁
1) Sakano, H., Rogers, J.H., Hüppi, K., Brack, C., Traunecker, A., Maki, R., Wall, R., & Tonegawa, S. (1979) Domains and the hinge region of an immunoglobulin heavy chain are encoded in separate DNA segments. Nature, 277, 627‒633.
2) Sakano, H., Hüppi, K., Heinrich, G., & Tonegawa, S. (1979) Sequences at the somatic recombination sites of immunoglobulin light-chain genes. Nature, 280, 288‒294.
3) Sakano, H., Maki, R., Kurosawa, Y., Roeder, W., & Tonegawa, S. (1980) Two types of somatic recombination are necessary for the generation of complete immunoglobulin heavy-chain genes. Nature, 286, 676‒683.
4) Sakano, H., Kurosawa, Y., Weigert, M., & Tonegawa, S. (1981) Identification and nucleotide sequence of a diversity DNA segment (D) of immunoglobulin heavy-chain genes. Nature, 290, 562‒565.
5) Brack, C., Hirama, M., Lenhard-Schuller, R., & Tonegawa, S. (1978) A complete immunoglobulin gene is created by somatic recombination. Cell, 15, 1‒14.
6) 利根川進 (2014) 生命を分子の言葉で語るために(Scientist Library), 生命誌, 79号(https://brh.co.jp/s_library/interview/79/)
7) Dreyer, W.J. & Bennett, J.C. (1965) The molecular basis of antibody formation: a paradox. Proc. Natl. Acad. Sci. USA., 54, 864‒869.
8) Jacob, F. & Monod, J. (1961) Genetic regulatory mechanisms in the synthesis of proteins. J. Mol. Biol., 3, 318‒356.
This page was created on 2026-10-19T10:28:40.131+09:00
This page was last modified on
このサイトは(株)国際文献社によって運用されています。