光合成生物は,進化の過程で複数回の共生を経て多様な系統へと広がってきた.その起点となったのが,一次共生である.原始真核生物がシアノバクテリアを細胞内に取り込み,共生関係を築いた結果,現在の葉緑体が誕生した1).この一次共生によって生まれた系統の一つが緑色植物であり,その後「緑藻植物」と「ストレプト植物」という二つの大きな系統に分かれた.両者は姉妹群の関係にあり,この分岐は約10~12億年前に遡ると考えられている2, 3).
ストレプト植物の系統では陸上植物が進化した.被子植物の概日時計モデル生物であるシロイヌナズナがこの系統に属する.一方,緑藻植物は主に海洋や淡水に分布する光合成真核生物群であり,その中には概日時計研究に利用されてきた種が複数含まれている.現生の緑藻植物の多くはUTCクレード(Ulvophyceae–Trebouxiophyceae–Chlorophyceae)に属し,Chlorophyceae(緑藻綱)に分類されるクラミドモナスは淡水性の単細胞緑藻で,遺伝子操作技術やゲノム情報などが整備されたモデル生物である.Ulvophyceae(アオサ藻綱)に属するカサノリは,数センチメートルに達する巨大単細胞緑藻であり,古くから細胞生物学やリズム研究の題材として用いられてきた.また,UTCクレードよりも基底的な位置にあるプラシノ藻(Prasinophytes)の一種オストレオコッカスは,真核光合成生物の中で最小クラスのゲノムを持ち,近年,概日時計研究が急速に進展している.
このように,緑藻植物には体制や生活環境が大きく異なるモデル生物が含まれ,概日時計の分子機構や生理機能の比較研究に適している.本稿では,その中でも古くから研究対象として用いられ,生理学的・遺伝学的解析が進んでいるクラミドモナスを中心に,緑藻の概日時計とその生理機能について概説する.
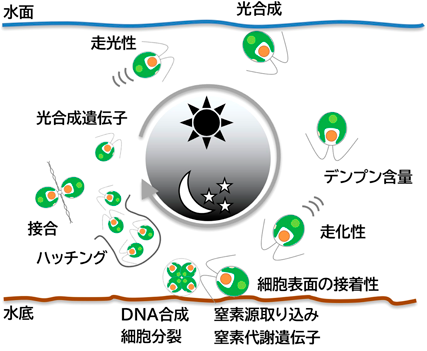
クラミドモナスはシンプルな単細胞生物であるが,その細胞内では多様な生理機能にリズムがみられる.ここでは,クラミドモナスの一日を時間の経過に沿って概観する(図1).
クラミドモナスの一日は,光合成遺伝子の発現から始まる.光合成遺伝子は核ゲノムと葉緑体ゲノムの双方にコードされており,両者が協調して働くことで効率的な光合成が実現される.核コード遺伝子の多くは明け方に発現ピークを示し4, 5),転写レベルで制御されている5).よって,概日時計の中核の転写翻訳フィードバックループ(transcription–translation feedback loop:TTFL)を起点とする転写ネットワークの制御下にあると考えられる.一方,葉緑体にコードされた遺伝子は独自の転写・翻訳系によって発現するので,TTFLによる直接的な制御は及ばないと考えられる.しかし,葉緑体ゲノム上の複数の光合成遺伝子も発現リズムを示すことが知られている.特に,翻訳伸長因子をコードするtufAは非常に強いリズムを示し,そのリズムは転写レベルで制御されている6).細胞質翻訳阻害剤シクロヘキシミドを添加するとtufAのリズムが消失することから,その制御が核ゲノム遺伝子に依存していることが示唆されている7).シロイヌナズナでは核コードのシグマ因子がTTFLの制御下にあり,葉緑体に移行して概日的な転写制御を行うことが知られているが8),クラミドモナスのシグマ因子の発現には明瞭なリズムはない9).
日が昇ると,クラミドモナスは光の方向を感知して水面に向かって移動し,効率的に光合成を行う.細胞内の眼点には光受容体のチャネルロドプシンが局在し,光を受けると繊毛の運動を制御して光に向かって泳ぐ.この光集性には主観的昼をピークとする明瞭な概日リズムが観察される10).チャネルロドプシンの発現にも弱いリズムがみられるが11),その量的変化が光集性の概日リズムを作り出しているかどうかは不明である.光集性には細胞内の酸化還元状態が関与していることが知られているので12),一つの可能性として,酸化還元の概日リズムの関与が考えられる.
日中に行われる光合成により,葉緑体内のピレノイドにはデンプンが蓄積する.デンプン量の変動は単に明暗サイクルに依存するものではなく,概日時計によっても制御されており,恒常条件下でも約1週間にわたり概日リズムが維持される13).デンプン合成酵素GBSSIおよびSSIIIの発現リズムがデンプン蓄積量の概日リズム形成に関与していると考えられている13).
夜になると,クラミドモナスは昼間に蓄積したデンプンを消費しながら活動を続ける.クラミドモナスの細胞分裂は夜間に集中して起こり,multiple fission(多分裂)と呼ばれる様式をとる.母細胞は自身の細胞壁の内側で複数回の核分裂と細胞質分裂を行い,複数の娘細胞を形成する.成熟した娘細胞は母細胞の細胞壁を酵素的に溶かして外へ放出される(ハッチング).ハッチングはおおむね夜明けごろに起こる10, 14).
その日に分裂を行わない細胞は走化性を示す.クラミドモナスはアンモニウムイオンなどの窒素源の濃度が高い方向へ移動し15),それに続いてアンモニウムイオン取り込み活性が上昇し15),夜明けごろには窒素代謝系の酵素活性がピークを迎える16).これらの概日リズムにより,クラミドモナスは効率的に窒素を利用していると考えられる.窒素源が枯渇すると有性生殖を行うが,性的な接合活性が高まるのも夜明けごろである17, 18).
深夜になると,クラミドモナスの細胞表面はガラスなどへの接着性が高まる19).外液のイオン強度が接着性に強く影響することから,細胞表面の電荷状態が概日的に変化していると推測されている19).この現象の適応的意義は明確ではないが,走化性によって適した環境に到達したのち,水底などにある構造物に固着してとどまるための性質と考えられている20).特に,分裂中の細胞は繊毛を失い運動能力を喪失するため,流されずにその場にとどまることが重要であるのかもしれない.
このようにクラミドモナスは,水底で夜を過ごし,夜明けが近づいてきたら光合成遺伝子のスイッチを再び入れ,太陽を目指して水面へ向かって泳ぎ,新しい一日を開始する.なお,クラミドモナスは宇宙に送られた生物の一つであり,微小重力下においても概日時計が機能することが確認されている21).
さまざまな生理機能の概日リズムの根源には,概日時計がある.緑藻の概日時計の構成因子へのアプローチは1970年代にクラミドモナスで始まった.Victor G. Bruceは1970年に,クラミドモナスで光集性の概日リズムの測定を報告した10).続いて1972年に最初のリズム変異体を22),1974年にはさらに三つの変異体を分離した23).これは,のちにショウジョウバエやアカパンカビで時計遺伝子periodやfrequencyが同定されることになる変異体分離とほぼ同時期であった.クラミドモナスで得られた四つの変異体はいずれも核ゲノム上の異なる遺伝子座に変異を持ち,長周期を示した23).効果は相加的であり,四重変異体では約40時間という超長周期となった23).変異の一つはアルギニン要求性変異と遺伝的に連鎖していたが24),原因遺伝子は未同定である.これらの変異体の表現型はきわめて安定で,多くの研究で利用されてきた.現在でも株はクラミドモナスリソースセンター(https://www.chlamycollection.org/)に保存され,世界中の研究者に広く配布されている.
クラミドモナスの時計遺伝子が具体的に同定されたのは2000年代に入ってからである.このころには繊毛運動や光合成のモデル生物としての整備が進み,ゲノム情報,形質転換法,培養・保存法,レポーター遺伝子系が確立していた.優れたモデル性から,酵母になぞらえて“Green yeast”とも呼ばれるようになった25).こうした基盤の上に,多数の時計関連遺伝子が同定された.すでに陸上植物ではTOC1やCCA1など代表的な時計遺伝子が知られていたが,クラミドモナスでは順遺伝学や相互作用因子の探索などノンバイアスな手法が用いられ,その結果,緑藻特有の因子も数多く見いだされている.以下に主要因子を概説する.
1)CHLAMY1
クラミドモナスのタンパク質粗抽出液から,特定mRNAの3′ UTRに夜間特異的に結合するタンパク質として同定された複合体である26).C1(45 kDa)とC3(52 kDa)のサブユニットから構成され27),それぞれの遺伝子のノックダウンや過剰発現により,概日リズムの消失または位相異常が生じることから時計遺伝子として位置づけられた16).C1, C3はいずれも一日を通して100~160 kDaの複合体として検出されるが,C1は昼に限って680 kDa以上の高分子複合体にも検出される27).CHLAMY1の標的はmRNAの3′ UTRのUGリピートであり,窒素・二酸化炭素代謝関連遺伝子の3′ UTRに強く結合する28).また,標的mRNAの産物の活性とは負の相関がみられるため,CHLAMY1は翻訳抑制因子として機能することが推測されている28).なお,後述の時計遺伝子ROC40の3′ UTRにもUGリピートが存在する.
C3の発現量はC1に依存しており,C1の増減に伴ってC3の量も並行して増減する16).C3は複数機能を持ち,核内ではゲノムDNA上のE-box配列に結合する転写複合体の一部として存在する29).さらに,C3遺伝子自体も上流にE-boxを持ち,C3の概日発現およびC1依存的変動はE-box経由で制御される29, 30).
2)RHYTHM OF CHLOROPLAST(ROC)遺伝子群
概日発現するルシフェラーゼレポーター遺伝子を葉緑体ゲノムに組込み31),その生物発光リズムを指標として分離された多数の概日リズム変異体から同定された遺伝子群である32).いくつかはシロイヌナズナの時計タンパク質のホモログをコードし,ROC40はCCA1/LHY, ROC15/ROC75はLUX/BOAのホモログをコードする(シロイヌナズナの概日時計システムについては遠藤らの稿を参照).ROC66は,シロイヌナズナで光周性花成制御などに関わるCO/COLファミリーのタンパク質をコードする.一方,ROC55とROC114はそれぞれロイシンリッチリピートタンパク質とF-boxタンパク質をコードし,クラミドモナスや近縁緑藻(ボルボックス等)にしかホモログが見つからない緑藻特異的因子である.しかし,これらの遺伝子の変異体はいずれも強いリズム異常を示すため,補助的な因子というよりは,より中核に近い役割を担うと考えられる.
ROC55/ROC114は恒常発現であるのに対し,陸上植物ホモログを持つROC遺伝子群は明瞭な概日発現リズムを示す.夜間にROC66→ROC15→ROC40の順で発現し,日中にROC75が発現する.シロイヌナズナではGARP型転写因子遺伝子LUX/BOAはいずれも夕方にピークを持つのに対し,クラミドモナスでは,それらのホモログであるROC15が夜,ROC75が昼と,発現時刻が二分される点が特徴的である32).これは構成因子の多様性のみならずネットワーク構造の多様性をも示唆する.
3)クリプトクロム
クリプトクロムは真核生物の概日時計と密接に関わる.マウスでは概日時計のリズム形成に,ショウジョウバエやシロイヌナズナでは概日光受容体として機能する33).クラミドモナスはpCRY(植物型),aCRY(動物型),CRY-DASHを持つ34).このうちpCRYが時計の構成因子で,遺伝子変異体は長周期となり,青色光に対する位相シフトにも異常を示す35).pCRYは夜間に蓄積し,約680 kDaの複合体に含まれる.光依存的にプロテアソーム分解されるため日中のレベルは低い35).pCRYは主に青色光を受容するが34),青色光のみならず赤色光でも分解される36).一方,aCRY遺伝子の変異体はいくつかの時計遺伝子の光応答異常を示すものの34),概日時計の周期や位相応答への直接的な影響は報告されていない.また,青色光だけでなく赤色光も吸収するユニークな性質を持つ34).
4)カゼインキナーゼ1(casein kinase 1:CK1)
CK1は動物・植物・菌類のいずれにおいても概日時計に関わるキナーゼである.クラミドモナスでは眼点に局在するタンパク質として同定され,ノックダウン実験で光集性リズムが短周期化し,その後消失することが示された37).多くの生物においてCK1機能低下は周期延長をもたらす一方で,クラミドモナスでは周期が短縮される点は特筆すべきである.
5)オストレオコッカスの概日時計
真核生物で最小級のゲノムを持つオストレオコッカスでは,CCA1–TOC1の二つの遺伝子が互いに抑制し合うシンプルな転写ループが中核をなすと考えられている38, 39).一方で,クラミドモナスやシロイヌナズナで概日時計との関連が報告されていないLOV-HKの関与が示され40),単にシンプルというだけでなく,生存戦略に応じた因子の多様化が示唆される.また,転写・翻訳阻害下でもperoxiredoxinタンパク質に概日リズムが観察され41),TTFL非依存的な概日時計の研究が急速に進んでいる42).
6)カサノリの概日時計
緑藻で最も古くから概日時計研究に用いられてきたモデルがカサノリである.しかし分子レベルでの理解はほとんど進んでおらず,構成因子は未同定である.二次元電気泳動によるタンパク質発現解析では,230 kDaの未知タンパク質に概日リズムが報告されているが43),時計本体か時計の出力を受けた一分子かは不明である.
カサノリの最大の特徴は,その形態にある44).傘状の形をした全長約10 cmにも及ぶ巨大な単細胞生物であり,基部(仮根)にたった一つの核を持つ.このため,仮根を切断するだけで容易に除核が可能であり,除核細胞も数か月にわたって生存する.除核細胞でも概日リズムが維持されることが最初に示されたのは1961年であり45),その後,さまざまな生理学的研究が行われた46).しかし,近年の分子レベルの研究からは完全に取り残されているのが現状である.それでも,除核,核移植,接木といった実験技術は,現在においても他に類をみないものであり,TTFL非依存的な概日時計や,それとTTFLとの相互作用の解析において重要な役割を担いうる実験系である.
1)温度応答
概日時計は外界の温度や光のサイクルに自らのリズムを同期させる性質を持つ.クラミドモナスでは温度情報の入力にCHLAMY1の関与が示唆されている.通常22~24°C付近で培養されるが,低温(18°C)ではC1サブユニットが高リン酸化され,C3の蓄積量が上昇する30).このC3の増加は,C3遺伝子領域に存在するE-boxを介した転写レベルでの制御によるものである30).また,C3はROC遺伝子群の一つROC86がコードするエキソリボヌクレアーゼ1(XRN1)やRNA結合タンパク質Musashiと相互作用することが知られており47, 48),これらのタンパク質はいずれも高温(28°C)下で発現が上昇する48).Bruceが分離した変異体の一つではC1の高リン酸化が起こらず,C3の蓄積量も常に高い30).これらの結果から,クラミドモナスの概日時計の温度応答にはCHLAMY1, XRN1, Musashi,さらに未知の時計遺伝子(Bruceの変異体の原因遺伝子)を含むネットワークが関与しうると考えられている30).
2)光応答
クラミドモナスの光集性リズムを指標として,概日時計の時刻を調節する光の波長依存性が詳細に調べられた49).恒暗条件下におかれたクラミドモナスの概日時計は,可視光全域の光に対して位相シフト応答を示すが,特に赤色光で顕著な効果があり,遠赤色光では効果が認められない.また,光合成が成立しないほどの微弱な赤色光でも十分な効果が得られるうえ,光合成阻害剤を添加してもリセット効果は失われない.これらの結果から,この現象は光合成代謝産物を介した反応ではなく,赤色光センサー光受容体の関与が示唆されている.当初はフィトクロムの関与が疑われたが,フィトクロムが関与する種子の発芽の制御にみられるような遠赤色光による打ち消し効果は観察されなかった.その後,ゲノム解析によってクラミドモナスがフィトクロム遺伝子を持たないことが明らかになった50).これらのことから,クラミドモナスの概日時計は,未知の赤色光受容・伝達機構でリセットされると考えられる.
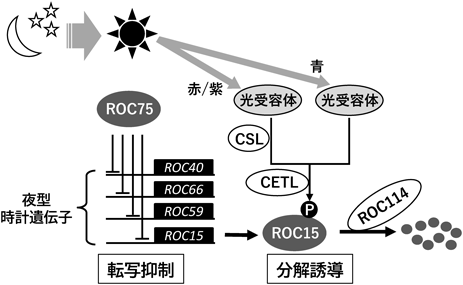
緑藻は眠るわけではないが,深夜には細胞表面の接着性によって水底に固着し,分裂や窒素固定といった静的なモードにある.これに対し,日中には水面へ向かって泳ぎ,活発に光合成を行う動的なモードへと切り替わる.この夜から昼への移行過程について,我々のグループがクラミドモナスを用いて近年行ってきた研究により,ROC遺伝子群のうちGARP型転写因子をコードするROC15とROC75が重要な役割を果たすことが明らかになってきた(図2).
1)光による目覚め(概日時計のリセット)
時計タンパク質ROC15は,夜間に合成され,時間とともに徐々にリン酸化が進む.夜明けの光によってさらにリン酸化され,その後,プロテアソーム系により急速に分解される51).この分解には緑藻特異的時計タンパク質でありF-boxタンパク質であるROC114が関わる51).ROC15の分解を誘導する光の波長は,近藤らによる位相シフト実験の結果とおおむね一致し,可視光のほぼ全域が有効である51).なかでも赤色光の効果が大きく,遠赤色光では効果がみられない52).ROC15遺伝子の変異体は,概日周期の異常に加えて明暗サイクルに対するリズム位相のずれを示し,光入力経路における概日時計の異常が示唆される32).また,ROC15の光依存的分解が起こらない変異体(後述)では,概日時計のリセット応答が著しく弱い52).これらの結果から,ROC15の光依存的分解は概日時計リセットの引き金となる反応であると考えられる.夜型の時計タンパク質である転写因子ROC15が,夜明けの光によって急速に分解されることで,下流遺伝子群の発現が切り替わり,夜から昼への移行が促進されると推測される.
ROC15の分解は,ROC15とルシフェラーゼの融合タンパク質レポーターにより可視化できる51).この生物発光を指標として,これまでに約19,000変異体がスクリーニングされ,22変異体が分離された52, 53).そのうち三つの変異体(b16, b19, b20)はきわめて重篤な異常を示す.b19およびb20では,ROC15の光応答がどの波長の光に対しても起こらない.一方,b16は赤色光応答が欠損し,紫色光応答が減弱しているが,青色光応答はほぼ正常である.この結果から,ROC15の分解を誘導する光受容・伝達経路は二つ以上存在し,そのうちの一つは赤色光を中心に受容伝達する経路であると考えられる52).
b16変異体の原因遺伝子はすでに同定されており,MAPKカスケードの上流で機能するRAS/RAFタンパク質のスキャフォルドタンパク質SHOC2/SUR8に相同性を示すタンパク質をコードする52).我々はこの遺伝子をCSL(Chlamydomonas SHOC2/SUR8-like LRR)と命名し,未知の赤色光受容・伝達経路の解析を進めている.
一方,b19変異体の原因遺伝子は2392アミノ酸からなり,既知の機能ドメインを持たないタンパク質をコードする.アミノ酸配列解析の結果,このタンパク質はシロイヌナズナの時計タンパク質ELF3ときわめて限定的ではあるが配列類似性を示すことがわかった53).我々はこの遺伝子をCETL(Chlamydomonas ELF Three Like protein)と命名してROC15の分解との関連を解析している.従来,緑藻にELF3は存在しないと考えられていたため,この発見は意外であった.シロイヌナズナでは,GARP型転写因子LUX/BOAがELF3およびELF4とともにEvening complexを形成することが知られている.ROC15の光誘導性分解に対するノンバイアスなスクリーニングでELF様タンパク質が発見されたことは,両者の密接な関係が進化の過程で保存されている可能性を示唆する.現時点では,ROC15とCETLとのタンパク質レベルでの物理的相互作用は未確認である.
2)自律的な目覚め
概日時計は自律的なシステムであり,光がなくても時刻は夜から昼へと移行する.この移行に関与するのがROC75である.ROC75はGARP型転写因子をコードし,DNA結合能を持つ.ChIP-seq解析の結果,ROC75は夜間に発現するROC遺伝子群(ROC66, ROC15, ROC40, ROC59)の遺伝子領域と相互作用することが明らかになった54).さらに,ROC75に転写活性化ドメインを人工的に付加した遺伝子では,ROC75遺伝子変異体の無周期性を相補できなくなることから,本来のROC75は転写抑制因子として機能すると考えられる54).
ROC75変異体では,恒暗条件下で夜型時計遺伝子群が高発現しており,リズムがない.そのとき,グルココルチコイド受容体を利用した転写因子の人為的制御系を用いてROC75の機能を人為的にオンにすると,リズムが回復する.その際,概日時計は夜明けの時刻から再開される54).すなわち,ROC75が機能しない場合,夜型時計遺伝子群の高発現によって夜の状態が維持されており,そこでROC75がそれらを抑制することで,細胞は昼の状態へと移行すると考えられる.つまり,ROC75は「夜の終わり」を告げる転写抑制因子である.
引用文献References
1) Yoon, H.S., Hackett, J.D., Ciniglia, C., Pinto, G., & Bhattacharya, D. (2004) A molecular timeline for the origin of photosynthetic eukaryotes. Mol. Biol. Evol., 21, 809–818.
2) Leliaert, F., Smith, D.R., Moreau, H., Herron, M.D., Verbruggen, H., Delwiche, C.F., & De Clerck, O. (2012) Phylogeny and molecular evolution of the green algae. Crit. Rev. Plant Sci., 31, 1–46.
3) Strassert, J.F.H., Irisarri, I., Williams, T.A., & Burki, F. (2021) A molecular timescale for eukaryote evolution with implications for the origin of red algal-derived plastids. Nat. Commun., 12, 1879.
4) Hwang, S. & Herrin, D.L. (1994) Control of lhc gene transcription by the circadian clock in Chlamydomonas reinhardtii. Plant Mol. Biol., 26, 557–569.
5) Jacobshagen, S., Kindle, K.L., & Johnson, C.H. (1996) Transcription of CABII is regulated by the biological clock in Chlamydomonas reinhardtii. Plant Mol. Biol., 31, 1173–1184.
6) Hwang, S., Kawazoe, R., & Herrin, D.L. (1996) Transcription of tufA and other chloroplast-encoded genes is controlled by a circadian clock in Chlamydomonas. Proc. Natl. Acad. Sci. USA, 93, 996–1000.
7) Kawazoe, R., Hwang, S., & Herrin, D.L. (2000) Requirement for cytoplasmic protein synthesis during circadian peaks of transcription of chloroplast-encoded genes in Chlamydomonas. Plant Mol. Biol., 44, 699–709.
8) Noordally, Z.B., Ishii, K., Atkins, K.A., Wetherill, S.J., Kusakina, J., Walton, E.J., Kato, M., Azuma, M., Tanaka, K., Hanaoka, M., et al. (2013) Circadian control of chloroplast transcription by a nuclear-encoded timing signal. Science, 339, 1316–1319.
9) Kawazoe, R., Mahan, K.M., Venghaus, B.E., Carter, M.L., & Herrin, D.L. (2012) Circadian regulation of chloroplast transcription in Chlamydomonas is accompanied by little or no fluctuation in RPOD levels or core RNAP activity. Mol. Biol. Rep., 39, 10565–10571.
10) Bruce, V.G. (1970) The Biological Clock in Chlamydomonas reinhardi. J. Protozool., 17, 328–334.
11) Kucho, K.I., Okamoto, K., Tabata, S., Fukuzawa, H., & Ishiura, M. (2005) Identification of novel clock-controlled genes by cDNA macroarray analysis in Chlamydomonas reinhardtii. Plant Mol. Biol., 57, 889–906.
12) Wakabayashi, K.I., Misawa, Y., Mochiji, S., & Kamiya, R. (2011) Reduction-oxidation poise regulates the sign of phototaxis in Chlamydomonas reinhardtii. Proc. Natl. Acad. Sci. USA, 108, 11280–11284.
13) Ral, J.P., Colleoni, C., Wattebled, F., Dauvillée, D., Nempont, C., Deschamps, P., Li, Z., Morell, M.K., Chibbar, R., Purton, S., et al. (2006) Circadian clock regulation of starch metabolism establishes GBSSI as a major contributor to amylopectin synthesis in Chlamydomonas reinhardtii. Plant Physiol., 142, 305–317.
14) Goto, K. & Johnson, C.H. (1995) Is the cell division cycle gated by a circadian clock? The case of Chlamydomonas reinhardtii. J. Cell Biol., 129, 1061–1069.
15) Byrne, T.E., Wells, M.R., & Johnson, C.H. (1992) Circadian rhythms of chemotaxis to ammonium and of methylammonium uptake in chlamydomonas. Plant Physiol., 98, 879–886.
16) Iliev, D., Voytsekh, O., Schmidt, E.M., Fiedler, M., Nykytenko, A., & Mittag, M. (2006) A heteromeric RNA-binding protein is involved in maintaining acrophase and period of the circadian clock. Plant Physiol., 142, 797–806.
17) Tomson, A.M., Demets, R., Homan, W.L., Stegwee, D., & van den Ende, H. (1988) Endogenous oscillator controls surface density of mating receptors in Chlamydomonas eugametos. Sex. Plant Reprod., 1, 46–50.
18) Ishiura, M. & Iwasa, K. (1973). Plant Cell Physiol., 14, 695–702.
19) Straley, S.C. & Bruce, V.G. (1979) Stickiness to glass: Circadian changes in the cell surface of Chlamydomonas reinhardi. Plant Physiol., 63, 1175–1181.
20) Werner, R. (2002) Chlamydomonas reinhardtii as a unicellular model for circadian rhythm analysis. Chronobiol. Int., 19, 325–343.
21) Mergenhagen, D. & Mergenhagen, E. (1987) The biological clock of Chlamydomonas reinhardii in space. Eur. J. Cell Biol., 43, 203–207.
22) Bruce, V.G. (1972) Mutants of the biological clock in Chlamydomonas reinhardi. Genetics, 70, 537–548.
23) Bruce, V.G. (1974) Recombinants between clock mutants of Chlamydomonas reinhardi. Genetics, 77, 221–229.
24) Bruce, V.G. & Bruce, N.C. (1978) Diploids of clock mutants of Chlamydomonas Reinhardi. Genetics, 89, 225–233.
25) Goodenough, U.W. (1992) Green yeast. Cell, 70, 533–538.
26) Mittag, M. (1996) Conserved circadian elements in phylogenetically diverse algae. Proc. Natl. Acad. Sci. USA, 93, 14401–14404.
27) Zhao, B., Schneid, C., Iliev, D., Schmidt, E.M., Wagner, V., Wollnik, F., & Mittag, M. (2004) The circadian RNA-binding protein CHLAMY 1 represents a novel type heteromer of RNA recognition motif and lysine homology domain-containing subunits. Eukaryot. Cell, 3, 815–825.
28) Waltenberger, H., Schneid, C., Grosch, J.O., Bareiss, A., & Mittag, M. (2001) Identification of target mRNAs for the clock-controlled RNA-binding protein Chlamy 1 from Chlamydomonas reinhardtii. Mol. Genet. Genomics, 265, 180–188.
29) Seitz, S.B., Weisheit, W., & Mittag, M. (2010) Multiple roles and interaction factors of an E-box element in Chlamydomonas reinhardtii. Plant Physiol., 152, 2243–2257.
30) Voytsekh, O., Seitz, S.B., Iliev, D., & Mittag, M. (2008) Both subunits of the circadian RNA-binding protein CHLAMY1 can integrate temperature information. Plant Physiol., 147, 2179–2193.
31) Matsuo, T., Onai, K., Okamoto, K., Minagawa, J., & Ishiura, M. (2006) Real-time monitoring of chloroplast gene expression by a luciferase reporter: Evidence for nuclear regulation of chloroplast circadian period. Mol. Cell. Biol., 26, 863–870.
32) Matsuo, T., Okamoto, K., Onai, K., Niwa, Y., Shimogawara, K., & Ishiura, M. (2008) A systematic forward genetic analysis identified components of the Chlamydomonas circadian system. Genes Dev., 22, 918–930.
33) Chaves, I., Pokorny, R., Byrdin, M., Hoang, N., Ritz, T., Brettel, K., Essen, L.O., Van Der Horst, G.T.J., Batschauer, A., & Ahmad, M. (2011) The cryptochromes: Blue light photoreceptors in plants and animals. Annu. Rev. Plant Biol., 62, 335–364.
34) Beel, B., Prager, K., Spexard, M., Sasso, S., Weiss, D., Müller, N., Heinnickel, M., Dewez, D., Ikoma, D., Grossman, A.R., et al. (2012) A flavin binding cryptochrome photoreceptor responds to both blue and red light in Chlamydomonas reinhardtii. Plant Cell, 24, 2992–3008.
35) Müller, N., Wenzel, S., Zou, Y., Künzel, S., Sasso, S., Weiß, D., Prager, K., Grossman, A., Kottke, T., & Mittag, M. (2017) A plant cryptochrome controls key features of the Chlamydomonas circadian clock and its life cycle. Plant Physiol., 174, 185–201.
36) Reisdorph, N.A. & Small, G.D. (2004) The CPH1 gene of Chlamydomonas reinhardtii encodes two forms of cryptochrome whose levels are controlled by light-induced proteolysis. Plant Physiol., 134, 1546–1554.
37) Schmidt, M., Gessner, G., Luff, M., Heiland, I., Wagner, V., Kaminski, M., Geimer, S., Eitzinger, N., Reissenweber, T., Voytsekh, O., et al. (2006) Proteomic analysis of the eyespot of Chlamydomonas reinhardtii provides novel insights into its components and tactic movements. Plant Cell, 18, 1908–1930.
38) Corellou, F., Schwartz, C., Motta, J.P., Djouani-Tahri, E.B., Sanchez, F., & Bouget, F.Y. (2009) Clocks in the green lineage: Comparative functional analysis of the circadian architecture of the Picoeukaryote Ostreococcus. Plant Cell, 21, 3436–3449.
39) Morant, P.E., Thommen, Q., Pfeuty, B., Vandermoere, C., Corellou, F., Bouget, F.Y., & Lefranc, M. (2010) A robust two-gene oscillator at the core of Ostreococcus tauri circadian clock. Chaos, 20, 045108.
40) Djouani-Tahri, E.B., Christie, J.M., Sanchez-Ferandin, S., Sanchez, F., Bouget, F.Y., & Corellou, F. (2011) A eukaryotic LOV-histidine kinase with circadian clock function in the picoalga Ostreococcus. Plant J., 65, 578–588.
41) O’Neill, J.S., Van Ooijen, G., Dixon, L.E., Troein, C., Corellou, F., Bouget, F.Y., Reddy, A.B., & Millar, A.J. (2011) Circadian rhythms persist without transcription in a eukaryote. Nature, 469, 554–558.
42) Noordally, Z.B. & Millar, A.J. (2015) Clocks in algae. Biochemistry, 54, 171–183.
43) Hartwig, R., Schweiger, M., Schweiger, R., & Schweiger, H.G. (1985) Identification of a high molecular weight polypeptide that may be part of the circadian clockwork in Acetabularia. Proc. Natl. Acad. Sci. USA, 82, 6899–6902.
44) Mandoli, D.F. (1998) What Ever Happened to Acetabularia? Bringing a once-classic model system into the age of molecular genetics. Int. Rev. Cytol., 182, 1–67.
45) Sweeney, B.M. & Haxo, F.T. (1961) Persistence of a photosynthetic rhythm in enucleated Acetabularia. Science, 134, 1361–1363.
46) Schweiger, H.G., Hartwig, R., & Schweiger, M. (1986) Cellular aspects of circadian rhythms. J. Cell Sci. Suppl., 4, 181–200.
47) Dathe, H., Prager, K., & Mittag, M. (2012) Novel interaction of two clock-relevant RNA-binding proteins C3 and XRN1 in Chlamydomonas reinhardtii. FEBS Lett., 586, 3969–3973.
48) Li, W., Flores, D.C., Füßel, J., Euteneuer, J., Dathe, H., Zou, Y., & Mittag, M. (2018). A Musashi splice variant and its interaction partners influence temperature acclimation in Chlamydomonas. Plant Physiol., 178, 1489–1506.
49) Kondo, T., Johnson, C.H., & Hastings, J.W. (1991) Action Spectrum for Resetting the Circadian Phototaxis Rhythm in the CW15 Strain of Chlamydomonas: I. Cells in Darkness. Plant Physiol., 95, 197–205.
50) Merchant, S.S., Prochnik, S.E., Vallon, O., Harris, E.H., Karpowicz, S.J., Witman, G.B., Terry, A., Salamov, A., Fritz-Laylin, L.K., Maréchal-Drouard, L., et al. (2007) The Chlamydomonas genome reveals the evolution of key animal and plant functions. Science, 318, 245–250.
51) Niwa, Y., Matsuo, T., Onai, K., Kato, D., Tachikawa, M., & Ishiura, M. (2013) Phase-resetting mechanism of the circadian clock in Chlamydomonas reinhardtii. Proc. Natl. Acad. Sci. USA, 110, 13666–13671.
52) Kinoshita, A., Niwa, Y., Onai, K., Yamano, T., Fukuzawa, H., Ishiura, M., & Matsuo, T. (2017) CSL encodes a leucine-rich-repeat protein implicated in red/violet light signaling to the circadian clock in Chlamydomonas. PLoS Genet., 13, e1006645.
53) Gururaj, M., Ohmura, A., Ozawa, M., Yamano, T., Fukuzawa, H., & Matsuo, T. (2022) A potential EARLY FLOWERING 3 homolog in Chlamydomonas is involved in the red/violet and blue light signaling pathways for the degradation of RHYTHM OF CHLOROPLAST 15. PLoS Genet., 18, 1010449.
54) Matsuo, T., Iida, T., Ohmura, A., Gururaj, M., Kato, D., Mutoh, R., Ihara, K., & Ishiura, M. (2020) The role of ROC75 as a daytime component of the circadian oscillator in Chlamydomonas reinhardtii. PLoS Genet., 16, e1008814.