1. はじめに——植物が時間に適応するための多様な戦略
「いにしへの奈良の都の八重桜けふ九重に匂ひぬるかな」 伊勢大輔(61番)
紫式部や和泉式部とも親しい間柄であった「いせのたいふ」(「だいすけ」ではなく,女性です)の詠んだこの歌は,百人一首の61番歌としても有名である.筆者らはこの歌が詠まれた時点ですでに「いにしへ」といわれる奈良で研究している.
さて,この歌が詠まれた季節はいつだろうか? 当然,春なのだが,はるか昔から桜が春に咲くという事実は,よく考えてみると驚異的である.その場から動くことができず,脳のような記憶・演算装置を持たない植物は,一体どのようにして季節の移ろいを長年にわたって正確に予測し,花を咲かせるタイミングを決めてきたのだろうか?
植物に限らず,生物が示す精巧な季節予測能力は,地球の自転と公転が織りなす周期的な環境変化に適応するために,生物時計と呼ばれる時間測定システムを進化させてきた賜物である.しかし,この「時間を測る」という普遍的な課題に対し,生物は驚くほど多様なメカニズムを用いている.
本特集のほかの稿で紹介されるように,こうした計時メカニズムは進化的には独立に獲得されたと考えられており,実に多彩である.たとえば,シアノバクテリアは,遺伝子の転写を必要とせず,3種類のタンパク質のリン酸化サイクルで24時間のリズムを生み出す.一方,動物(哺乳類)は,脳の視交叉上核(SCN)という中枢時計を司令塔として,神経やホルモンを介して全身の臓器に時刻情報を伝達し,個体全体を統率する,高度に階層化されたシステムを築き上げた.では,植物はどのような戦略を選んだのだろうか?
植物は,動物のような中枢神経系を持たず,シアノバクテリアのように単純な細胞構造でもない.光合成を行い,固着生活を送るという独自の制約と要求の中で植物はどのように時間,特に季節を認識しているか,という問いは100年以上も前から多くの研究者の興味を集め,研究の対象となってきた.その結果,植物が日長の変化に応じて開花時期を決定する光周性花成の仕組みは,外的符号モデル*としてエレガントに説明され,その分子的実体も明らかにされるなど,大きな成功を収めてきた.
しかし,この美しく構築されたモデルは,その分子レベルでの知見の多くが実験室という管理された環境下で,シロイヌナズナという特定の植物種を用いて検証されてきた.近年の研究は,植物が実際に生きる野外環境に目を向けたとき,このモデルの予測と,実際の植物の振る舞いとの間に,無視できない乖離が存在することを明らかにしつつある.
本稿では,まず植物が時間を測るための精巧な仕組みと,そのシステム全体のユニークな構成を概観する.その上で,花成という具体的な生命現象を例にとり,モデルと現実の乖離という課題について分子基盤から説明を行う.これは,個々の細胞が自律的な時計を持ちながらも,個体として協調的な応答を実現する,植物ならではの時間戦略の物語である.
2. 植物が採用した時間測定メカニズム——遺伝子のオン・オフで時を刻む
植物は動物などと同様,転写・翻訳を介したフィードバックループ(transcription–translation feedback loop:TTFL)と呼ばれる仕組みを用いて時間を測っている.細胞核の中で,遺伝子群が互いのスイッチを周期的にオン・オフし続けることでリズムを生み出している.これらは大きく「朝」または「夕」に働く遺伝子群に分けられ,互いに抑制し合うことで,変動環境下でも安定した24時間のリズムが維持される.
1)Central loop:「朝」と「夕」の相互抑制
この時計の最も中心的な歯車は,朝に働くCCA1とLHY,そして夕方から夜にかけて働くTOC1という遺伝子である1–3).2001年に提唱された初期のモデルでは,朝に発現するCCA1/LHYがTOC1の転写を抑制し,逆に夕方に発現するTOC1がCCA1/LHYの転写を活性化するという,活性化と抑制が組み合わさったフィードバックループが考えられていた4).TOC1の機能喪失変異体でCCA1/LHYの発現量が低下するという遺伝学的な証拠も,このモデルを支持するようにみえた.
しかし,このモデルはすぐにいくつかの矛盾に直面した.最大の謎は,TOC1の発現ピーク(夕方)と,それが活性化するとされるCCA1/LHYの発現ピーク(翌朝)の間に,約12時間という長すぎる遅延が存在することであった.うまく説明するため,いくつかのループをつけ足すなどモデルの修正が断続的に試みられたが,モデルが複雑化するだけであった.数理モデルを用いたシミュレーションでも,この遅延を説明するために,正体不明の中間因子を仮定せざるをえず,根底にある生物学的モデルが不完全であることが示唆された.
転換点は,「TOC1は活性化因子ではなく,CCA1/LHYを抑制するブレーキ役なのではないか?」という,数理モデルから導き出された新たな仮説だった.その後,クロマチン免疫沈降(ChIP)法により,TOC1タンパク質が,まさに抑制が起こるべき夜の時間帯にCCA1/LHYのプロモーター領域に物理的に結合していることが示され,この仮説は証明された5).さらに,精製したTOC1タンパク質が試験管内でCCA1のプロモーターDNAに直接結合することも示され,TOC1がDNA結合能を持つ転写因子であることが決定的となった6).
この発見は,当初の遺伝学的観察結果(toc1変異体でCCA1の発現が低下する)の再解釈を迫るものだったが,最終的には複雑な振動子ネットワークでは,中心的な抑制因子(TOC1)を除去するとシステム全体が不安定化し,その結果としてほかの構成要素の平均レベルが間接的に低下することがありうるという結論で落ち着いている.
こうして,植物の概日時計のコアは「朝のCCA1/LHYが夜のTOC1を抑制し,夜のTOC1が朝のCCA1/LHYを抑制する」という,互いにブレーキをかけ合う「リプレシレーター」構造であることが明らかになった7).
2)時計を精巧にする補助的なループ
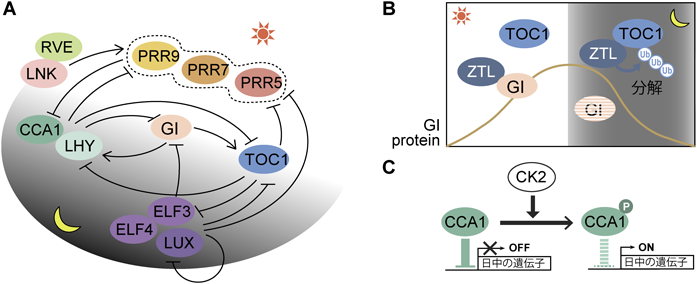
朝と夜の遺伝子が互いにブレーキをかけ合うループ構造だけでは,正確で安定した24時間のリズムは生まれない.実際,中心的な構成要素であるcca1とlhyの二重変異体においても,ある条件下ではリズムが持続することが示されており,概日時計は,複数の補助的なループによって構成されていることは早くから示唆されていた.このネットワーク化された構造こそが,時計にノイズや環境変化に対する頑健性と,環境に適応するための可塑性を与えている(図1A).
- Morning loop 時計が日中の時間を正確に区切るために機能するのが,PRRファミリーの遺伝子群である.このファミリーに属するPRR9, PRR7, PRR5, PRR3,そしてTOC1(別名PRR1)は,夜明けから夕暮れにかけて,この順番でリレーのように次々と発現のピークを迎える.この時間差のある連続的な発現は「五重奏」とも形容される.これらのPRRタンパク質は,朝に働くCCA1/LHYの転写を,日中から夜間にかけて抑制し続けるブレーキとして機能する8).各PRRが時間差で次々とCCA1/LHYプロモーターに結合し続けることで,約16時間という非常に長い抑制期間が生まれ,時計が速く進みすぎるのを防ぎ,全体の周期を約24時間に設定する上で重要な役割を果たしている.
- Evening loop 夕方から夜にかけては,GIGANTEA(GI)や,ELF3, ELF4, LUXという三つのタンパク質の複合体,イブニング・コンプレックス(EC)が中心的な役割を果たす9, 10).ECは,暗期に働く強力な抑制ハブとして,PRR9などの昼に働く遺伝子の発現を抑制し,時計が示す時刻が,ふとした刺激で夜から朝へと急激に変化(リセット)されて誤作動するのを防いでいる.また,EC自身が温度センサーとしても働くことで,温度情報を時計に直接統合する役割も担っている11).
- サーキットを駆動させるアクセル TTFLにおいて,抑制(ブレーキ)ばかりでは時計の振動はやがて減衰してしまう.そこで,朝方に発現するRVEファミリーの遺伝子群が,LNKという補助因子と協力して,昼のPRR5や夜のTOC1といった遺伝子の発現を促進するためのアクセルとして機能する12).興味深いことに,RVEタンパク質は,朝の抑制因子CCA1/LHYが結合するのと同じ「イブニングエレメント」というDNA配列に結合する13).同じスイッチを,異なる時間帯に異なる因子が押すことで,正反対の制御(抑制と活性化)を行うという,非常に効率的なシステムが構築されている.この正の駆動力がなければ,時計の振動はやがて減衰してしまうため,RVE-LNKループは時計の持続性に不可欠なアクセルといえる.
3)転写翻訳以外の調整:タンパク質レベルでの精密調整
ここまで転写レベルでの制御を俯瞰してきたが,それだけでは,植物の概日時計が示す頑健性や正確性を完全に説明することはできない.実際,遺伝子の発現量のリズムと,それから作られるタンパク質量のリズムの間には,しばしばずれがみられる.これは,時計の最終的な仕上げが,タンパク質レベルでの精密な調整,すなわち翻訳後修飾によって行われていることを示している.ここでは,時計を正確に動かす上で不可欠な,二つの重要なタンパク質レベルの制御機構について解説する(図1B, C).
- タンパク質分解によるリセット 時計が毎日正確にリセットされ,新たなサイクルを開始するためには,役目を終えたタンパク質を速やかに除去する必要がある.このタンパク質分解の主役が,F-boxタンパク質ZEITLUPE(ZTL)である.ZTLは,夕方から夜にかけて働く時計の中心因子TOC1を分解の標的として認識し,ユビキチン化する14, 15).この目印がついたTOC1タンパク質は,プロテアソームによって速やかに分解される.この分解プロセスは,驚くほど巧妙に制御されており,ZTL自身は日中にGIタンパク質と青色光依存的に複合体を形成することで安定化されている.しかし,この状態では標的であるTOC1には結合できず,夕暮れ時になり,青色光がなくなるとGI-ZTL複合体は解離し,解放されたZTLが一斉にTOC1の分解を開始する16).これは,分解装置を日中に準備しておき,GIが夕暮れ時に門を開けることで,TOC1の迅速かつ同調した分解を引き起こす,洗練されたゲーティング機構といえるだろう.
- リン酸化による機能調節 一方,朝に働く中心因子CCA1/LHYは,タンパク質分解とはまた別の仕組みによって制御される.たとえば朝のCCA1タンパク質は,CASEIN KINASE 2(CK2)によってリン酸化修飾を受けることでDNA結合能が低下する17–19).CCA1の転写抑制効果が夜明けからの時間経過とともに徐々に解除されていくことで,日中の遺伝子発現が上昇する.これは,オン・オフが明確な分解とは対照的な,アナログな調節ボリュームのような役割であり,時計の滑らかな進行を可能にしている.夕方の抑制因子TOC1は不可逆的な分解で,朝の抑制因子CCA1は可逆的な調節で制御される.この異なる戦略の使い分けが,時計の柔軟性と制御能力を高めている.
このように,植物の時計は,複数の遺伝子が互いに抑制し合う多重のフィードバックループを基本としながら,タンパク質の分解や修飾といった,転写後・翻訳後のきめ細やかな制御が加わることで,正確かつ頑健な計時機構として機能している.
3. 神経なき多細胞生物の挑戦——分散する時計たちはいかにして協調するのか?
時間を測る仕組みは本質的な部分では動物と植物で驚くほど似ている.しかし,そうした細胞単位の計時メカニズムをどのように配置し,個体全体としてまとめるかというシステムの設計思想は,両者で根本的に異なっている.この章では,動物の「中央集権型」システムとの対比を通じて,植物が採用した「分散協調型」という,一見すると非効率にも思える時間管理システムの謎に迫る.
1)動物の中央集権型システムと植物の分散協調型システム
哺乳類の時間管理は,基本的には脳のSCNが支配する非常に効率的な階層構造をとっている.視床下部に位置するこの一対の小さな神経核は,マウスでは直径わずか0.5 mmほどの大きさだが,約2万個の神経細胞が密集し,個体全体の時間管理をつかさどる司令塔として機能している.このSCNを外科的に破壊すると,睡眠覚醒やホルモン分泌といった,ほとんどの概日リズムが完全に消失してしまうことからも,その絶対的な重要性は明らかである.
SCNは,全身に張り巡らされた自律神経系や血管系を介してメラトニンやグルココルチコイドという時刻情報を全身の臓器に伝達する.その結果,全身の臓器に存在する末梢時計は,SCNからの指令を受け取って自らの時刻を修正し,個体全体として調和のとれた生命活動を営んでいる.これは,強力な司令塔がトップダウンで全体を統率する,まさに中央集権的なシステムといえる.
一方,植物にはSCNに相当するような,単一の解剖学的な司令塔は存在しない.その代わり,葉,茎,根といった異なる器官,さらには維管束や表皮といった各組織に至るまで,ほぼすべての細胞が自律的な時計を備えている.時計遺伝子の働きを生物発光で可視化するルシフェラーゼレポーターを用いて,各組織の時計遺伝子の転写リズムを測定した結果,植物のさまざまな部位が,それぞれ独立した生物発光リズムを示す,つまり独立に時間を刻んでいる様子が観察できるようになった.
光合成の拠点である葉は,植物本体から切り離して培養しても,数日間にわたって概日リズムを刻み続ける20).これは,葉がほかの部位からの指令なしに自律的に振動できる,完全な時計システムを内蔵していることを示している.さらに驚くべきは,光が直接届かない地中の根ですら,機能的な時計を持つことである.根が独自の時計を持つという事実は,植物の時計システムが,単に光に反応するだけの単純なものではないことを物語っている.さらに興味深いことに,これらの時計は画一的なコピーではない.一個体の中にあっても,光が当たらない根の時計は,地上部の葉の時計よりも周期がわずかに短いなど,器官ごとに異なる「個性」を持つことが知られている21).これは,各器官がその局所的な環境と生理的役割に適応した結果だと考えられる.
これらの証拠は,植物が,単一の指揮官がトップダウンで支配する帝国ではなく,それぞれが自律性と個性を持った器官が集まって成り立つ共和国として時間を管理していることを示している.
2)分散した時計たちをつなぐコミュニケーション
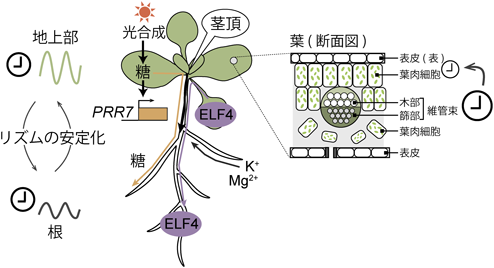
では,司令塔も高速な神経網も持たない植物は,どのようにしてこれらのバラバラな時計をまとめ上げ,個体として調和のとれた生命活動を実現しているのだろうか(右の葉っぱが5時,左の葉っぱが2時となることはないのだろうか).その鍵は,器官間で交わされる,比較的ゆっくりとした物質の移動,すなわち器官・組織間コミュニケーションにあった.近年の研究は,植物が時刻情報を伝達するために利用する,少なくとも3種類の主要なシグナルを明らかにしている(図2).
- 甘いシグナル(糖) 葉の光合成によって日中に作られるショ糖は,単なるエネルギー源ではなく,強力な時刻情報シグナルでもある.篩管を通じて全身に運ばれるショ糖の周期的な供給は,光の当たらない根に「代謝的な夜明け」を告げ,地上部の時刻に同調させる役割を担う.このシグナルは,時計遺伝子であるPRR7やCCA1の発現を調節することで,根の時計を日々リセットしている22, 23).
- 旅する時計タンパク質(ELF4) 時計の歯車であるELF4タンパク質は,地上部から根へと長距離を移動するメッセンジャーとして機能する.特にELF4の移動は温度に依存しており,地上部が感じとった気温の情報を地中の根へと正確に伝え,根の時計のペース(周期)を調節していることが,接ぎ木実験によって証明された24).これは,植物が特定の環境情報を,タンパク質そのものを「手紙」として送り伝達することを意味している.
- 根からのフィードバック(陽イオン) 情報伝達は一方通行ではない.比較的安定した環境にある根の時計は,カリウムイオンの輸送量を調節することで,変動の激しい環境にさらされる地上部の時計の精度を逆に安定させるという,フィードバック機構の存在が報告された25).安定した根の時計が,地上部の時計のアンカーとして機能し,システム全体の頑健性を高めていると推察される.
このように植物は,糖という代謝情報,ELF4という環境情報,そして無機イオンという安定化情報を絶えず交換することで,分散した無数の時計を一つの機能的な個体へと統合している.
3)創発的な階層性:維管束時計という事実上の司令塔
この分散システムは,完全に対等あるいは民主的な関係にあるわけではない.個体全体の運命を左右するような重要な決定に際しては,特定の組織の時計が不釣り合いに大きな影響力を持つ,「創発的な階層性」とでもいうべき構造がみられる.これは,脳のように解剖学的に定められた司令塔ではなく,システムの中から機能的に浮かび上がってきた,事実上のリーダーである.その主役が,植物で物質輸送を担う維管束(篩部と木部)の概日時計である.特定の組織でのみ時計機能を遺伝子操作によって破壊する実験では,維管束の時計を破壊すると,周囲の葉肉組織の時計リズムも失われてしまう.しかし,その逆,すなわち葉肉組織の時計を破壊しても,維管束の時計は平然とリズムを刻み続ける26)(図2).この非対称な関係は,維管束の時計が葉肉の時計に対して支配的であることを明示している.維管束が持つこのような影響力は,それ自体が全身への情報伝達を担うハイウェイであるという役割に深く根差している.事実,この維管束系を介した長距離の階層制御によって,成長の中心である茎頂の安定したリズムが,遠く離れた根の時計にまで影響を与えていることも報告されている27).
この優位性が最も劇的に現れるのが,日長を感知して花を咲かせるという,個体の繁殖戦略を決定する場面である.時計機能を維管束,特に篩管で特異的に破壊すると,植物の開花は著しく変化する.一方で,葉肉や表皮の時計を破壊しても,開花タイミングにはほとんど影響がみられない28).この現象の背景には,花成ホルモン「フロリゲン」が,日長を感知した葉の維管束で生産され,茎頂分裂組織へと輸送されるというメカニズムがある29).したがって,フロリゲンの生産タイミングを直接制御する維管束の時計が,個体全体の繁殖スケジュールを決定する上で,事実上の司令塔として機能する.これは,中央司令塔モデルへの回帰ではなく,むしろ,「連邦制による制御」とでもいうべき,より複雑なシステムを示唆している.このモデルでは,各器官がそれぞれの局所的な事象(気孔開閉,養分吸収など)を自律的に管理する一方で,維管束系が,生殖への移行のような,長距離の協調を必要とするシステム全体に関わる重要事項について主導権を握る.維管束の優位性は,生物ネットワークにおいて形態がいかに機能を規定するかを示す,美しい一例といえるだろう.
4. 「外的符合モデル」は万能の法則か?現実世界が示す,より複雑な戦略
植物の時計は,どのようにして「花を咲かせる」という個体全体の統一された生命現象を引き起こすのか.その問いに対する最も美しく,影響力のある答えが「外的符合モデル」である30).しかし,この教科書的なモデルは,すべての植物に当てはまる万能の法則なのだろうか.本節では,このモデルの基本を解説しつつ,現実の植物が見せる,より複雑で巧妙な生存戦略の最前線に迫る.
1)教科書的モデル:時計と光の「出会い」が花を咲かせる
植物が日長を測定する仕組みは,単なる光時間の積算ではなく,内部の時計が作り出すリズムと,外部の光との相互作用で決まる.1936年にエルヴィン・ビュニングが提示した仮説を改良して作られた外的符合モデル(1節の脚注参照)の核心は,「光感受性期」という概念にある.時計は植物の生理状態にリズムを生み出し,その中で特定の時間帯にのみ光への感受性を高める.花成は,この内的に定められた「光感受性期」と,外部からの光が「符合」したときにのみ引き起こされる,というものである.この理論は後に分子レベルで裏づけされた.
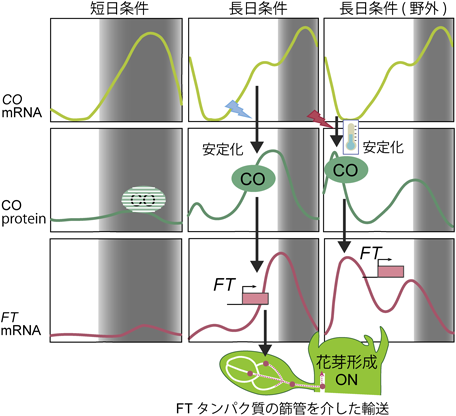
シロイヌナズナでは,概日時計の出力としてCONSTANS(CO)という遺伝子の転写が厳密に制御され,そのmRNA量は日長にかかわらず,常に午後遅くから夕方にかけてピークを迎える31).これが,ビュニングのいう「光感受性期」,すなわちCOタンパク質が機能しうる時間的な窓を創り出す.しかし,この窓が開いているだけでは花は咲かない.COタンパク質は暗闇ではきわめて不安定で,ユビキチン・プロテアソーム系によって即座に分解されてしまう.日が長い季節には,COのmRNA発現ピークが日没前の夕方の光と「符合」する32).この光(特に青色光や遠赤色光)が,光受容体を介してCOタンパク質の分解を抑制し,安定化させる33, 34).安定化され蓄積したCOタンパク質は,花成ホルモン(フロリゲン)の実体であるFTタンパク質の生産を誘導する.葉の維管束で作られたFTタンパク質は,篩管を通って茎の先端へと長距離輸送され,そこで初めて花芽形成のプログラムが起動される(図3).
2)モデルの多様性:長日植物と短日植物で反転する制御ロジック
しかし,このCOが花成を誘導するモデルは,日が短くなることで開花が誘導される短日植物には当てはまらない.驚くべきことに,イネのような短日植物は,シロイヌナズナと共通の遺伝子部品(COの相同遺伝子Hd1, FTの相同遺伝子Hd3a)を使いながら,まったく逆の制御ロジックを進化させていた35).これは,同じ分子ツールキットを異なる目的のために再配線(リワイヤリング)した,進化の巧みさを示す見事な一例である.
イネのHd1(COの相同タンパク質)は,長日条件の光の下では,フロリゲンHd3a(FTの相同タンパク質)の生産を強力に抑制するブレーキとして機能する.そして,日が短くなると,このブレーキが解除され,花成が誘導されるのである36, 37).さらにHd1は,誘導条件である短日条件の暗期には逆に花成を促進するという二機能性を持つことも知られている.この単一のタンパク質が,日長に応じて活性化因子と抑制因子の二つの顔を使い分ける.この制御の複雑さは,Hd1の機能反転だけにとどまらない.イネは,シロイヌナズナには存在しない独自の花成誘導因子Ehd1を進化させている38).Ehd1はHd1とは独立してフロリゲンの生産を強力に促進できるため,イネは常に花を咲かせようとする潜在的な駆動力を持っている.そして,この駆動力を長日条件下でHd1が二重にロックする.すなわちHd1はフロリゲンHd3aを直接抑制するだけでなく,活性化因子であるEhd1の発現をも抑え込んでいる.
このように,シロイヌナズナが「アクセルを踏む」モデルであるのに対し,イネは「ブレーキを踏んで花成を抑え,短日になるとブレーキを離す」という,抑制と脱抑制を基盤とする制御ロジックを採用している.
3)現実世界からの挑戦(1):実験室と野外の「乖離」
この外的符合モデルは非常に強力だが,そのモデルを支える知見の多くは温度や光が一定に制御された実験室環境で得られたものである.植物が実際に生きる野外に目を向けると,教科書には載っていない,さらに複雑な戦略がみえてくる.近年,実験室で確立されたモデルが,自然環境下での植物の応答を必ずしも正確に予測できない,深刻な乖離が存在することが明らかになってきた.
その象徴的な例が,野外のシロイヌナズナが見せる開花応答である.実験室の長日条件(16時間明期・22°C恒温)とほぼ同じ日長・平均気温の野外でシロイヌナズナを育てたところ,驚くべきことに,実験室育ちの個体よりも顕著に早く開花した.その原因を探ると,FT遺伝子の発現パターンに決定的な違いがみられた.定説であった夕方のFT発現ピークに加え,野外の個体は朝にもう一つのピークを示した39).この朝のFT発現ピークこそが,野外での早期開花を駆動する鍵であった.
では,なぜ実験室ではこの朝のピークが検出できなかったのだろうか? その乖離を生んでいたのは,主に二つの環境要因の単純化にあった.
- 自然光の質(遠赤色光) 遠赤色光(FR)は実験室で汎用される白色蛍光灯にはほとんど含まれないが,太陽光には豊富に含まれている.自然光を模倣し,光源にFRを補光することで初めて,実験室でも朝のFT遺伝子の発現ピークを再現できるようになった.この朝のピークは,FRに特化した光受容体フィトクロムA(phyA)を介して引き起こされる.phyAは一日を通じて照射されたFRの総光量を積算し,それを花成を促進するシグナルへと変換する.実験室というFRが欠乏した特殊な環境が,phyAのこの重要な役割を覆い隠してしまっていたといえる40).
- 周期的な温度変化 もう一つの要因は,自然界では当たり前の,昼夜の周期的な温度変化である.朝晩の涼しさから昼の暖かさへと向かう自然な温度上昇もまた,花成を促進する重要なシグナルとなる.この温度シグナルを花成経路へと伝達する際に中心的な役割を担うのが,COという転写因子である.COはFT遺伝子領域のプロモーター領域やエンハンサーに直接結合することで,FT遺伝子のクロマチン構造を開き,発現を活性化する能力を持つ.前述のFRシグナルに加え昼夜の周期的な温度変化は,朝のCOタンパク質を安定化することが明らかとなった39, 40).さらに近年筆者らは,一日の温度変動はCOと協調的に働くタンパク質との相互作用を変化させることを見いだしつつある.野外ではこうした変化がCOの転写活性に反映され,ひいては朝夕のFT遺伝子発現量のバランスの変化につながるのだろうと考えている.
このように,野外の植物は,日長だけでなく,光の質(FR)や周期的な温度変化という,より豊かで複雑な情報を統合し,花を咲かせるタイミングを最適化している.実験室と野外の乖離は,植物の環境応答の奥深さを示唆している.
4)現実世界からの挑戦(2):時計遺伝子自身の複雑な役割
さらに,時計の「歯車」であるはずの遺伝子が,単なる部品以上の,花成を直接制御する特別な役割を担っていることも示唆されている.これは,時計の時間維持機能と,植物の成長発達を制御する機能が,必ずしも一枚岩ではないことを示している41).
その典型例がGI遺伝子である.GIの異なる機能喪失型対立遺伝子(gi-1とgi-2)は,時計の周期をそれぞれ速くしたり,遅くしたりと正反対の影響を与えるにもかかわらず,花成に対してはどちらも同じ遅咲きという表現型をもたらす42).もし時計の周期が花成時期を直線的に決定するのであれば,この結果は説明不可能である.さらに,gi-201という別の対立遺伝子は,時計の周期への影響は軽微であるにもかかわらず,これも深刻な遅咲き表現型を示す43).これらの事実は,時計機能の異常の深刻さと発生上の表現型の深刻さがまったく比例しないことを示しており,両機能が分離可能であることの強力な証拠となっている.
この遺伝子の二重機能という考え方は,GIタンパク質が,異なるタンパク質と相互作用することで別々の機能を実行する,多機能なハブとして働くという分子基盤によって支持されている.GIは,時計の周期を制御するためにはF-boxタンパク質ZTLと相互作用し,花成を制御するためには青色光受容体でもあるFKF1と相互作用する16, 32).つまり,GIは異なるパートナーと手を組むことで,複数のタスクを並行して実行している.
この機能的分離は,GIに限った話ではない.イネ科植物では,シロイヌナズナの時計遺伝子PRR7のオーソログであるPRR37は,時計のコア機能からほぼ独立し,日長に応答した花成時期を制御する主要な遺伝子へと進化を遂げている44, 45).また,時計が完全に停止したelf3変異体にprr7とprr9の変異を追加すると,時計は壊れたままであるにもかかわらず,早期開花の表現型だけが回復するという興味深い報告もある46).
これらの証拠は,植物の発生制御が,単一の時計からの指令ではなく,時計遺伝子自身が状況に応じて個別の制御因子としても機能する,より複雑でモジュール化されたネットワークによって成り立っていることを示唆している.
本稿では,植物が「時間を測る」ために進化させてきた精巧な分子メカニズムと,動物とは異なるユニークな分散協調システムを概観してきた.そして,その時計が「花を咲かせる」という生命現象に接続される際,教科書的なモデルだけでは到底説明しきれない,現実世界の複雑で巧妙な戦略の一端を明らかにしてきた.
我々は今,時計を構成する個々の部品については,かなり詳しい知見を得ているが,「全身に散らばる無数の自律的な時計をいかにして協調させ,個体として統一した生命活動を生み出しているのか」,そのシステム統合の原理は,ほとんどがブラックボックスのままである.
その謎を解く鍵の一つが,花成ホルモン(フロリゲン)である.フロリゲンの正体がFTタンパク質だと解き明かされてから約20年が経ち,さまざまな器官・組織で得た時間・季節情報を集約し,個体の統一した意思決定,すなわち開花を引き起こす仕組みの解明は,まさに新たなスタートラインに立ったところである.
ところで,この「匂い」を生み出すフロリゲンの話は,思わぬ形で冒頭の歌へと回帰する.一説によると冒頭の和歌には裏の意味があるとかないとか.
「いにし『へ』の奈良の都の八重桜けふ九重(ここの『へ』)に匂ひぬるかな」
この歌に詠まれた「匂ひ」は,通常「美しく咲き誇っている」と解釈されるが,文字どおり「香る」ともとれる.そして,随所に散りばめられた「へ」の文字.この歌が元で「おなら」という言葉が生まれた,という面白い説がある.歌枕である「奈良」が匂いの元とされ,そこに丁寧語の「お」がつき,「お奈良」が転じて「おなら」になったというものである.
一つの言葉が,文脈によって「芳しい花の香り」と「あまり芳しくないガス」という正反対の意味合いを帯びるのは,本稿でみてきた生命現象のアナロジーとして非常に興味深い.たとえばGI遺伝子は,時計の周期を調節する歯車として機能する一方で,パートナーを変えることで花成を制御するスイッチとしてのまったく別の顔も持つ.同じ部品が,異なる文脈でまったく異なる機能を果たす.この生命システムのしたたかな戦略と,言葉が持つ意味の多義性・変遷の間には,どこか通じるものがあるのではないだろうか.
- 光と温度の情報は,細胞内のどこで,どのように統合されるのか?
- 葉と根は,糖やタンパク質以外に,どのような言葉で対話し,時刻を合わせているのか?
- 一つの時計遺伝子は,いかにして「時計の歯車」と「発生の制御因子」という二つの顔を使い分けるのか?
これらの問いは,生命科学に残された最も根源的な謎の一つにつながっている.この謎を解き明かすことは,単に植物の秘密を理解するだけでなく,気候変動下での食料生産といった,人類が直面する課題解決の鍵を握っているかもしれない.
植物が持つ「時間」と「匂い」の仕組みの奥深さを探る旅は,まさに新たな局面を迎えている.