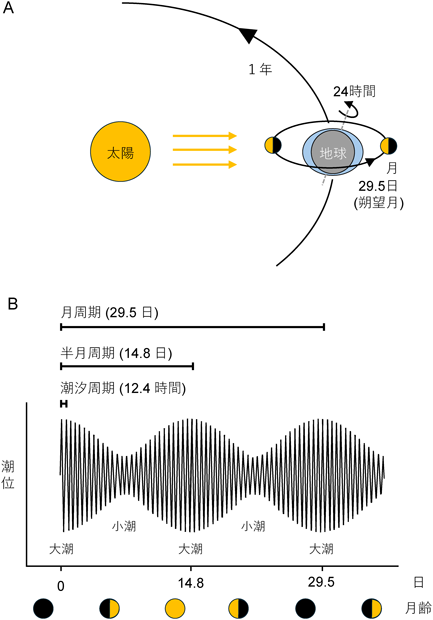
生物は,さまざまな周期的環境変化にさらされ生活している.地球の自転により,太陽光が届く場所では24時間の明暗周期が生じる(図1A).海では,月との引力の影響で海面の高さ(潮位)が12.4時間(月が夜空に南中する周期の半分)ごとに干満を繰り返す.そして,干満の振幅は月齢(月相)に応じて変化し,太陽との引力の関係から振幅が最大になる大潮,最小になる小潮が半月(14.8日)ごとに,夜が明るい満月あるいは真暗の新月がひと月(29.5日)ごとに訪れる(図1B).地球と月の系は月が地球の周りを公転する間(恒星月27.7日)に太陽の周りを一定距離移動するため,月周期(朔望月29.5日)はそれより少し長くなる.
生物はこれら環境周期に合わせた行動や生理機能のリズムを持つ.そのリズムには,環境からの刺激(日の出,日没,潮の干満,月齢など)に反応して生じる外因性リズムと,それら刺激がない恒常条件でも継続する内因性リズムがある.これら生物リズムの中で,多くの生物は内因性の自律リズムとして地球の自転周期に近い約24時間の概日リズムを持つ.また,潮間帯や海にすむ生物の中には潮の干満周期に近い約12.4時間の潮汐リズムで生活するものもいる.さらに,比較的長い時間を要する成長や生殖といった生理機能には,約半月の概半月,ひと月の概月リズムを持つ生物もいる.これらの自律リズムを駆動する機構は「生物時計」と呼ばれる.生物時計には,概日時計,概潮汐時計,概半月時計,概月時計などが知られており,概日時計が駆動する概日リズムには,恒常条件で「自由継続性」,環境周期への「同調性」,環境温度が変化しても周期長がほとんど変わらない「温度補償性」という三つの性質がある1).そして,後述するように概潮汐時計,概半月時計,概月時計が駆動するリズムにもこれらの性質が見いだされることから,生物時計に共通する性質と考えられる.
概日リズムと概日時計については,節足動物門昆虫綱のキイロショウジョウバエDrosophila melanogasterと脊椎動物門哺乳綱のマウスMus musculusでその分子メカニズムの理解が格段に進んだ.しかし,これら2種で示された時計メカニズムがほかの動物門にどれだけ一般化できるかはまだよくわかっていない.概潮汐,概半月,概月リズムについては,海に生息する無脊椎動物を用いて解析されている.これらの分子メカニズムはまだほとんどわかっていないが,近年の分子遺伝学,オミクス解析,分析技術の進歩により,環境因子への同調や概日時計との関連といった側面から,生理機構の解析が進みつつある.本稿では,キイロショウジョウバエ以外の無脊椎動物のリズムに焦点を当て,概日,概潮汐,概半月,概月リズムの生理機構とその多様性について紹介する.概日リズムや概日時計の基本的性質に関しては,ほかの良書を参照されたい2, 3).
これまでにさまざまな動物において概日リズムが報告されてきたが,ここでは脊椎動物,節足動物に次いで研究が行われている軟体動物に焦点を当て,その概日リズムや時計機構を紹介する.軟体動物は比較的大きな神経細胞を持ち,個々の神経細胞の電気生理学的解析から概日リズムのメカニズムが解析されてきた.そして,イオンチャネルのコンダクタンスに明瞭な概日リズムが観察されることから,軟体動物では時計の仕組みを単細胞レベルの生理学でより詳細に解明できる可能性がある.軟体動物では,これまでにジャンボアメフラシAplysia californica(以下,Aplysia)4, 5),ナツメガイの1種Bulla gouldiana(以下,Bulla)6),ヒメリンゴマイマイHelix aspersa7),マダラコウラナメクジLimax maximus8),メリべウミウシMelibe leonine9, 10)などで歩行活動に概日リズムが報告されている.
1)軟体動物の視神経電気的活動にみられる概日リズムと概日時計の所在
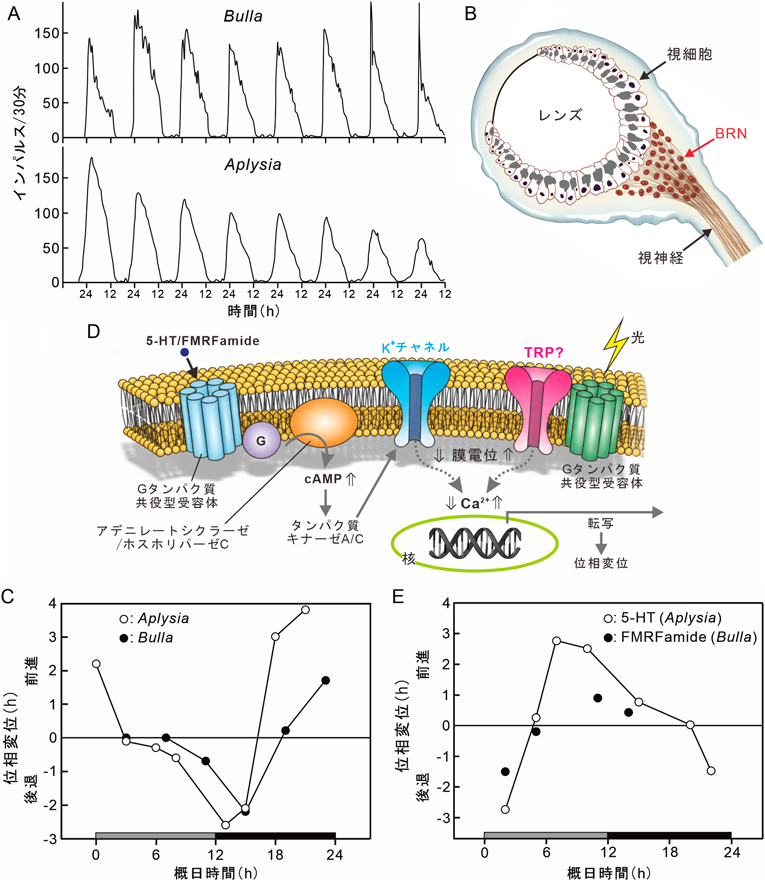
Aplysia11),Bulla6, 12),トゲアメフラシBursatella leachi plei13)では,恒常条件である全暗で眼の視神経から記録される自発性複合活動電位(compound action potential:CAP)の発火頻度に約24時間の概日リズムがある(図2A).このことから,概日時計が眼にあると考えられる.3種とも,CAPの発火頻度は全暗条件で概日時計の昼の位相に相当する主観的昼に高く,夜に相当する主観的夜に低い.Bullaの場合,夜行性の概日活動リズムも眼の時計に依存する6).興味深いことに,昼行性・夜行性にかかわらず,これまで記録された動物の中枢時計の神経活動は昼の時間帯に自発的に高くなることが知られている14, 15).
眼の概日時計の研究はBullaで最もよく進展した.本種の眼のレンズは約1000個の視細胞を含む1層の視細胞層と眼の基底部にある約100~130個の網膜基底ニューロン(basal retinal neuron:BRN)で囲まれる16–18)(図2B).CAP発火頻度にみられる概日リズムは,BRNの細胞膜のK+コンダクタンスが概日変動することで形成されることがin vitroでの電気生理学実験で示された.K+チャネル特異的な阻害剤を用いた実験から夜間(主観的夜)にはK+チャネルが開いてK+のコンダクタンスが増すことで細胞膜が過分極状態となりCAPの発火頻度が減少するが,日中(主観的昼)にはK+チャネルが閉じてK+のコンダクタンスが低下することで細胞膜が脱分極状態となりCAPの発火頻度が増加することが示された19).Michelらは全暗条件で個別培養した単離BRNが概日リズムを示すことを発見し,単一BRN内の時計が眼の概日リズムを駆動することを明らかにした19).これは,当時としては単離細胞一つが概日リズムを駆動することを示した最初の発見であった.また,視細胞層を外科的に除去しても,視神経からのCAPの概日リズムが継続し,光による概日リズムの位相変位(位相前進や位相後退)が観察されることから,BRNには光受容を含めた概日時計機構が存在する可能性がある17, 19).さらに,左右の眼の時計は左右の脳神経節をつなぐ神経血液器官(commissure)を走る神経を介して連絡しており,単一のリズムを出力する20).Aplysiaでは,網膜のBRNに相当するニューロン自身に眼の概日リズムを駆動する時計があるかは議論の余地がある21).
以上のように,Aplysia, Bulla,トゲアメフラシに共通して眼に時計が存在し,CAPのリズムを駆動する.一方,眼の時計が概日歩行活動リズムに関連するかは種によって異なるようだ.眼の破壊実験によりBullaでは歩行活動リズムがみえなくなるが6),Aplysiaやトゲアメフラシでは歩行活動リズムが残ると報告されている13, 22, 23).
2)概日時計の光同調
概日時計の環境周期への同調において,光は最も重要な同調因子である.AplysiaやBullaでは,CAPの概日リズムが光により位相依存的に変化し,主観的夜の前半に与えた光パルスはリズムの位相を後退させ,主観的夜の後半に与えた光パルスは前進させる24, 25)(図2C).この反応はCAPのリズムが概日時計により駆動されることを支持しており,これにより概日時計の周期が環境の24時間に同調する.この系を用いて,時計細胞の光応答機構が電気生理学的にBullaとAplysiaで解析された.
主観的夜の概日時計ニューロンではK+のコンダクタンスが増大し,主観的昼と比較して過分極状態にある.光は時計細胞を脱分極させることがわかっており25),この脱分極にはtransient receptor potential(TRP)のような陽イオンを透過させるイオンチャネルが関与すると考えられている26)(図2D).過分極状態の夜間(主観的夜)に光を受けると脱分極し,リズムの位相変位を起こすと考えられる.一方,日中(主観的昼)では,時計細胞はすでに脱分極した状態にあり光パルスにより細胞はほとんど応答しないため,リズムの位相変位は小さいと考えられる(図2C).概日時計の光による位相変位は,cGMPの増加27),膜の脱分極28, 29)そしてCa2+の流入を介して29–31)引き起こされると考えられている26)(図2D).
3)遠心性シグナルによる時計の位相調節
Aplysia, Bullaともに,眼の概日時計は遠心性シグナルによっても位相調節を受ける.Aplysiaの眼は脳からの遠心性セロトニン(5-HT)ニューロンの投射を受け32),5-HT処理で得られる位相反応曲線は,光による位相反応曲線と約180°ずれた形を示す.つまり,主観的昼の前半で位相後退を,主観的昼の後半で位相前進を示す24)(図2E).5-HTは細胞内のcAMPレベルの上昇を介して時計の位相を変位させる33, 34).一方,BullaではFMRFamideを含む遠心性ニューロンが脳から眼に投射しており35, 36),FMRFamideが5-HTと似た位相反応を示す37)(図2E).5-HTやFMRFamideは網膜の概日時計ニューロンを過分極させ,CAPの発火頻度を低下させ,これがリズムの位相変位につながると考えられている35, 38, 39)(図2D).Aplysiaでは,高K+溶液あるいはK+チャネルの阻害剤であるバリウムを含んだ培養液を用いて視神経活動を記録すると,5-HTで誘導される位相変位が消失する38, 40).以上の結果は,5-HTやFMRFamideによる概日時計ニューロンの膜電位の過分極にK+チャネルが関わることを示唆している(図2D).
最後に,光による位相変位と同様,遠心性の5-HTやFMRFamideによるリズムの位相変位には細胞へのCa2+の流入量の低下も関与すると推測されている.主観的夜に光パルスを与えた場合とは反対に,主観的昼に遠心性シグナルが入力した際には,膜の脱分極状態から過分極への変化に伴ってCa2+の流入量が減少する(図2D).そして,Aplysia, Bullaともに,低Ca2+処理は時計ニューロンを過分極させた場合に得られる位相変位と類似した位相変位を示す30, 41).
4)概日時計遺伝子(タンパク質)の発現
眼の概日時計遺伝子の発現は,AplysiaとBullaで詳細に調べられている.昼行性のAplysiaでは,キイロショウジョウバエの概日時計タンパク質PERIOD(PER)に対する抗体で染まる細胞群が視細胞層の外層にあり,PER陽性シグナルは特に細胞体の細胞質に局在し,視神経を走る神経線維の一部もPER陽性を示す42),さらに,ウエスタンブロッティングによる解析から,眼のPERの量が日周変動することが報告されている42).
夜行性のBullaでも,眼のBRNがPER免疫陽性を示し,Aplysia同様,陽性シグナルは細胞体の細胞質に限定的にみられる42).in situ hybridization(ISH)では,BRNと視細胞の両方にperが発現し,BRNのper染色強度は明期開始後5時間に最も高く,暗期開始後1時間で最も低い日周リズムがみられた.一方,恒暗条件では,BRNのper染色強度にリズムは検出されていない43).眼全体,頭部神経節,あるいは腸に含まれるper mRNAあるいはPERの量には日周変動は検出されないことから,perの発現振動は明暗条件下でBullaのBRNに限定的にみられるようである43).
このように,軟体動物の眼の概日時計の生理機構は主にAplysiaとBullaで精力的に研究されてきた.軟体動物(Bulla)は視細胞層を除去してもCAPに光位相反応が観察されることから,BRN単一細胞に光受容から概日時計の発振までの要素がそろっている可能性がある.軟体動物での概日時計研究は,いまだ解明されていない遺伝子の振動が細胞の周期的活動パターンに変換される仕組みの解明にもつながるかもしれない.今後,遺伝子操作技術などが軟体動物で開発され時計研究が進展することを期待したい.
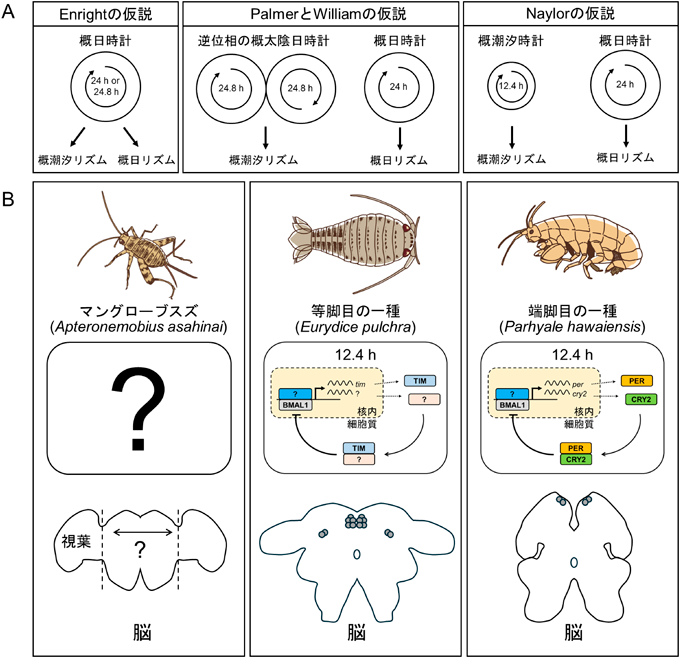
海岸に生息する生物は昼夜だけでなく,周期的な海面の昇降(潮の干満・潮汐)にもさらされている.海岸部でも特に潮間帯は,満潮時に海底となる一方で干潮時には陸となる.このような大きな環境の変化に対応するため,潮間帯に生息する生物は約12.4時間周期の「概潮汐リズム」を示す.最初に概潮汐リズムが報告された無腸動物の1種Symsagittifera roscoffensisは満潮時には砂に潜るが,干潮時には砂上に出現するという行動リズムを示す44).ヨーロッパ北部の海岸に生息する甲殻類(等脚目)の1種Eurydice pulchraは満潮時に海中で活発に遊泳して採餌を行うが,干潮時には砂に潜っている45).さらに軟体動物や昆虫,そして魚に至るまで幅広い生物種が概潮汐リズムを示すことが知られている.また,いくつかの種においては,恒常条件でも活動リズムを継続し(自由継続性),潮汐を模した人工的な撹拌刺激に同調し(環境サイクルへの同調性),かつ温度を変化させてもリズムの周期の長さはほとんど変わらないこと(温度補償性)から,潮汐サイクルに同調した行動リズムが内因性の自律的なリズムであることが示されている.概潮汐リズムを生み出す機構として,これまでに三つの仮説が提唱されてきた(図3A).一つ目はEnrightによる,概日時計が可塑的に24.8時間周期になることで潮汐サイクルに同調して二峰性のリズムを生み出す,すなわち概日時計が概潮汐リズムも生み出すという仮説である46).PalmarとWilliamは概日時計とは別に二つの24.8時間周期の振動体,概太陰日時計(circalunidian clocks)が存在し,それらが互いに逆位相で行動リズムを出力することで,全体として12.4時間周期のリズムを形成しているとした47).さらに,Naylorは12.4時間周期の「概潮汐時計(振動体)」と呼ぶべき時計機構が存在すると提案した48).キイロショウジョウバエやマウスといった強力なモデル生物によって支えられてきた概日リズム研究とは異なり,概潮汐リズムを示す生物の多くは飼育が難しいことや実験系の不足から概潮汐リズムの研究はあまり進んでおらず,その分子基盤はいまだに明らかとなっていない.しかし近年,RNA干渉(RNAi)やゲノム編集といった遺伝子操作技術が非モデル生物でも適用できるようになったことから,いくつかの節足動物を対象として概日時計遺伝子に着目して概潮汐リズムとの関連性について検証されている.
1)マングローブスズでの検証
マングローブ林床にみられるコオロギ,マングローブスズApteronemobius asahinaiは潮間帯に生息する陸生昆虫であるが,干潮時は活発に徘徊し満潮時には小さな塚や木の幹で休息するという概潮汐リズムを示す.また,夜間の干潮時と比べて昼間の干潮時には活動量が低下するという概日リズムがみられる49).このことから,マングローブスズの歩行活動は概日時計と概潮汐時計の二つの生物時計により制御されると考えられている.概日時計の転写翻訳フィードバックループを構成する主要時計遺伝子periodおよびClockをRNAiによりノックダウンすると,どちらにおいても活動における概潮汐リズムは継続するが,概日リズムが消失するという結果が得られた50, 51).さらに,CRISPR/Cas9により樹立されたperiodのノックアウト系統も概潮汐リズムを示すことが報告されている52).これらの結果は,periodやClockはマングローブスズの概日時計に必須であるが概潮汐時計には関与しないことを示唆する.また,多くの昆虫において概日時計が存在することが知られている脳の視葉や,概日時計の出力を担う神経ペプチドPDF(pigment-dispersing factor)に対する免疫陽性ニューロンが概潮汐リズムに必須でないことが切除実験により明らかにされている(図3B)53).以上より,マングローブスズでは概日時計と概潮汐時計は分子レベル,神経細胞レベルで異なる機構であると考えられる.
2)海生甲殻類での検証
興味深いことに,甲殻類を対象とした研究ではマングローブスズとは異なる結果が報告されている.E. pulchraにおいてRNAiにより時計遺伝子period, cryptochrome 2, Bmal1をノックダウンすると,いずれの場合も体表の色素胞拡散における概日リズムが消失する.その一方で,Bmal1のRNAiのみ遊泳活動の概潮汐リズムを阻害し,periodおよびcryptochrome 2のRNAiは影響しなかった54, 55).さらに端脚目の1種Parhyale hawaiensisにおいては,periodやcryptochrome 2については調べられていないが,CRISPR/Cas9によるBmal1のノックアウトが遊泳活動における概日リズム,概潮汐リズムの両方を消失させることが報告されている56).マウスの概日時計のコアとなるフィードバックループではperiodとcryptochrome 2は負の因子である一方,Bmal1は正の因子であることから,概日時計と概潮汐時計は別の分子機構を持つものの,正の因子BMAL1が概日と概潮汐リズム両方の機構に深く関与する,すなわち分子メカニズムとして同じタンパク質を共有するというモデルが想定されている(図3B).
さらに,E. pulchraとP. hawaiensisにおいてはISHを用いて時計遺伝子の発現細胞を脳内にマッピングすることにより,概潮汐リズムを生み出す「概潮汐時計細胞」の同定が試みられた57).逆遺伝学的に概潮汐リズムへの関与が示されているBmal1に関しては脳内の幅広い領域において低レベルで発現していたが,Clockやperiod, cryptochrome 2といったほかの時計遺伝子を共発現する60個以下の時計細胞が前大脳で確認されている.複数のタイムポイントをとって発現パターンを調べると,両種において多くの時計細胞が約24時間周期で時計遺伝子の発現リズムを示した中で,E. pulchraにおいてはtimeless, P. hawaiensisではperiodおよびcryptochrome 2の発現が約12時間周期となる少数の時計細胞が見いだされた(図3B).特にP. hawaiensisでは,これらの時計細胞が明暗サイクルではなく潮汐サイクルを模した撹拌刺激に同調することから概潮汐時計細胞である可能性が指摘されている.この結果より,P. hawaiensisでも概日時計と概潮汐時計は細胞レベルで異なる機構であることが示唆される.
以上をまとめると,少なくとも3種の節足動物においては,同じ分子を共有することはあっても,概日リズムと概潮汐リズムは別個の時計機構によって生み出されているようである.E. pulchra, P. hawaiensisでは約12時間周期の発現リズムを示す概潮汐時計細胞と思われる細胞群の存在から,概潮汐リズムを生み出す時計機構のモデルとしてNaylorの概潮汐時計仮説が強く支持される.マングローブスズでは概潮汐リズムの形成に関与する分子は特定されていないが,少なくとも概日時計が概潮汐リズムを生み出すとしたEnrightの仮説は当てはまりそうにない.マングローブスズとほかの2種では概日時計遺伝子の正の因子が概潮汐時計に組み込まれているかどうかに相違があるが,陸生昆虫と甲殻類で概潮汐時計の進化的起源が同一であるとは考えづらい.P. hawaiensisの概潮汐時計細胞と想定される細胞群ではperiod, cryptochrome 2が12時間周期の発現リズムを刻むが,E. pulchraではperiod, cryptochrome 2ではなくtimelessの発現が12時間の振動を示すという点に違いがある.同じ甲殻類ではあるが,両種の共通祖先は3億年前に分岐していることを考慮すると,概潮汐時計の分子機構が同じでなくとも不思議ではない.また,2種の甲殻類で12時間周期の発現リズムを刻む時計遺伝子についてRNAiやゲノム編集は行われていないので,本当に概潮汐リズムに関与するかは今後の検証が待たれる.
生命現象にみられる半月周リズムあるいは月周リズムは,日周リズムや潮汐リズムに比べると1サイクルの期間が長く,成長や生殖など比較的長時間かかる生理現象にみられる.これは,大潮小潮など月齢に応じた著しい環境変化が起こる場所で,昆虫の羽化などその行動を適切な環境に同期させることに役立つ.また,集団内で生殖活動を同期させ受精効率を上げるという利点もあり,潮位変化のない淡水湖や季節変化の少ない熱帯地域に生息するカゲロウやユスリカの仲間にも明瞭な半月あるいは月周期の生殖リズムが知られている58, 59).
これまでサンゴや魚類など,ほかにも多くの生物に月の周期と一致したリズムが報告されているが,それが内因性の概半月,概月リズムであることが時間生物学的に示された種は少ない.これまでに生物時計が駆動するリズムの3性質(自由継続性,環境への同調性,温度補償性)が示されているのは,概半月リズムでは海藻のアミジグサDictyota dichotoma60),昆虫のツシマユスリカClunio tsushimensis61)とオヨギユスリカの仲間Pontomya oceanis62)の合計3種,概月リズムではゴカイの仲間Syllis prolifera63)の1種のみである.下記に紹介するウミユスリカの仲間やイソツルヒゲゴカイなど自由継続性と同調性のみ示されている例は多く,概半月,概月リズムが進化してきたことは間違いない.
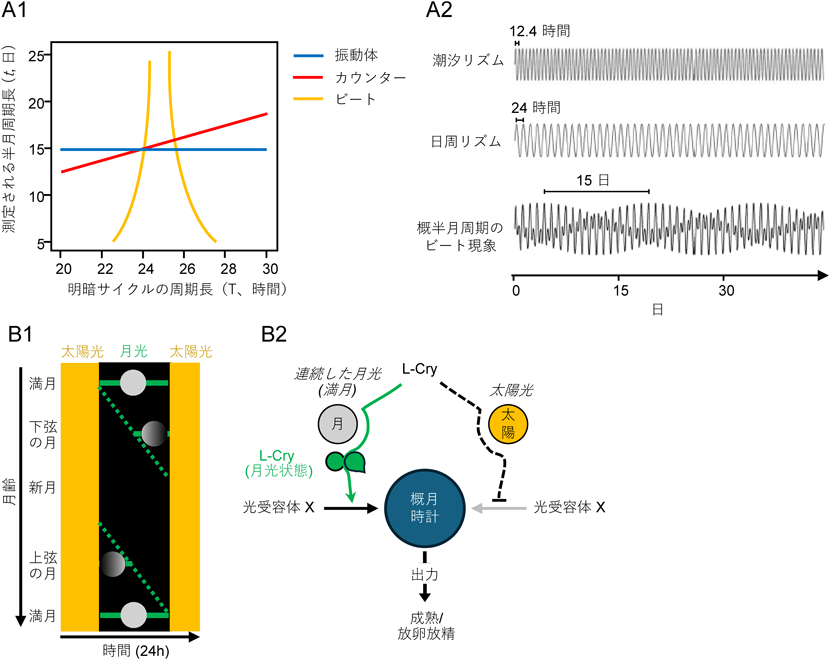
これらリズムを駆動する時計の分子機構についてはまだわかっていないが,次の三つのモデルが提唱されている.それらはa)約15あるいは30日周期を持つ振動体,b)明暗に同調した概日時計のサイクル数を数えるカウンター(周波数積算仮説)64),c)概日時計あるいは概太陰日(circalunidian)時計の振動体と概潮汐時計の振動体のビート65)であり,それぞれの生物で実験生理学的に検証されてきた66).これらは,24時間に比較的近い異なる周期長(T,時間)の明暗サイクルで生物の概半月あるいは概月リズムを観察することにより区別される.明期の長さ+暗期の長さ=Tとすると,Tをたとえば20~30時間に変えた条件で概半月あるいは概月リズムを自由継続させ,その周期(t,日)を調べる(図4A1).振動体モデルの場合,Tの長さはtに影響しない.一方,明暗周期TあるいはTに同調する概日時計のサイクル数を15あるいは30回数えるごとにそれぞれ概半月周期,概月周期を形成するカウンターモデルでは,Tの長さに比例してtが長くなる.ビートモデルとは,Tに同調する概日時計(約24時間)あるいは月の南中周期に同調する概太陰日時計(約24.8時間)と潮汐サイクルに同調する概潮汐時計(約12.4時間)の共鳴(ビート)により約15あるいは30日が作られるというもので(図4A2),概日あるいは概太陰日時計が概潮汐時計と独立する前提で,Tの長さに依存して非線形にtが変化することになる.この考えのもと,概半月,概月時計機構が議論されてきた.
1)海生ユスリカのカウンターモデル
昆虫は陸上で繁栄した動物群であり,二次的に海に生息するようになった昆虫種は少ない.そのような中,昆虫ユスリカの羽化に明瞭な概半月あるいは概月リズムがみられる.ウミユスリカの仲間Clunio marinusやオヨギユスリカの仲間P. oceanaは潮間帯に生息し,成虫期間はわずか数時間と非常に短い.次世代を残すためにはその数時間にうまく交尾,産卵しなければならない.メス成虫は翅を持たないために移動能力は極端に低く,オスに岩場まで運んでもらいそこに卵を産みつける.そのためには,周辺が海水から露出する時間帯を選ぶ必要がある.彼らは大潮の潮が引いている日暮れ時刻ごろに羽化する.つまり,大潮という半月周期で現れる位相と日暮れという日周期で生じる位相が重なるタイミングを正確に知る必要がある.そのため,彼らの羽化のタイミングは概半月時計と概日時計により調節されると考えられる.羽化は一個体にとっては一生に一度のイベントであるが,実験室でさまざまな発育段階のユスリカを集団で飼育すると,毎日日暮れ時刻にそろって羽化が観察される.これは集団リズムと呼ばれ,このユスリカの羽化には長期スケールで明瞭な概半月(地域系統によっては概月)リズムが,短期スケールでは概日リズムがみられる.
これらのユスリカではカウンターモデルを支持する結果が出ている.概半月リズムを示す系統をT=22~30時間の明暗サイクルで飼育すると,概半月リズムはTの長さに反応し,T=30時間では無リズムとなった.また,T=22~26時間ではtがTに応じて長くなり,その変化率はビートモデルではなくカウンターモデルに近いものだった67, 68).もし,振動体モデルが正しければ羽化の概半月周期tはTにほとんど依存しないはずである(図4A1).長周期のTで概半月リズムがなくなったのは,概日時計が同調限界を超えた結果,集団の概半月リズムがみられなくなった可能性がある68).
カウンター機構が想定される24時間の整数倍周期の生物リズムはほかにも知られている.カサノリの1種Acetabularia mediterraneaの成長速度や,渦鞭毛草のゴニオラックスLingulodinium polyedrumの発光強度に7日周期の概「週」リズムが報告されている69, 70).一番短い24時間の整数倍周期では,昆虫のオオクロコガネHolotrichia parallelaやコクロコガネHolotrichia piceaに2日の概「倍」日リズムがある71, 72).オオクロコガネでは,光に対する位相反応には1概倍日周期内に2回の概日パターンが現れること,概日時計が存在すると知られている脳の視葉という領域が概倍日リズムに必須であることなどから,概倍日リズムの形成には概日時計が関わることが示唆されており,カウンターモデルと矛盾はない71–73).7日や2日といった周期は外環境にはほとんど見当たらず,この周期で一周する振動体が進化してきたとは考えにくい.概週や概倍日リズムにもその時計機構にカウンターモデルを当てはめると理解しやすいのではないか.概倍日リズム,概週リズムにおいて周期長Tを変える実験は行われていないが,概倍日,概週,概半月,概月時計機構に共通した概日時計のサイクル数を数えるカウンター機構が存在するのかもしれない.そのサイクル数を数える仕組みはまだまったくわかっていないが,時間生物学において興味深いテーマの一つである.
2)イソツルヒゲゴカイの月への同調メカニズム
イソツルヒゲゴカイPlatynereis dumeriliiは新月の夜に群れを作って放卵放精し,この生殖行動に概月リズムが観察される.この時期,個体の遊泳活動は一日の夜間に上昇し恒常条件で自由継続する概日リズムも示す.これを生かし,本種では概月リズムのメカニズムに概日時計が関与するかという点がより詳細に調べられた.カゼインキナーゼδ/εの抑制剤であるPF-670462を用いると時計遺伝子の発現や遊泳活動にみられる概日リズムが消失するが,概月リズムには影響がみられなかった.このことから,概月時計のメカニズムとして概日時計が関与するビートやカウンターモデルは当てはまらず,振動体モデルが支持されている74).本種の概月振動体の形成には時計遺伝子は必須でないことはわかったが,その分子メカニズムはまだわかっていない.
また,概月リズムの光同調機構についても解析が進みつつある.イソツルヒゲゴカイの生殖活動にみられる概月リズムは月光が同調因子となる74).本種は,月光を用いて月齢(満月,下弦の月,新月,上弦の月)を認識し,体内の概月時計によって調節される生殖の位相を新月に合わせると考えられる.概日リズムの光同調の場合,動物は光受容器を通して明期(明るい時間帯)を検出し,昼行性動物の場合概日時計の主観的昼の活動位相を明期に合わせればよいだろう.一方,概月リズムの月光を用いた光同調の場合は少し複雑である.動物は,まず太陽光と月光を区別する必要がある.そして,月が出ている時間の長さから月齢を判断すると考えられる(図4B1).満月は日没から日の出まで夜を通して観察できるが,下弦の月の場合は日没後しばらくたってから月が出る.上弦の月の場合は日の出よりも早く月は沈む(図4B1).Tessmar-Raibleらのグループはイソツルヒゲゴカイの生息場所(海水深5 cm)に届く太陽光と月光の光量子数を波長ごとに測定し,できる限りそれに近い光源を作製し,概月リズムの光同調機構を調べた75).まず,光受容分子として魚やサンゴでその発現に月周リズムが報告されているクリプトクロム(Cryptochrome:Cry)に注目した.植物の青色光受容体として知られているCryは,動物では光受容体と転写抑制因子の主に二つの機能が知られている.イソツルヒゲゴカイにおいても,光受容体として機能するPdu-L-Cry(L-Cry)と時計遺伝子の転写抑制因子として働くPdu-tr-Cryの2種類が同定された74).そして,最近興味深いことにL-Cryが太陽光と月光に対し異なる光還元状態を形成することにより,二つの光を区別することが示唆された75).
昆虫培養細胞を用いてL-Cryを合成・精製し,サイズ排除クロマトグラフィーと多角度光散乱法から分子サイズを推定したところ,L-Cryは二量体を形成すること,そして発色団としてフラビンアデニンジヌクレオチド(FAD)と結合することが確認された.野外における一日の光変化を想定し,太陽光から月光,太陽光から無光(月の出ていない夜),無光から月光,そして,それぞれの逆順序も合わせ合計6種類のパターンで光源からの光を変化させ(図4B1),波長ごとのL-Cry-FADの吸収スペクトルを測定した.その結果,いずれの変化パターンにおいてもL-Cry-FADは応答し差スペクトルが得られた.これらから,L-Cryは野外で起こる月の出と月の入り時刻を日の出や日没と区別し,夜に月が出ている時間を測定して月齢を判断する可能性がある.著者らは,概月振動体へ入力する光受容体X(月光とおそらく太陽光両方に反応)がL-Cryとは別に存在し,L-Cryは太陽光を受容すると光受容体Xから概月振動体への入力を遮断し,月光を受容するとXからの入力を許可する「ゲートキーパー」の役割を果たすというモデルを提唱している(図4B2).また,L-Cryの二量体はFADの光還元効率が異なる2種類のL-Cry-FAD分子からなり(図4B2の緑),異なるL-Cry-FAD光還元状態の組合わせにより月光状態とその他(太陽光状態)が区別できるという考えが提唱されている.
Cry-FADは光還元反応の途中で生じる励起状態が磁場により影響を受け,動物,特に鳥類の眼において光存在下で磁場受容に関与することが知られており,大変興味深い分子である76).細胞の中で光センサーとして機能するCry分子のさまざまな状態がどのように次のシグナルカスケードに伝わり月光のゲートキーパーや磁場情報として解読されるのか,今後の研究が楽しみである.
概日時計の分子メカニズムとして,約24時間で1サイクルする時計遺伝子の転写翻訳フィードバックループが説明され,脳内の時計細胞間の結合様式もわかってきた.また,リズム同調のための細胞への光入力機構についても解析が進んでいる.一方,時計細胞の出力機構については未解明の部分も多い.個々の時計細胞(神経細胞)がリズムを他細胞に伝えるためには,自身が電気的に興奮して神経伝達物質を分泌する必要がある.どうやって細胞内の転写翻訳フィードバックループが膜の電気的興奮に周期性をもたらすかについては,マウスやキイロショウジョウバエで研究されているが,明確な説明には至っていない77–79).時計細胞のイオンチャネルが関わることは間違いないが,どうやってその開閉状態を24時間周期で変化させるのか? 本稿で紹介したようにナツメガイの1種Bullaではでは時計細胞BRNの膜コンダクタンスに明瞭な概日リズムが示されており,技術開発が進めば時計細胞の電気生理学的解析を進める一つのよい材料になるのではないか.
生物時計の中で概日時計がより広範な生物にみられ,概潮汐,概半月,概月リズムを持つ動物もそれらに加えて概日リズムを持つものも多い.これを考えると,概日時計を基本に,さまざまな周期長を生む時計機構が生まれてきた可能性がある.本稿で紹介した海生甲殻類のE. pulchra, P. hawaiensisの概潮汐リズムには概日時計のコア遺伝子であるBmalが関与すること,ユスリカのC. marinusやP. oceanisの概半月リズムに概日時計を用いたカウンターモデルが当てはまることを考えると,概日時計機構の改変,あるいは概日時計の構成要素を利用したメカニズムにより周期長の異なる時計機構が進化したという考え方に納得がいく.一方,マングローブスズの概潮汐リズムやイソツルヒゲゴカイの概月リズムでは,現時点では概日時計との関わりをサポートする結果は得られておらず,概日時計とは独立に新たな時計機構が作られた可能性も十分ある.
生物時計がさまざまな周期長を作る方法として,本稿で紹介した固定周期を持つ振動体説,振動体の周期分割(1振動体による2位相出力)や積算,複数振動体の共鳴やタイミングをずらした統合といった考え方がある.これまで24時間振動体の分子メカニズムについて研究が進んだが,非24時間周期の振動体はもちろん,振動体の周期分割,積算,共鳴により時間を作る仕組みについてまだ何もわかっていない.生物は多様なリズムを持っており,その仕組みは生物の多様性をながめてこそ理解することができるだろう.
引用文献References
1) 海老原史樹文,吉村崇 編(2012)時間生物学,化学同人.
2) 沼田英治 編(2014)昆虫の時計—分子から野外まで—,北隆館.
3) 富岡憲治,沼田英治,井上愼一(2003)時間生物学の基礎,裳華房.
4) Jacklet, J.W. (1972) Circadian locomotor activity in Aplysia. J. Comp. Physiol. A Neuroethol. Sens. Neural Behav. Physiol., 79, 325–341.
5) Kupfermann, I. (1968) A circadian locomotor rhythm in Aplysia californica. Physiol. Behav., 3, 179–181.
6) Block, G.D. & Davenport, P.A. (1982) Circadian rhythmicity in Bulla gouldiana: Role of the eyes in controlling locomotor behavior. J. Exp. Zool., 224, 57–63.
7) Bailey, S.E.R. (1981) Circannual and circadian rhythms in the snail Helix aspersa Müller and the photoperiodic control of annual activity and reproduction. J. Comp. Physiol. A Neuroethol. Sens. Neural Behav. Physiol., 142, 89–94.
8) Sokolove, P.G., Beiswanger, C.M., Prior, D.J., & Gelperin, A. (1977) A circadian rhythm in the locomotor behaviour of the giant garden slug Limax maximus. J. Exp. Biol., 66, 47–64.
9) Newcomb, J.M., Kirouac, L.E., Naimie, A.A., Bixby, K.A., Lee, C., Malanga, S., Raubach, M., & Watson, W.H. III. (2014) Circadian rhythms of crawling and swimming in the nudibranch mollusc Melibe leonina. Biol. Bull., 227, 263–273.
10) Newcomb, J.M., Lawrence, K.A., & Watson, W.H. III. (2004) The influence of light on locomotion in the gastropod Melibe leonina. Mar. Freshwat. Behav. Physiol., 37, 253–269.
11) Jacklet, J.W. (1969) Circadian rhythm of optic nerve impulses recorded in darkness from isolated eye of Aplysia. Science, 164, 562–563.
12) Block, G.D. & Wallace, S.F. (1982) Localization of a circadian pacemaker in the eye of a mollusc, Bulla. Science, 217, 155–157.
13) Block, G.D. & Roberts, M.H. (1981) Circadian pacemaker in the Bursatella eye: Properties of the rhythm and its effect on locomotor behavior. J. Comp. Physiol. A Neuroethol. Sens. Neural Behav. Physiol., 142, 403–410.
14) Ko, G.Y.-P., Shi, L., & Ko, M.L. (2009) Circadian regulation of ion channels and their functions. J. Neurochem., 110, 1150–1169.
15) Kuhlman, S.J. & McMahon, D.G. (2006) Encoding the ins and outs of circadian pacemaking. J. Biol. Rhythms, 21, 470–481.
16) Bedian, V., Chen, Y., & Roberts, M.H. (1991) Monoclonal antibodies recognize localized antigens in the eye and central nervous system of the marine snail Bulla gouldiana. J. Histochem. Cytochem., 39, 311–319.
17) Block, G.D. & McMahon, D.G. (1984) Cellular analysis of the Bulla ocular circadian pacemaker system III. Localization of the circadian pacemaker. J. Comp. Physiol. A Neuroethol. Sens. Neural Behav. Physiol., 155, 387–395.
18) Jacklet, J.W. & Colquhoun, W. (1983) Ultrastructure of photoreceptors and circadian pacemaker neurons in the eye of a gastropod. J. Neurocytol., 12, 673–696.
19) Michel, S., Geusz, M.E., Zaritsky, J.J., & Block, G.D. (1993) Circadian rhythm in membrane conductance expressed in isolated neurons. Science, 259, 239–241.
20) Roberts, M.H. & Block, G.D. (1983) Mutual coupling between the ocular circadian pacemakers of Bulla gouldiana. Science, 221, 87–89.
21) Block, G.D., Khalsa, S.B.S., McMahon, D.G., Michel, S., & Guesz, M. (1993) Biological clocks in the retina: Cellular mechanisms of biological timekeeping. Int. Rev. Cytol., 146, 83–144.
22) Block, G.D. & Lickey, M.E. (1973) Extraocular photoreceptors and oscillators can control the circadian rhythm of behavioral activity in Aplysia. J. Comp. Physiol. A Neuroethol. Sens. Neural Behav. Physiol., 84, 367–374.
23) Lickey, M.E., Wozniak, J.A., Block, G.D., Hudson, D.J., & Augter, G.K. (1977) The consequences of eye removal for the circadian rhythm of behavioral activity in Aplysia. J. Comp. Physiol. A Neuroethol. Sens. Neural Behav. Physiol., 118, 121–143.
24) Corrent, G., Eskin, A., & Kay, I. (1982) Entrainment of the circadian rhythm from the eye of Aplysia: Role of serotonin. Am. J. Physiol. Regul. Integr. Comp. Physiol., 242, R326–R332.
25) Block, G.D. & McMahon, D.G. (1983) Localized illumination of the Aplysia and Bulla eye reveals new relationships between retinal layers. Brain Res., 265, 134–137.
26) Block, G.D. & Colwell, C.S.(2014) Molluskan ocular pacemakers: Lessons learned. In The Retina and Circadian Rhythms (Tosini, G., Iuvone, P.M., McMahon, D.G., & Collin, S.P. eds.), pp. 213–232. Springer, New York.
27) Eskin, A., Takahashi, J.S., Zatz, M., & Block, G.D. (1984) Cyclic guanosine 3′:5′-monophosphate mimics the effects of light on a circadian pacemaker in the eye of Aplysia. J. Neurosci., 4, 2466–2471.
28) Eskin, A. (1972) Phase shifting a circadian rhythm in the eye of Aplysia by high potassium pulses. J. Comp. Physiol. A Neuroethol. Sens. Neural Behav. Physiol., 80, 353–376.
29) McMahon, D.G. & Block, G.D. (1987) The Bulla ocular circadian pacemaker I. Pacemaker neuron membrane potential controls phase through a calcium-dependent mechanism. J. Comp. Physiol. A Neuroethol. Sens. Neural Behav. Physiol., 161, 335–346.
30) Colwell, C.S., Whitmore, D., Michel, S., & Block, G.D. (1994) Calcium plays a central role in phase shifting the ocular circadian pacemaker of Aplysia. J. Comp. Physiol. A Neuroethol. Sens. Neural Behav. Physiol., 175, 415–423.
31) Khalsa, S.B.S. & Block, G.D. (1988) Calcium channels mediate phase shifts of the Bulla circadian pacemaker. J. Comp. Physiol. A Neuroethol. Sens. Neural Behav. Physiol., 164, 195–206.
32) Takahashi, J.S., Nelson, D.E., & Eskin, A. (1989) Immunocytochemical localization of serotonergic fibers innervating the ocular circadian system of Aplysia. Neuroscience, 28, 139–147.
33) Eskin, A., Corrent, G., Lin, C.-Y., & McAdoo, D.J. (1982) Mechanism for shifting the phase of a circadian rhythm by serotonin: Involvement of cAMP. Proc. Natl. Acad. Sci. USA, 79, 660–664.
34) Eskin, A. & Takahashi, J.S. (1983) Adenylate cyclase activation shifts the phase of a circadian pacemaker. Science, 220, 82–84.
35) Jacklet, J.W., Klose, M., & Goldberg, M. (1987) FMRF-amide-like immunoreactive efferent fibers and FMRF-amide suppression of pacemaker neurons in eyes of Bulla. J. Neurobiol., 18, 433–449.
36) Roberts, M.H. & Moore, R.Y. (1987) Localization of neuropeptides in efferent terminals of the eye in the marine snail, Bulla gouldiana. Cell Tissue Res., 248, 67–73.
37) Colwell, C.S., Khalsa, S.B.S., & Block, G.D. (1992) FMRFamide modulates the action of phase shifting agents on the ocular circadian pacemakers of Aplysia and Bulla. J. Comp. Physiol. A Neuroethol. Sens. Neural Behav. Physiol., 170, 211–215.
38) Eskin, A. (1982) Increasing external K+ blocks phase shifts in a circadian rhythm produced by serotonin or 8-benzylthio-cAMP. J. Neurobiol., 13, 241–249.
39) Koumenis, C. & Eskin, A. (1992) The hunt for mechanisms of circadian timing in the eye of Aplysia. Chronobiol. Int., 9, 201–221.
40) Colwell, C.S., Michel, S., & Block, G.D. (1992) Evidence that potassium channels mediate the effects of serotonin on the ocular circadian pacemaker of Aplysia. J. Comp. Physiol. A Neuroethol. Sens. Neural Behav. Physiol., 171, 651–656.
41) Khalsa, S.B.S. & Block, G.D. (1990) Calcium in phase control of the Bulla circadian pacemaker. Brain Res., 506, 40–45.
42) Siwicki, K.K., Strack, S., Rosbash, M., Hall, J.C., & Jacklet, J.W. (1989) An antibody to the Drosophila period protein recognizes circadian pacemaker neurons in Aplysia and Bulla. Neuron, 3, 51–58.
43) Constance, C.M., Green, C.B., Tei, H., & Block, G.D. (2002) Bulla gouldiana period exhibits unique regulation at the mRNA and protein levels. J. Biol. Rhythms, 17, 413–427.
44) Gamble, F.W. & Keeble, F. (1903) The bionomics of Convoluta roscoffensis, with special reference to its green cells. J. Cell Sci., S2-47, 363–431.
45) Hastings, M.H. & Naylor, E. (1980) Ontogeny of an endogenous rhythm in Eurydice pulchra. J. Exp. Mar. Biol. Ecol., 46, 137–145.
46) Enright, J.T. (1976) Plasticity in an isopod’s clockworks: Shaking shapes form and affects phase and frequency. J. Comp. Physiol. A Neuroethol. Sens. Neural Behav. Physiol., 107, 13–37.
47) Palmer, J.D. & William, B.G. (1986) Comparative studies of tidal rhythms. II. The dual clock control of the locomotor rhythms of two decapod crustaceans. Mar. Behav. Physiol., 12, 269–278.
48) Naylor, E. (1996) Crab clockwork: The case for interactive circatidal and circadian oscillators controlling rhythmic locomotor activity of Carcinus maenas. Chronobiol. Int., 13, 153–161.
49) Satoh, A., Yoshioka, E., & Numata, H. (2008) Circatidal activity rhythm in the mangrove cricket Apteronemobius asahinai. Biol. Lett., 4, 233–236.
50) Takekata, H., Matsuura, Y., Goto, S.G., Satoh, A., & Numata, H. (2012) RNAi of the circadian clock gene period disrupts the circadian rhythm but not the circatidal rhythm in the mangrove cricket. Biol. Lett., 8, 488–491.
51) Takekata, H., Numata, H., Shiga, S., & Goto, S.G. (2014) Silencing the circadian clock gene Clock using RNAi reveals dissociation of the circatidal clock from the circadian clock in the mangrove cricket. J. Insect Physiol., 68, 16–22.
52) Sakura, K., Miyano, R., Ohde, T., Shimizu, Y., Nakata, M., Numata, H., & Goto, S.G. (2025) Genome editing reveals no potential role of the circadian clock gene period in the circatidal rhythm of the mangrove cricket. Biol. Rhythm Res., 56, 724–734.
53) Takekata, H., Numata, H., & Shiga, S. (2014) The circatidal rhyrhm persists without the optic lobe in the mangrove cricket Apteronemobius asahinai. J. Biol. Rhythms, 29, 28–37.
54) Zhang, L., Hastings, M.H., Green, E.W., Tauber, E., Sladek, M., Webster, S.G., Kyriacou, C.P., & Wilcockson, D.C. (2013) Dissociation of circadian and circatidal timekeeping in the marine crustacean Eurydice pulchra. Curr. Biol., 23, 1863–1873.
55) Zhang, L., Green, E.W., Webster, S.G., Hastings, M.H., Wilcockson, D.C., & Kyriacou, C.P. (2023) The circadian clock gene bmal1 is necessary for co-ordinated circatidal rhythms in the marine isopod Eurydice pulchra (Leach). PLoS Genet., 19, e1011011.
56) Kwiatkowski, E.R., Schnytzer, Y., Rosenthal, J.J.C., & Emery, P. (2023) Behavioral circatidal rhythms require Bmal1 in Parhyale hawaiensis. Curr. Biol., 33, 1867–1882.e5.
57) Oliphant, A., Sia, C.Y., Kyriacou, C.P., Wilcockson, D.C., & Hastings, M.H. (2025) Expression of clock genes tracks daily and tidal time in brains of intertidal crustaceans Eurydice pulchra and Parhyale hawaiensis. Curr. Biol., 35, 2802–2815.e5.
58) Hartland-Rowe, R. (1955) Lunar Rhythm in the emergence of an ephemeropteran. Nature, 176, 657.
59) Corbet, P.S. (1958) Lunar periodicity of aquatic insects in lake Victoria. Nature, 182, 330–331.
60) Bünning, E. & Müller, D. (1961) Wie messen Organismen lunare Zyklen? Z. Naturforsch. B. J. Chem. Sci., 16, 391–395.
61) Neumann, D. (1988) Temperature compensation of circasemilunar timing in the intertidal insect Clunio. J. Comp. Physiol. A Neuroethol. Sens. Neural Behav. Physiol., 163, 671–676.
62) Soong, K., Lee, Y.-J., & Chang, I.-H. (2011) Short-lived intertidalmidge Pontomyia oceana have semilunar eclosion rhythm entrained by night light. Mar. Ecol. Prog. Ser., 433, 121–130.
63) Franke, H.D. (1985) On a clocklike mechanism timing lunarrhythmic reproduction in Typosyllis prolifera (Polychaeta). J. Comp. Physiol. A Neuroethol. Sens. Neural Behav. Physiol., 156, 553–561.
64) Gwinner, E. (1973) Circannual rhythms in birds: Their interaction with circadian rhythms and environmental photoperiod. J. Reprod. Fertil. Suppl., 19, 51–65.
65) Neumann, D. (1976) Entrainment of a semilunar rhythm. In Biological Rhythms in the Marine Environment (DeCoursey, P.J. ed.), pp. 115–127, University of South Carolina Press, Columbia, SC.
66) Kaiser, T.S. & Neumann, J. (2021) Circalunar clocks—Old experiments for a new era. BioEssays, 43, e2100074.
67) Soong, K. & Chang, Y.-H. (2012) Counting circadian cycles to determine the period of a circasemilunar rhythm in a marine insect. Chronobiol. Int., 29, 1329–1335.
68) Neumann, J., Rajendra, D., & Kaiser, T.S. (2024) The free-running circasemilunar period is determined by counting circadian clock cycles in the marine midge Clunio marinus. J. Biol. Rhythms, 39, 379–391.
69) Cornelissen, G., Broda, H., & Halberg, F. (1986) Does Gonyaulax polyedra measure a week? Cell Biophys., 8, 69–85.
70) Schweiger, H.G., Berger, S., Kretschmer, B., Mörler, H., Halberg, E., Sothern, R.B., & Halberg, F. (1986) Evidence for a circaseptan and a circasemiseptan growth response to light/dark cycle shifts in nucleated and enucleated Acetabularia cells, respectively. Proc. Natl. Acad. Sci. USA, 83, 8619–8623.
71) Kawasaki, Y., Nishimura, H., & Shiga, S. (2017) Plausible link between circa‘bi’dian activity rhythms and circadian clock systems in the large black chafer Holotrichia parallela. J. Exp. Biol., 220, 4024–4034.
72) Shiga, S., Omura, Y., Kawasaki, Y., & Watanabe, K. (2022) Phylogenetic separation of Holotrichia species (Insecta, Coleoptera, Scarabaeidae) exhibiting cir-cadian rhythm and circa‘bi’dian rhythm. Zool. Sci., 39, 227–235.
73) Watanabe, K. & Shiga, S. (2020) The optic lobe-pars intercerebralis axis is in-volved in circa‘bi’dian rhythm of the large black chafer Holotrichia parallela. J. Comp. Physiol. A Neuroethol. Sens. Neural Behav. Physiol., 206, 819–829.
74) Zantke, J., Ishikawa-Fujiwara, T., Arboleda, E., Lohs, C., Schipany, K., Hallay, N., Straw, A.D., Todo, T., & Tessmar-Raible, K. (2013) Circadian and circalunar clock interactions in a marine annelid. Cell Rep., 5, 99–113.
75) Poehn, B., Krishnan, S., Zurl, M., Coric, A., Rokvic, D., Häfker, N.S., Jaenicke, E., Arboleda, E., Orel, L., Raible, F., et al. (2022) A Cryptochrome adopts distinct moon- and sunlight states and functions as sun- versus moonlight interpreter in monthly oscillator entrainment. Nat. Commun., 13, 5220.
76) Wiltschko, R., Nießner, C., & Wiltschko, W. (2021) The magnetic compass of birds: The role of cryptochrome. Front. Physiol., 12, 667000.
77) Cao, G. & Nitabach, M.N. (2008) Circadian control of membrane excitability in Drosophila melanogaster lateral ventral clock neurons. J. Neurosci., 28, 6493–6501.
78) Sheeba, V., Gu, H., Sharma, V.K., O’Dowd, D.K., & Holmes, T.C. (2008) Circadian- and light-dependent regulation of resting membrane potential and spontaneous action potential firing of Drosophila circadian pacemaker neurons. J. Neurophysiol., 99, 976–988.
79) Belle, M.D., Diekman, C.O., Forger, D.B., & Piggins, H.D. (2009) Daily electrical silencing in the mammalian circadian clock. Science, 326, 281–284.