Online ISSN: 2189-0544 Print ISSN: 0037-1017
公益社団法人日本生化学会 The Japanese Biochemical Society
Journal of Japanese Biochemical Society 98(2): 238-244 (2026)
doi:10.14952/SEIKAGAKU.2026.980238

特集Special Review

哺乳類概日時計の分子メカニズムにおけるリン酸化制御Phosphorylation-based regulation on mammalian circadian clockwork

1 東京都医学総合研究所Tokyo Metropolitan Institute of Medical Science ◇ 〒156–8506 東京都世田谷区上北沢2–1–6 東京都医学総合研究所 ◇ 2–1–6 Kamikitazawa, Setagaya-ku, Tokyo 156–8506, Japan

2 東京大学大学院理学系研究科Graduate School of Science, The University of Tokyo ◇ 〒113–0033 東京都文京区本郷7–3–1 東京大学本郷キャンパス理学部2号館 ◇ University of Tokyo, Hongo Campus, Faculty of Science Bld. 2, 7–3–1 Hongo, Bunkyo-ku, Tokyo 113–0033, Japan

発行日:2026年4月25日Published: April 25, 2026
HTMLPDFEPUB3

哺乳類の概日時計は,どのような仕組みで24時間をカウントしているだろうか.本稿では,時計遺伝子研究の発見史を概観し,E-boxを中心とした転写フィードバック仮説が提唱されるに至った背景を整理する.さらに,この制御に深く関わる時計タンパク質のリン酸化について,最新の知見を紹介する.とりわけ,著者が2009年に質量分析により同定したCLOCKリン酸化に焦点を当て,2024年の続報でノックアウト・レスキュー技術を用いてその生理的重要性を示した成果を解説する.加えて分子機構として,PERがCKIキナーゼをCLOCK-BMAL1複合体へリクルートし,リン酸化依存的に同複合体がE-boxから解離して転写抑制へ至る「displacement型」抑制モデルを説明する.

1. はじめに

心拍,体節リズム,概日リズム,季節応答,竹の一斉開花など,秒単位から年単位まで,さまざまな時間スケールでリズム性を持つ生命現象が存在するが,この「時」を計る実体は何だろうか.我々は,周期的でリズミックな現象や時をカウントするタイマーのような仕組みに着目し,その時を計る分子メカニズムをタンパク質レベルで理解する学問を「時間タンパク質学(Chronoproteinology)」と定義して研究を展開している.この学問領域にご興味のある方は,本特集とともに領域HP(https://chronoproteinology.org)もご参照されたい.

さまざまなリズム現象の中でも,24時間周期で毎日繰り返されるリズムは日内リズム(または日周リズム,daily rhythm,diurnal rhythm)と呼ばれる.睡眠・覚醒のリズムに加えて,体温や血圧,さまざまなホルモンの分泌に時刻依存性がみられ,各臓器の機能パフォーマンスは必要な時刻に高くなる.これら日内リズムは,光や温度などの環境サイクルに単純に応答しているわけではなく,たとえば,実験室において,光条件も温度条件も一定にした環境で生物を飼育しても,約24時間周期でさまざまな生理機能リズムが観察される.重要なことに,この周期はぴったり24時間ではなく,「約」24時間であり,その周期には個体差もみられる.たとえば,周期が23.5時間の個体は毎朝起きる時間が30分ずつ早くなっていき,周期が24.5時間の個体は毎朝起きる時間が30分ずつ遅くなっていく.これらの知見から,生物には体内に自律的に振動する時計機構が存在すると考えられており,その仕組みは概日時計(circadian clock)と呼ばれる.また,外部環境の周期的サイクルを完全に排除した条件でも約24時間周期で規則的に繰り返される現象は,概日リズム(circadian rhythm)と呼ばれる.概日時計,概日リズム,日内リズムという専門用語の違いがあいまいだった読者もいたかもしれないが,日内リズムは環境サイクルがある状態での24時間周期のリズムで,概日リズムは環境サイクルがない状態での約24時間周期のリズム,そして概日時計はその約24時間をカウントする仕組みのことである.なお,circadianという単語は,circa(約または概ね)+dies(day・1日)というラテン語に由来する.

我々が現在時刻を知りたいときには,腕時計や携帯電話などの時刻を確認するが,我々の脳はどのようにして現在時刻を知るのだろう.まず,概日時計は全身のどこにあるのかを考えると,視床下部の視交叉上核(suprachiasmatic nucleus:SCN)と呼ばれる脳領域が中枢時計として機能することが知られている.SCNを破壊した動物は活動量のリズム性を失い,昼夜を問わず寝たり起きたりを繰り返すようになる.また,遺伝的変異で周期が短い動物からSCNを取り出して野生型に移植すると,その動物の行動リズム周期は短くなる1).これらの実験結果からもSCNが重要であることは間違いないが,実は全身の約37兆個の細胞一つ一つの中に概日時計は存在し,個々の細胞の中で自律的に振動していることがわかっている2, 3).たとえばヒトの皮膚から細胞を取り出して培養しても,ディッシュ上で明瞭な概日リズムが観察される.しかし,37兆個の時計が,それぞれ別々の時刻を指し示すと今が何時なのかがわからないため,これら個々の細胞の時計は臓器内で,また個体の中で適切なシグナルにより互いに同期し,個体としての機能リズムを生み出しているのである.さらに,この自律的な振動は,外界の環境サイクルを受けて毎日微調整されることにより,地球の環境サイクルに適応している.体内の時計振動を,今日の時刻情報を用いて微調整することにより,明日をより正確に予知するという有利性を生物に与えるのである.しかし現代社会において,グローバル化や交代勤務による慢性的な時差ボケ,および不規則な生活に伴う深夜の光照明により,有利に機能するはずの概日時計が撹乱され,多くの現代病の発症へとつながっている.事実,時計遺伝子の変異により生まれつき体内時計が乱れた変異マウスは,全身の生理機能にさまざまな異常がみられることが報告されており,その医学的な重要性は明白である.本稿では,概日時計が約24時間周期で自律的に振動する,その分子的な仕組みについての知見を紹介する.

2. 時計遺伝子による転写・翻訳のフィードバック機構

2017年のノーベル生理学・医学賞は,時計遺伝子Periodの発見と転写フィードバックループ仮説を提唱したHall, Rosbash, Youngの3名が受賞した.ここで時計遺伝子の転写と翻訳を介したフィードバックループ仮説について説明する.1971年,KonopkaとBenzerはショウジョウバエを用いた順遺伝学から,活動量の概日リズムに異常がみられる三つの変異系統(それぞれ約19時間周期,約28時間周期,そして周期性がない系統)を単離したことを報告した4).これらはX染色体の一つの遺伝子座に起因することが判明し,この遺伝子座はperiod(per)と名づけられた.1984年,これらの変異ショウジョウバエ系統を受け継いだ研究者らによりper遺伝子がクローニングされた.これが世界で最初の時計遺伝子の発見である.なお,神経遺伝学の父とされるSeymour Benzer(1921–2007)は2017年時点ですでに逝去しており,per遺伝子のクローニングに関わった3名がノーベル賞を受賞した.1990年,Hardinらがper遺伝子のmRNA量が概日リズムを示すことを示し,その振動にPERタンパク質が負のフィードバック制御で関与するという仮説を提唱した.フィードバック制御とは,反応系の出力情報を入力側に戻し,その値に応じて系の働きを調整する制御である.室内エアコンを例にするとわかりやすい.夏場には外気の熱が流入して室温は徐々に上がる.設定温度を超えるとエアコンの冷却出力が強まり室温は下がる.逆に設定温度を下回るとサーモスタットが働いて出力が弱まる.ここで,室温を感知して出力が調節されるまでに時間遅れが生じると,条件次第で室温は周期的に変動する.振動の大きさや周期はこの時間遅れに影響を受ける.つまり,per遺伝子のmRNA量が徐々に上昇すると時間遅れを持ってPERタンパク質が細胞内に蓄積し,これが負のフィードバック制御としてper遺伝子の転写を抑制することで,そのmRNA量が周期的に変動する,というモデルである.

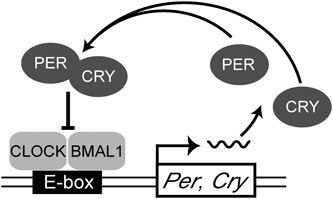
per遺伝子の転写フィードバック制御が概日時計の本質であるという仮説に対して,PERタンパク質にはDNA結合ドメインがないことから,per遺伝子単独では時計が振動する可能性は低く,perの転写を制御する転写因子の存在が示唆されていた.このような背景において,マウスを用いた大規模な順遺伝学が実施され,1994年には行動リズムが長周期になるマウスが単離された5).1997年には,この長周期マウスの原因遺伝子として哺乳類で最初の時計遺伝子Clockがクローニングされた.重要なことにCLOCKタンパク質にはbHLH(basic helix-loop-helix)型のDNA結合ドメインが含まれていた.Clock遺伝子の発見を皮切りに,マウスにおける時計遺伝子の同定ラッシュが始まる.ほぼ同時期に,ショウジョウバエper遺伝子のホモログとしてマウスPer1遺伝子が同定された.なお,マウスやヒトでは機能重複した三つのPer遺伝子が存在する.CLOCKタンパク質は待望の転写因子であったにもかかわらず,単独ではPer1遺伝子の転写を活性化できないことが判明した.1998年にはCLOCKをベイトにtwo-hybridアッセイが行われ,その相互作用パートナーとしてBMAL1が同定された.CLOCKとBMAL1は,二量体(ヘテロダイマー)を形成してCACGTG型のE-box配列に結合し,Per遺伝子の転写を活性化することが示された.またほぼ同時期に,ショウジョウバエで光依存的な時計タンパク質の分解に関与すると考えられていたcryptochrome(cry)遺伝子のマウスホモログが,PERと協調してE-box依存的な転写活性を抑制する時計遺伝子であることが明らかになった.こうして1~2年の間に哺乳類の転写フィードバック制御に関わる時計遺伝子が次々と同定され,以下のモデルが提唱された.すなわち,bHLH-PAS型の転写因子CLOCKとBMAL1がPerやCry遺伝子近傍のE-boxに結合すると転写が活性化され,転写・翻訳されたPERとCRYタンパク質は核内に移行してCLOCK-BMAL1複合体と相互作用することでE-box依存的な転写活性を抑制する.その後,PERとCRYがゆっくり分解されて転写抑制が解除されると,CLOCK-BMAL1による転写が再び活性化する.この転写と翻訳を介した負のフィードバックループが約24時間で1サイクルすることにより,概日時計が自律振動するという仮説である6)(図1).

Journal of Japanese Biochemical Society 98(2): 238-244 (2026)

図1 時計遺伝子の転写・翻訳を介したフィードバックループ

転写因子CLOCKとBMAL1がE-boxに結合する.転写・翻訳されたPERとCRYタンパク質はCLOCK-BMAL1依存的なE-boxの転写活性化を抑制する.この負のフィードバックループが約24時間で1サイクルする.

その後の研究技術の発展により,ChIP-Seq解析が行えるようになった.ChIP-Seqとは,標的タンパク質が結合したDNAを回収してDNAシーケンスにより網羅的に同定するゲノム解析法である.まず細胞内でタンパク質とDNAを架橋し,クロマチンを断片化する.次に標的タンパク質に対する特異的抗体で免疫沈降し,タンパク質に結合していたDNA断片を回収する.得られたDNAをシーケンサーで配列決定してゲノムへマッピングすると,その読まれた頻度が結合量の指標となり,どのゲノム領域にどの程度強く結合しているかを評価できる.ChIP-Seq解析の結果,CLOCKとBMAL1は,PerやCry遺伝子の近傍に位置するE-boxだけでなく,マウス肝臓において数千のゲノム領域に結合しており,その結合量は明瞭な概日リズムを示した7, 8).つまり,昼にはCLOCKとBMAL1がE-boxに結合して遺伝子の転写が活性化され,夜にはPERとCRYタンパク質がCLOCK-BMAL1複合体と相互作用してE-box依存的な転写活性を抑制した後,CLOCKとBMAL1がDNA上にそのまま残るのではなく,転写抑制の時刻にはCLOCK-BMAL1複合体がE-boxから解離するのである.また,ChIP-Seq解析からはCLOCK-BMAL1がゲノムのどこに結合しているかがわかるため,そのデータを精査することでCLOCKとBMAL1が好む塩基配列モチーフを解読できる.我々は,CLOCK-BMAL1はCACGTG型の典型的E-boxだけでなく,特定の1~2塩基のミスマッチを許容した非典型的E-boxモチーフにも時刻依存的に結合し,転写リズムに寄与することを示した8).これらの知見の蓄積は,転写抑制期にE-boxからCLOCK-BMAL1が解離することが概日時計の重要な1ステップであることを示唆している.

3. CLOCKとBMAL1のリン酸化リズム

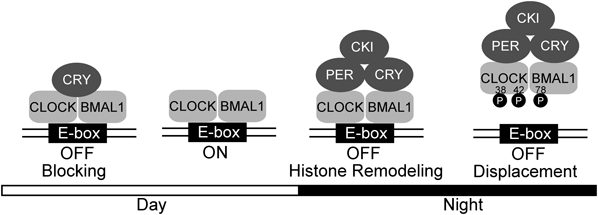
ここまで,E-boxを中心とした転写・翻訳フィードバックループについて説明してきたが,次にPERとCRYがどのようなメカニズムでE-box活性を抑制するのかについて説明する.PERとCRYは多層的な機構でCLOCK-BMAL1依存的なE-box活性を抑制すると考えられている(図2).たとえば,CRYはE-box上のCLOCK-BMAL1複合体に結合すると,クロマチン再編成因子をE-box近傍にリクルートして直接的に転写活性を抑制する.興味深いことに,E-boxの近傍では時刻依存的にユークロマチン状態とヘテロクロマチン状態が切り替わっていることがわかっている9).従来,DNAのヘテロクロマチン化とは,発生や細胞分化の文脈で特定の遺伝子をその細胞でまったく発現させないように,その遺伝子のゲノム領域を核膜のすぐ内側,つまりポリメラーゼによる転写が起こる核内中心領域から外に追い出す仕組みと捉えられていた.しかし,概日時計は数千の遺伝子のゲノム領域に対して,数時間という時間スケールでクロマチン状態を切り替え,核内でのゲノム構造を動的に制御していることがわかっている.CRYはこのようなクロマチン状態の制御に加えて,明け方に単独で転写活性化を遮断(blocking)し,次のサイクルがリスタートするタイミングを決定すると考えられている7, 10).このようにCRYはE-boxに結合した状態のCLOCK-BMAL1に対して転写抑制効果を持つ一方で,PERはCLOCK-BMAL1をE-boxから引きはがす(displacement)というまったく異なる様式でE-box活性を抑制すると考えられている10, 11).マウスの組織細胞内では,CLOCKとBMAL1のタンパク質量および核内量は一日を通して比較的一定だが,CLOCKとBMAL1は時刻依存的に巨大なタンパク質複合体を形成し12, 13),明瞭なE-box結合リズムを示す7, 8).このE-box結合リズムに,PERによるdisplacement型抑制が寄与しているのではないかと考えられている11).ここでは,我々がPERによるdisplacement型抑制の分子メカニズムを発見する14)に至った経緯を説明する.

Journal of Japanese Biochemical Society 98(2): 238-244 (2026)

図2 マルチステップなE-box抑制メカニズム

PERとCRYによるE-box活性の抑制には複数の状態(ステップ)の存在が報告されている.本稿では特に,夜の後半のdisplacement型の転写抑制についてその分子メカニズムの理解を紹介する.

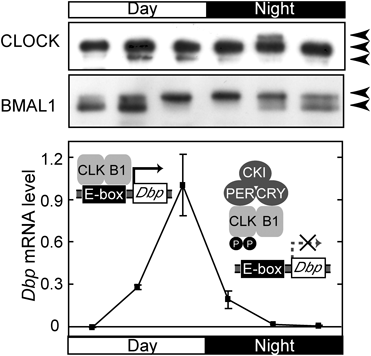
この分子メカニズムの理解に向けた研究をひもとくと,筆者が学部4年生として東京大学理学部生物化学科の深田吉孝研究室に参画した2002年まで遡る.筆者は当時,転写フィードバックループが自律振動する分子メカニズムに興味を持ち,タンパク質複合体の生化学的解析を目指し,第一段階としてCLOCKとBMAL1を特異的に認識する抗体の作製に着手した.CLOCKとBMAL1は比較的大きなタンパク質であるため,その部分ドメインを大腸菌に発現させて精製したタンパク質をマウスに免疫した.血中抗体価が上昇したマウスから脾臓を取り出し,脾細胞をミエローマ細胞と融合することにより,ハイブリドーマのライブラリーを作製した.ハイブリドーマとは1種類の抗体を分泌する増殖性の細胞である.最終的に,このライブラリーから特異的な抗体を分泌する細胞を単離することに成功し,モノクローナル抗体を作製した15).マウス肝臓を実験材料に,自作した抗体でCLOCKとBMAL1の生化学的解析をスタートした.部分精製したCLOCK-BMAL1を含むタンパク質複合体をウエスタンブロット解析すると,CLOCKとBMAL1に由来するシグナルの電気泳動ゲル上のバンドは1本ではなく複数本として検出され,その移動度が肝臓をマウスから摘出した時刻によって変化することに気づいた.その後の詳細な解析の結果,BMAL1は夕方にピークとなるリン酸化リズムを示すのに対して,CLOCKは夜間にピークとなるリン酸化リズムを示すことが判明した15)(図3).ただしこの「ピーク時刻」とは,あくまでバンドの移動度に影響する複数のリン酸化部位が示す総和によることに注意が必要である.その後,マウス肝臓から自作抗体で精製したCLOCKを質量分析に供することにより,CLOCKのDNA結合ドメインbHLHに位置するSer38とSer42,そして天然変性ドメインIDRに位置するSer427がリン酸化されていることを発見した15).ルシフェラーゼ・レポーターアッセイ(luciferase reporter assay)において,Ser38とSer42のAsp置換(リン酸化模倣)はCLOCK-BMAL1による転写活性化を相加的に阻害した15).同様に,電気泳動移動度シフトアッセイ(electrophoretic mobility shift assay:EMSA)において,これらAsp変異がCLOCK-BMAL1のDNA結合能を相加的に低下させた15).これらの結果は,CLOCKのリン酸化がE-boxとの相互作用を不安定化させることで転写抑制に寄与しうることを示唆する.ただし当時は,実際にこれらのリン酸化が,転写フィードバックループが自律振動する分子メカニズムにどのように寄与するのか,という重要な問いに,答えを出すことはできなかった.

Journal of Japanese Biochemical Society 98(2): 238-244 (2026)

図3 時計タンパク質CLOCKとBMAL1のリン酸化リズム

上段:マウス肝臓核内のCLOCKとBMAL1のウエスタンブロット解析.下段:マウス肝臓のDbp遺伝子のRT-PCR解析.E-box依存的な転写産物は夕方にその発現量のピークを迎えるが,このときBMAL1のバンドシフト(リン酸化)がピークとなる.一方で,CLOCKのリン酸化はE-box活性が抑制される時刻にピークとなる.リン酸化により複数検出されるバンドを矢尻で示した.

その後,タンパク質の生化学的な理解をさらに進めたのがSancar研究室である.着実に研究成果を積み上げ,PERとCRYがどのように協調してCLOCK-BMAL1の転写活性を抑制するかを示した.CRYは単独でもin vitroでE-boxモチーフ上のCLOCK-BMAL1複合体に結合して抑制できる.それに対してPERは,単独では効果が弱いが,CRYと協調して,さらにCK1δ/εをリクルートすることで,時計タンパク質複合体をDNAからdisplacementさせる.in vitro再構成とin vivoの両アプローチにより,SancarらはCK1δによるCLOCKのPER依存的リン酸化が,CLOCK-BMAL1のE-boxからのdisplacementを促進することを示した11).注目すべきは,このリン酸化依存的displacementはin vivoではPER依存である一方,in vitroでは反応系のキナーゼ濃度を十分に高くするとPER非依存でも起こりうる点である11).以上の結果から,転写抑制因子PERのタンパク質機能の本質は,アダプターとしてCLOCK-BMAL1複合体近傍のCK1δ/εの局所濃度を高めることであり,これがCLOCKのリン酸化を促進していると考えられる.つまり,PERがCRYやCK1と協調してCLOCKのリン酸化を促進し,その結果としてDNA結合が弱まって転写抑制へ至る,というモデルである.しかし,こうしたリン酸化が概日リズム周期の決定や振動子の安定性にどの程度寄与するのかは,明確ではなかった.

4. PER-CK1依存的なCLOCK-BMAL1のリン酸化による「displacement型」抑制

このような背景において我々は,CLOCK-BMAL1複合体の結合ドメインに存在する特定残基のリン酸化が,PER2依存的displacement機構を介して概日時計をどのように制御するかを検証した14).まず,NIH3T3細胞に対してCRISPR-Cas9を用いてClock遺伝子またはBmal1遺伝子を欠損させると,概日リズムが完全に消失した.このことはCLOCKとBMAL1が培養細胞における時計振動に必須であることを意味する.さらにClock-KOやBmal1-KO細胞において,それぞれCLOCKまたはBMAL1を過剰発現すると明瞭な概日リズムが回復することを確認した14).このノックアウト・レスキューの実験系において,いずれか片方の発現量のみを操作しても周期長への影響は小さく,freeなタンパク質の量ではなくヘテロ二量体の量が時計機能にとって重要であることが示唆された.次に,CLOCKとBMAL1のbHLHドメインにおける全Ser/ThrをAlaに置換した非リン酸化模倣変異体を作製した.これらの変異体は明瞭な概日リズムを誘導できたが,回復した概日リズム周期は有意に短縮した14).この周期決定に重要なリン酸化部位を絞り込んだ結果,最終的にCLOCKのSer38とSer42,そしてBMAL1のSer78が中核残基であることが判明した.すなわち,CLOCKのSer38とSer42をAla置換してリン酸化されないようにしたCLOCK変異体は,概日リズムの周期を短縮した.一方で,同じ部位をAsp置換(リン酸化模倣)すると概日リズムが完全に消失した.同様に,BMAL1のSer78のAla置換は短周期化,リン酸化模倣はリズム消失を導いた14).以上の結果は,CLOCK-BMAL1複合体のDNA結合ドメインに位置するCLOCK-Ser38/Ser42とBMAL1-Ser78のリン酸化制御が,概日時計のリズム誘起と周期決定において重要な役割を担うことを示唆している.

前節で説明したように,CLOCKのSer38とSer42はマウス肝臓において,PERがCLOCKとBMAL1に結合する夜の時刻にリン酸化されている部位として我々が同定した部位であり,この部位のリン酸化模倣はE-boxへの結合能を低下させることを報告していた15).哺乳類概日時計の数理モデルKim–Forgerモデルに基づくシミュレーションは,我々の実験結果とよく一致した.つまり,非リン酸化模倣変異がPER2依存的なCLOCK-BMAL1複合体のE-boxからのdisplacementを弱め,その結果,周期短縮をもたらす一方,リン酸化模倣変異はDNA結合を低下させてリズム消失に至ると予測した14).この数理モデルによる予測に対して,ルシフェラーゼ・レポーターアッセイおよびDNAプルダウン質量分析を用いて実験的に検証した.実際,CLOCKとBMAL1の非リン酸化模倣変異によりE-box依存的な転写活性はわずかに上昇し,PER2依存的な抑制への感受性が低下した一方,CRY1による抑制は影響を受けなかった14).なお,SerからAlaへの置換はCLOCK-BMAL1のE-boxへの結合とその転写活性を高めると予想されるため,もしこれらの効果が一日中持続するなら周期延長が予測される.一方で,これらの効果が抑制時に限定的でPER2依存的なdisplacementのみに有効である場合には,周期短縮が予測された14).また,CLOCK-Ser38/Ser42とBMAL1-Ser78でのリン酸化のピークがPER依存的な抑制が起こるタイミングであると予想され,CLOCK-BMAL1が時刻特異的にDNAから解離する事実とよく一致した.以上の結果,PER2が(おそらくCK1などの)リン酸化酵素をリクルートしてCLOCK-Ser38/Ser42およびBMAL1-Ser78のリン酸化を誘導し,E-boxからのCLOCK-BMAL1複合体のdisplacementを促進する,という結論に至った(図2).

5. PER依存的なdisplacement型抑制に関する未解決課題

CLOCK-Ser38/Ser42およびBMAL1-Ser78をリン酸化するキナーゼの実体はいまだ確定していない.PERがアダプターとして機能し,CLOCK-BMAL1複合体近傍のCK1δ/εの局所濃度を高めて当該残基をリン酸化し,E-boxからのdisplacementを促進するというモデルは提案されているが11, 14),CK1がこれらの部位を直接標的とする生化学的検証は不足している.さらに,CLOCKとBMAL1は複数のキナーゼによってリン酸化されることが知られており,概日リズム周期の決定と転写フィードバック制御におけるリン酸化制御の役割を理解するためには,この未解決課題に決着をつける必要がある.次に重要な未解決課題は,CK1δ/ε依存的なリン酸化の時空間的制御を細胞内でどう実現しているかを明らかにすることである.特に,PER-CRY複合体がどのようにクロマチン上のCLOCK-BMAL1複合体へCK1をリクルートするのかの詳細なメカニズムは,いまだ不明である.先行研究は,CK1δ/εがPER(およびおそらくCLOCK)のリン酸化を介して概日周期決定に必須であることを示している16–18).たとえば,ライブセルイメージングによるタンパク質のリアルタイム追跡や,高時空間分解能リン酸化プロテオミクスなどのアプローチは,こうしたダイナミクスの解明にきわめて有用であろう.これにより,CK1が「いつ」「どこで」基質を認識し,その相互作用が一日を通じて「どのように」制御されているのかが浮かび上がり,概日時計の自律振動を支える翻訳後制御の全体像がより明瞭になるだろう.

6. 真に24時間をカウントする実体とは

ここまで,時計遺伝子の発見の歴史から,転写フィードバックループ仮説を中心に哺乳類における概日時計の分子メカニズムについて最新の知見を紹介してきた.確かにPer遺伝子の転写制御にはフィードバック制御が働いており,このループが約24時間周期で振動している.さらに,このフィードバックループに関わる時計遺伝子を欠損すると時計出力リズムが停止する.しかし,真に24時間をカウントするメカニズムについては,ノーベル賞が授与された現在も完全な理解には至っていない.その最たる例が概日時計の温度補償性(temperature compensation)である.ほとんどすべての化学反応は温度の影響を強く受ける.アレニウスの式に基づく温度係数Q10(温度を10°C上げたときの反応速度の倍率)を計算すると,多くの化学反応ではQ10が2~3となる.つまり,25°Cと比べて35°Cでは反応速度が2~3倍になるということである.37°Cで1時間の反応は,4°Cでは一晩かけてようやく進むことになる.もし概日時計の回転速度が,転写・翻訳・分解など各ステップのQ10の影響をそのまま受け,全体として温度の影響を大きく受けてしまうなら,夏には一日が12時間で回り,冬には48時間かかるような時計になってしまい,使いものにならないことは容易に想像できる.実際,概日リズムのQ10は0.8~1.2の範囲に収まることが多く,このきわめて重要な性質は温度補償性と呼ばれる.確かに,フィードバック構造を持つ系は特定の条件で自律振動することが知られているが,Per遺伝子の転写フィードバックループはどのようにして温度補償的に24時間周期で振動するのだろうか.最も本質的な問いは,なお未解決である.

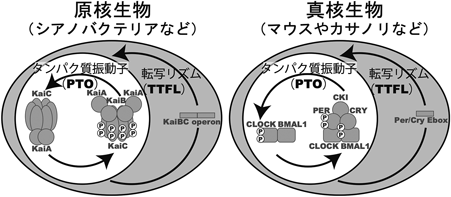
概日リズムはマウスやショウジョウバエなど特定の生物種において観察されるわけではなく,地球上の多様な生物で報告されている.たとえば,イネやシロイヌナズナのような高等植物や,アカパンカビのような菌類,原核生物であるシアノバクテリアでも概日リズムが観察される.中でもシアノバクテリアの概日時計の分子メカニズムについては理解がよく進んでおり,秋山の章で詳しく説明されているように,シアノバクテリアの時計タンパク質KaiCを試験管内でKaiA, KaiB, ATPとともに混合するだけで,約24時間周期の「リン酸化リズム」が観察される19).つまり,転写フィードバック制御を必要とせず,タンパク質そのものが「時」を生み出しているのである.さらに,この試験管で再構成された最小単位の時計においても温度補償性がみられる.興味深いことに,真核生物のさまざまな生物種において概日リズムが観察され,転写フィードバック制御を担う時計遺伝子が同定されてきたが,脊椎動物(CLOCK/BMAL1),高等植物(TOC1/CCA1),菌類(FRQ/WC),緑藻(ROC)などでは,それぞれ異なる遺伝子が時計遺伝子として機能している.このように時計遺伝子の配列は保存されていなくても,転写フィードバック制御というコンセプトがリズム出力(時計の針)に必須であるように,KaiCタンパク質が保存されていなくても,分子間相互作用・翻訳後修飾・酵素活性・立体構造変化などのタンパク質ダイナミクスが真核生物においても時計振動子(時計のクオーツ)として機能し,「時」を生み出しているのではないだろうか(図4).また,いわゆる時計遺伝子は生物種間で保存されていないが,転写抑制に関わる分子は比較的構造をとらないひも状のタンパク質であり,高度なリン酸化制御を受ける.そして,そのリン酸化にはCK1が関与することが多くの生物種で報告されている.重要なことに,CK1がPERやFRQをリン酸化する反応は温度補償性を示し16, 20, 21),その阻害は概日リズム周期を大きく変化させる16, 17).

Journal of Japanese Biochemical Society 98(2): 238-244 (2026)

図4 タンパク質振動子と転写フィードバックループ

シアノバクテリアなどの原核生物はKaiCを中心としたタンパク質振動子(PTO)が温度補償的に24時間をカウントするが,細胞内では転写フィードバックループ(TTFL)と共役している.真核生物においても,除核カサノリでも概日リズムが観察されることから,同じような仕組みで24時間をカウントしているのではないだろうか.

松尾の章でも取り上げられているように,巨大な単細胞緑藻であるカサノリは単核の真核生物であるが,はさみで切断するだけで容易に除核でき,核がない柄の部分だけでも数か月にわたって生存が可能である.驚くべきことに,時計遺伝子が発見されるよりも前の1961年に,除核カサノリにおける光合成リズムが報告されている22).つまり,原核生物のシアノバクテリアだけが例外なのではなく,真核生物においても転写フィードバックループが回りえない条件で,概日リズムは継続するのである.では,真に24時間をカウントしている実体は何だろうか.「時間タンパク質学」領域では,直接的に「時」を生み出すタンパク質を同定するとともに,「時」を計るメカニズムを理解することを目標として研究を展開しており,本特集を通じてこの問いに興味を持った研究者の参入を期待する.

引用文献References

1) Silver, R., LeSauter, J., Tresco, P.A., & Lehman, M.N. (1996) A diffusible coupling signal from the transplanted suprachiasmatic nucleus controlling circadian locomotor rhythms. Nature, 382, 810–813.

2) Balsalobre, A., Damiola, F., & Schibler, U. (1998) A serum shock induces circadian gene expression in mammalian tissue culture cells. Cell, 93, 929–937.

3) Yoo, S.H., Yamazaki, S., Lowrey, P.L., Shimomura, K., Ko, C.H., Buhr, E.D., Siepka, S.M., Hong, H.K., Oh, W.J., Yoo, O.J., et al. (2004) PERIOD2:LUCIFERASE real-time reporting of circadian dynamics reveals persistent circadian oscillations in mouse peripheral tissues. Proc. Natl. Acad. Sci. USA, 101, 5339–5346.

4) Konopka, R.J. & Benzer, S. (1971) Clock mutants of Drosophila melanogaster. Proc. Natl. Acad. Sci. USA, 68, 2112–2116.

5) Vitaterna, M.H., King, D.P., Chang, A.M., Kornhauser, J.M., Lowrey, P.L., McDonald, J.D., Dove, W.F., Pinto, L.H., Turek, F.W., & Takahashi, J.S. (1994) Mutagenesis and mapping of a mouse gene, Clock, essential for circadian behavior. Science, 264, 719–725.

6) Dunlap, J.C. (1999) Molecular bases for circadian clocks. Cell, 96, 271–290.

7) Koike, N., Yoo, S.-H., Huang, H.-C., Kumar, V., Lee, C., Kim, T.-K., & Takahashi, J.S. (2012) Transcriptional architecture and chromatin landscape of the core circadian clock in mammals. Science, 338, 349–354.

8) Yoshitane, H., Ozaki, H., Terajima, H., Du, N.-H., Suzuki, Y., Fujimori, T., Kosaka, N., Shimba, S., Sugano, S., Takagi, T., et al. (2014) CLOCK-controlled polyphonic regulation of circadian rhythms through canonical and noncanonical E-boxes. Mol. Cell. Biol., 34, 1776–1787.

9) Ripperger, J.A. & Schibler, U. (2006) Rhythmic CLOCK–BMAL1 binding to multiple E-box motifs drives circadian Dbp transcription and chromatin transitions. Nat. Genet., 38, 369–374.

10) Chiou, Y.-Y., Yang, Y., Rashid, N., Ye, R., Selby, C.P., & Sancar, A. (2016) Mammalian Period represses and de-represses transcription by displacing CLOCK-BMAL1 from promoters in a Cryptochrome-dependent manner. Proc. Natl. Acad. Sci. USA, 113, E6072–E6079.

11) Cao, X., Wang, L., Selby, C.P., Lindsey-Boltz, L.A., & Sancar, A. (2023) Analysis of mammalian circadian clock protein complexes over a circadian cycle. J. Biol. Chem., 299, 102929.

12) Lee, C., Etchegaray, J.P., Cagampang, F.R., Loudon, A.S.I., & Reppert, S.M. (2001) Posttranslational mechanisms regulate the mammalian circadian clock. Cell, 410, 86–90.

13) Aryal, R.P., Kwak, P.B., Tamayo, A.G., Gebert, M., Chiu, P.-L., Walz, T., & Weitz, C.J. (2017) Macromolecular assemblies of the mammalian circadian clock. Mol. Cell, 67, 770–782.e6.

14) Otobe, Y., Jeong, E.M., Ito, S., Shinohara, Y., Kurabayashi, N., Aiba, A., Fukada, Y., Kim, J.K., & Yoshitane, H. (2024) Phosphorylation of DNA-binding domains of CLOCK-BMAL1 complex for PER-dependent inhibition in circadian clock of mammalian cells. Proc. Natl. Acad. Sci. USA, 121, e2316858121.

15) Yoshitane, H., Takao, T., Satomi, Y., Du, N.-H., Okano, T., & Fukada, Y. (2009) Roles of CLOCK phosphorylation in suppression of E-box-dependent transcription. Mol. Cell. Biol., 29, 3675–3686.

16) Isojima, Y., Nakajima, M., Ukai, H., Fujishima, H., Yamada, R.G., Masumoto, K.-H., Kiuchi, R., Ishida, M., Ukai-Tadenuma, M., Minami, Y., et al. (2009) CKIε/δ-dependent phosphorylation is a temperature-insensitive, period-determining process in the mammalian circadian clock. Proc. Natl. Acad. Sci. USA, 106, 15744–15749.

17) Meng, Q.-J., Maywood, E.S., Bechtold, D.A., Lu, W.-Q., Li, J., Gibbs, J.E., Dupré, S.M., Chesham, J.E., Rajamohan, F., Knafels, J., et al. (2010) Entrainment of disrupted circadian behavior through inhibition of casein kinase 1 (CK1) enzymes. Proc. Natl. Acad. Sci. USA, 107, 15240–15245.

18) Narasimamurthy, R. & Virshup, D.M. (2021) The phosphorylation switch that regulates ticking of the circadian clock. Mol. Cell, 81, 1133–1146.

19) Nakajima, M., Imai, K., Ito, H., Nishiwaki, T., Murayama, Y., Iwasaki, H., Oyama, T., & Kondo, T. (2005) Reconstitution of circadian oscillation of cyanobacterial KaiC phosphorylation in vitro. Science, 308, 414–415.

20) Shinohara, Y., Koyama, Y.M., Ukai-Tadenuma, M., Hirose, M., Tsuboi, T., Ueda, H.R., & Nishiwaki-Ohkawa, T. (2017) Temperature-sensitive substrate and product binding underlie temperature-compensated phosphorylation in the clock. Mol. Cell, 67, 783–798.e20.

21) Marzoll, D., Schmalen, I., Hennies, J., Diernfellner, A.C.R., Herzog, M., Merrow, M., Schwerdtfeger, C., Wever, W., Schafmeier, T., & Brunner, M. (2022) Casein kinase 1 and disordered clock proteins form functionally equivalent, phospho-based timing modules. Proc. Natl. Acad. Sci. USA, 119, e2118286119.

22) Sweeney, B.M. & Haxo, F.T. (1961) Persistence of a photosynthetic rhythm in enucleated Acetabularia. Science, 134, 1361–1363.

著者紹介Author Profile

吉種 光(よしたね ひかり)

東京都医学総合研究所 プロジェクトリーダー.東京大学大学院理学系研究科 准教授.博士(理学).

略歴

1979年神奈川県生まれ.2003年東京大学理学部卒業.09年東京大学,博士(理学)取得.09年東京大学大学院理学系研究科助教.21年~東京都医学総合研究所プロジェクトリーダー.22年~東京大学大学院理学系研究科准教授兼任.

研究テーマと抱負

生物がどのようにして24時間をカウントしているのか,という問いに答えを出すべく,毎日楽しく研究しています.

ウェブサイト

研究室HP:https://www.igakuken.or.jp/circadian/index.html

領域HP:https://chronoproteinology.org

学会HP:https://chronobiology.jp

趣味

熱いサイエンス談義をつまみに美味しい食事とお酒で乾杯.

This page was created on 2026-03-11T17:51:15.508+09:00
This page was last modified on 2026-04-17T16:21:42.000+09:00


このサイトは(株)国際文献社によって運用されています。