Online ISSN: 2189-0544 Print ISSN: 0037-1017
公益社団法人日本生化学会 The Japanese Biochemical Society
Journal of Japanese Biochemical Society 98(2): 245-251 (2026)
doi:10.14952/SEIKAGAKU.2026.980245

特集Special Review

哺乳類概日時計中枢の時間調節に関わる分子Molecular mechanisms underlying circadian regulation in the central circadian clock

名古屋大学・環境医学研究所Research Institute of Environmental Medicine, Nagoya University ◇ 〒464–8601 愛知県名古屋市千種区不老町 ◇ Furo-cho, Chikusa-ku, Nagoya, Aichi 464–8601, Japan

発行日:2026年4月25日Published: April 25, 2026
HTMLPDFEPUB3

哺乳類の概日時計は転写翻訳フィードバックループ(TTFL)により調節されると考えられ,その過程には細胞内cAMPやCa2+といったセカンドメッセンジャーが重要な役割を果たす.概日時計の中枢である視交叉上核では,cAMPの概日リズムがTTFLに入力し,細胞間の同期を維持して概日行動リズムの調節に寄与することが示されている.近年の光イメージング技術により,このcAMPリズムはTTFLではなく神経ネットワークに依存して形成されることが明らかとなった.また,視交叉上核に発現する神経ペプチドVIPはcAMPを上昇させ周期延長を引き起こす一方,外側視床下部のオレキシンやMCHなどの神経ペプチド陽性ニューロンは視交叉上核へ投射し,cAMPを低下させ周期短縮をもたらす.こうした多様な入力がcAMPを介して概日リズムを調節することが明らかになっている.

1. 序論

哺乳類の概日時計は,時計遺伝子群の転写翻訳のフィードバックループ(transcription–translation feedback loop:TTFL)により説明されている.時計遺伝子の転写産物であるCLOCKとBMAL1がヘテロ二量体を形成しPer, Cryの転写を促進し,これら遺伝子のタンパク質PER/CRY複合体が核内へ移行する.そして,これら複合体がCLOCK:BMAL1による転写活性を抑制することで24時間周期の振動が生じると考えられている1).この概日時計機構は,我々の身体を構成する個々の細胞に備わっていることが,これまでの多くの研究によって明らかにされてきた.そして,概日時計は,哺乳類個体における睡眠覚醒,体温・ホルモン分泌・代謝など,さまざまな行動・生理機能の時間的調節を担う2).このようにTTFLからの出力系がある一方で,入力系も必要となる.たとえば,環境の光入力に対する可逆的な位相・周期・振幅の調整や,さまざまな生理状態(覚醒・代謝・ストレス)の変化に応じた概日時計の可塑性などは,TTFLに何らかの入力を想定しなければ説明することができない.

そこで重要となるのが,セカンドメッセンジャーである.なかでもcAMPとCa2+は,神経活動・遺伝子発現・電気興奮性・シナプス可塑性といった幅広い細胞機能をつかさどる普遍的なシグナルであり,概日時計の中枢である視交叉上核において概日リズムを示すことが報告されている3, 4).これらの分子は,(1)TTFLの上流および下流で転写調節に関与し,(2)ミリ秒~分の速い時間スケールのみならず,24時間の遅い時間スケールで膜電位や発火パターンを変え,(3)視交叉上核内部のネットワークの同期とそこからの出力を調整する.すなわち,TTFLとセカンドメッセンジャーは対立概念ではなく,階層の異なる分子群が統合した複合システムとして考えることができる.

2. 概日時計の中枢:視交叉上核

概日時計はすべての細胞に備わる普遍的システムであるが,その中でも概日時計の中枢が視床下部に位置する視交叉上核に存在する5, 6).解剖学的に,視交叉上核は第三脳室前方,視交叉の背側に位置する神経核で,片側およそ1万の神経細胞からなる.視交叉上核は,腹外側と背内側に大別され,腹外側領域はvasoactive intestinal peptide(VIP)発現細胞が存在し,網膜視交叉路からの光入力を主に受ける.一方,背内側領域はarginine vasopressin(AVP)発現細胞が存在し,概日リズムの出力に関与すると考えられている7).VIPは視交叉上核内の神経細胞間のリズム同調に重要な分子であり,VIP欠損マウスあるいはVIP受容体VPAC2欠損マウスでは,視交叉上核の個々の細胞のリズムは脱同調する7, 8).電気生理学的には,視交叉上核神経は昼間に高く,夜間に低い自発発火を示し,光入力により概日リズムの位相・周期・振幅が可塑的に変化する9).こうした入力–TTFL–出力の過程において,cAMPやCa2+などが密接に関与すると考えられている.

3. cAMPシグナルのリズムとその制御

cAMPが哺乳類の概日時計中枢である視交叉上核の機能に果たす役割は,30年にわたる研究の積み重ねによって徐々に明らかにされてきた.当初は概日時計の本体と考えられているTTFLが中心的に議論されていたが,そこにセカンドメッセンジャーがどのように組み込まれるかについては長らく不明瞭であった.1990年代,ラット視床下部の視交叉上核を含む脳切片やin vivo実験によって,cAMP濃度が変動することが報告され10, 11),cAMPが単なる神経活動の副次的な産物ではなく,内因的なリズム生成に関与している可能性が示された.しかしそのリズムは一日に2回ピークを示すものであった.その後,時計遺伝子Per1のプロモーター領域にcAMP response element(CRE)が存在することが明らかになり,リン酸化CRE-binding protein(CREB)がCREに結合することでcAMPシグナルがTTFLに入力するメカニズムが示された12).この成果は,外的刺激や神経ペプチド等による細胞内cAMP上昇が,CREBのリン酸化を介してPer1発現を誘導し,結果的にTTFLそのものに入力することができることを示す.

この仮説は,実際にCRE依存的転写活性が視交叉上核で概日リズムを示すことによってさらに補強された.CRE配列下流にルシフェラーゼ遺伝子をつなげた,CRE-ルシフェラーゼ(luc)レポーターを導入した視交叉上核切片を用いたリアルタイム発光計測により,CRE依存性の転写活性が明瞭な概日リズムを示すことが可視化され,主観的昼間に高く夜間に低いというパターンを示した13).これは,CREBのリン酸化が昼間に優位であることと整合し,cAMP/CREB経路が実際に時間情報をコードしていることを実証した.また,cAMPが視交叉上核の神経細胞の細胞間同調にも重要であることが明らかにされた3).細胞内cAMPを薬理的に低下させると,個々の神経細胞の概日リズムが脱同調することが示され,cAMPが視交叉上核ネットワーク全体を統合した時計として機能させるための重要なシグナルであることが明らかにされた.

さらに,遺伝学的アプローチにより,cAMPリズムを形づくる上流因子が明らかにされていった.Doiら,Rgs16の遺伝子発現が主観的昼間に増加し,Giタンパク質を負に制御することを発見し,主観的昼間にcAMPの上昇を許容することを明らかにした14).Rgs16欠損マウスではcAMPリズムが消失し,行動リズムの周期が延長したことから,Rgs16は「昼にcAMPを解放するゲート」として機能する.また彼らは,視交叉上核に特異的に発現するオーファン受容体GPR176がGzと結合してアゴニスト非依存的にcAMPを持続的に抑制することを示した15).Grp176欠損マウスでは行動周期が短縮することから,GPR176はcAMPの基準レベルを低く保つ「ブレーキ」として周期決定に寄与していると考えられる.これらの研究は,cAMPリズムが単にTTFLに従属して変動するのではなく,分子レベルのゲートと抑制因子のバランスによって能動的に形成されることを明らかにした.

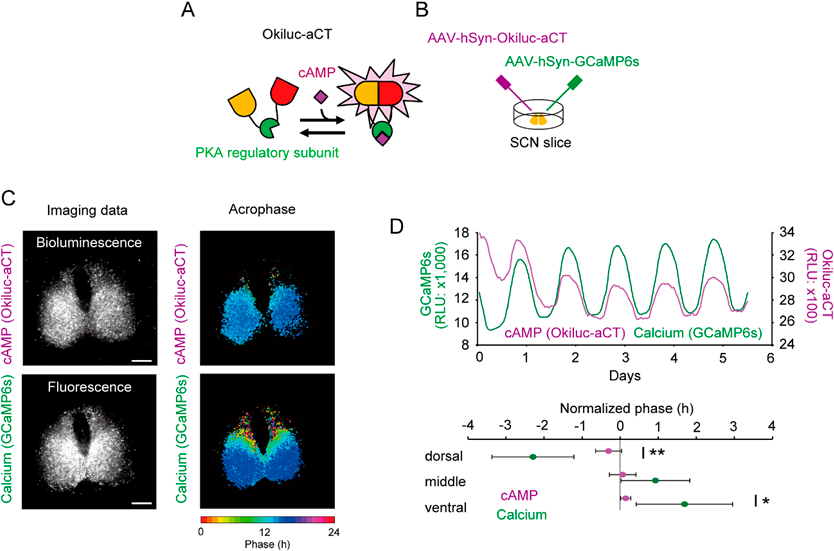
このような背景を踏まえ,大きな転換点となったのがOnoらによる研究である4).我々は,沖縄産ホタル発光タンパク質のN末端とC末端の間に,cAMP結合ドメインを挿入し,生物発光型cAMPセンサーOkiluc-aCTを開発した(図1A).このプローブを利用し,視交叉上核の脳切片におけるcAMPダイナミクスを世界で初めて高時空間分解能で可視化した(図1B, C).その結果,cAMPリズムは個々の細胞のTTFLに従属して生じるものではなく,むしろ神経ネットワークによって制御されることが明らかになった(図1D,後述).テトロドトキシン(TTX)で活動電位を遮断すると,視交叉上核におけるcAMPリズムは消失し,またVIP経路を介した入力がcAMPリズムの主要な駆動因子であることが示された.そして,光遺伝学的操作により視交叉上核の細胞内のcAMPを人為的に増加させると,視交叉上核切片の概日リズムの位相がシフトし,行動レベルでも概日周期が変化することが示された.これは,cAMPがTTFLに対して上流で因果的に働きうることを直接証明するものである.さらにこの研究は,視交叉上核からのVIP放出リズムがcAMPリズムを駆動するという「ネットワーク時計」を提示し,VIP-cAMP経路が視交叉上核全体の概日リズムを束ねる統率信号として位置づけ直した(図2).

Journal of Japanese Biochemical Society 98(2): 245-251 (2026)

図1 視交叉上核のcAMPとCa2+の光イメージング

(A)沖縄産発光タンパク質を用いたcAMPプローブ(Okiluc-aCT)の概略図.PKA:protein kinase A.(B)視交叉上核(suprachiasmatic nucleus:SCN)切片にアデノ随伴ウイルスを用いて,Okiluc-aCTと蛍光カルシウムプローブ(GCaMP6s)を発現させた模式図.(C)視交叉上核切片の発光画像と蛍光画像,および周波数解析を行い,アクロフェーズ(リズムの頂値位相)をヒートマップで表示した画像.(D)視交叉上核のcAMPとCa2+リズムのピーク位相の比較.RLU:relative light unit. Ono et al., (2023) Science Advancesより一部改変.

Journal of Japanese Biochemical Society 98(2): 245-251 (2026)

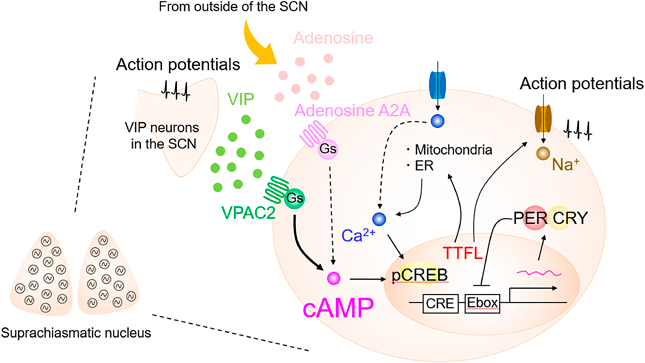
図2 cAMPを中心とした視交叉上核内ダイナミクス

活動電位依存的に分泌されるVIPによって,視交叉上核内のcAMP概日リズムが調節される.また細胞外からのアデノシンによってもcAMPレベルは調節され,最終的に時計遺伝子を介した転写・翻訳のネガティブフィードバックループへと入力する.TTFL:transcription–translation negative feedback loop. Ono et al., (2023) Science Advancesより一部改変.

CREBのリン酸化は日中に高く,CRE-lucのリズムも同様に昼にピークを示す.この位相特性は,Rgs16やGrp176の時刻依存的な発現パターンとも整合的であり,cAMPが主観的昼間にピークを示す概日リズムとも一致する.総じて,cAMPはCREを介して直接TTFLに入力し,視交叉上核内の神経ネットワークを通じて細胞間同期を支え,さらに行動周期を可塑的に調節する中心的な役割を果たしている.1990年代の初期報告からOnoらの研究に至る流れは,セカンドメッセンジャーをTTFLの下流に置く従来の図式を覆し,TTFLとcAMPシグナルが双方向的に結合するという新しい理解へと結実している.これにより,cAMPは「概日時計の副次的な出力」ではなく「概日リズムの周期と同期を統率するネットワークシグナル」として再定義され,視交叉上核におけるリズム形成の統合的な枠組みを提供するに至った(図2).

4. 外因性入力によるcAMP制御

視交叉上核におけるcAMPのリズムは,細胞内の自律的な仕組みに依存するだけでなく,外因性の入力によって強く制御される.特に,視交叉上核は多様な神経ペプチドや神経伝達物質からの入力を受け,周期や位相を柔軟に調整している.近年の研究は,これらの入力が細胞内cAMP濃度を変化させることを通じて概日時計に影響を及ぼすことを明確に示している.

代表的な例がアデノシンである.アデノシンは代謝や覚醒度に応じて脳内濃度が変化するシグナル分子であり,視交叉上核ニューロンに存在するアデノシン受容体を介して概日リズムに影響を与えることが知られている.アデノシン受容体の活性化はGi/Go型Gタンパク質を介し,アデニル酸シクラーゼ活性を抑制することで細胞内cAMP濃度を低下させる.Jagannathらは,アデノシンシグナルが視交叉上核における時計遺伝子発現とリズム強度を変化させることを示し,視交叉上核が代謝状態を読み取る一つの仕組みとしてcAMP抑制性のアデノシンシグナルを利用している可能性を提案した16).また,この経路の薬理的操作は周期変化をもたらすことから,アデノシンを介したcAMP制御が概日リズムの調整因子であることが示唆される.

この知見は,カフェインが概日時計に与える影響と整合する.カフェインはアデノシン受容体拮抗薬として作用し,アデノシンによるcAMP抑制を阻害する.その結果,細胞内cAMP濃度は相対的に上昇し,周期が延長することが報告されている17).すなわち,アデノシンはcAMPを低下させてリズムを短縮する方向に,カフェインはその抑制を解放してcAMPを上昇させ周期を延長する方向に作用する.代謝・覚醒度と視交叉上核の周期調節をつなぐ分子スイッチとして,アデノシン–cAMP経路はきわめて合理的な役割を果たしている.

視交叉上核の神経細胞の中でVIPはcAMPに大きな影響を与えることがわかっている.このVIPはVPAC2受容体を介してGs経路を活性化し,cAMPを上昇させる代表的な外因性因子である.Anらは異なる概日リズムの位相でVIPを視交叉上核に投与し,その反応性を検証した.特に主観的夜間のVIP投与で大きな位相後退が生じることを報告した18).さらにPattonらはVIPニューロンを光遺伝学的に刺激することで,同様の位相反応曲線が再現されることを示した19).これらは,VIP入力がcAMPを上昇させることを通じて位相を調節していることを示唆する重要な証拠である.実際,OnoらはcAMPを光遺伝学的に人為的に上昇させた際にも,同様に位相後退が誘発されることを示し,cAMP濃度上昇が位相制御に関わることを直接証明した4).これらの研究は,細胞内cAMPが視交叉上核に入力する神経活動の共通コードとして働き,上昇すれば位相後退と周期延長をもたらすという基本的な原理を提示したといえる.

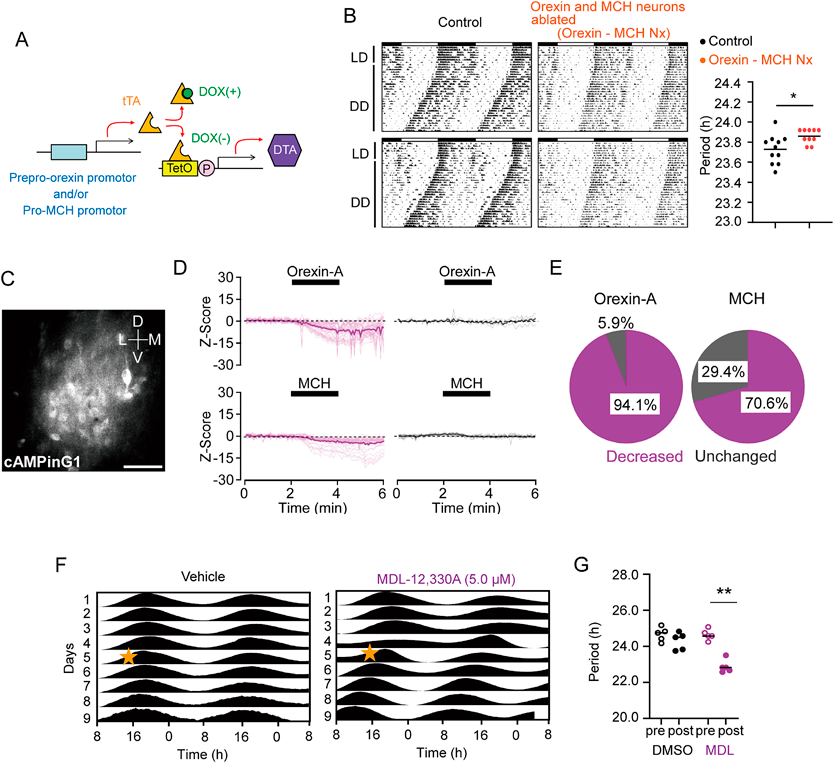
こうした背景の上に,Hungらは外側視床下部のオレキシンおよびメラニン凝集ホルモン(melanin-concentrating hormone:MCH)ニューロンが視交叉上核に投射すること,そしてこれらの神経ペプチドが視交叉上核ニューロンのcAMP濃度を低下させ,結果として周期を短縮させることを報告した20).この我々の研究では,遺伝学的手法によってオレキシンおよびMCH神経を脱落させると,恒常暗条件下で行動周期が延長することを見いだした(図3A, B).一方で,視交叉上核切片にオレキシンやMCHを適用するとcAMP濃度が低下し,さらに周期が短縮することを示した.薬理学的にcAMPを低下させても同様の効果が得られたことから,オレキシンとMCHの視交叉上核への神経入力が細胞内のcAMPレベルを低下させ,その結果概日リズムの周期を制御していることが実証された(図3C~G).この成果は,VIPがcAMPを上昇させて周期を延長するのに対し,オレキシン・MCHはcAMPを低下させて周期を短縮するという,外因性入力の多様性を示している(図4).

Journal of Japanese Biochemical Society 98(2): 245-251 (2026)

図3 視交叉上核の概日リズムを調節するペプチドとcAMP

(A)テトラサイクリン系を利用した,脳内オレキシンおよびMCH神経脱落マウス作製の概要図.(B)オレキシンとMCH神経を脱落したマウスと,脱落していないコントロールマウスの自発活動リズムと,概日リズム周期.横軸は一日の時間を示し,白いバーと黒いバーはそれぞれ明期,暗期を示す.縦軸は日数を示す.LD, DDはそれぞれ明暗環境,恒常暗環境を示す.(C)蛍光cAMPプローブ(cAMPinG1)を発現させた視交叉上核切片の画像.(D)cAMPinG1を発現させた視交叉上核切片に,オレキシンまたはMCHを投与した際にみられるcAMP濃度変化.マゼンタおよび灰色のラインはオレキシンAまたはMCH投与により,cAMPの低下がみられた細胞,と変化のなかった細胞を示す.(E)オレキシンAまたはMCH投与によりcAMPが低下または変化が見られなかった細胞の割合を示す.(F)視交叉上核切片から得られるPER2::LUC発光輝度変化.細胞内cAMP合成を抑制する薬剤を投与すると(図中の星印),PER2::LUCリズムの周期が短くなる.(G)視交叉上核の切片にDMSOまたはcAMPの合成を阻害する薬剤(MDL)を投与した際の概日リズム周期の変化を示す.Hung et al., (2025) Journal of Neuroscienceより一部改変.

Journal of Japanese Biochemical Society 98(2): 245-251 (2026)

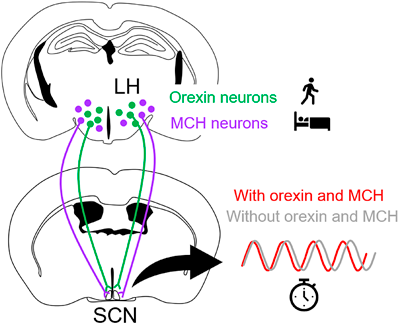
図4 cAMPを介した視交叉上核への入力が概日リズム周期を短縮する

外側視床下部(LH:lateral hypothalamus)に位置するオレキシンとMCH神経は,視交叉上核(SCN:suprachiasmatic nucleus)に投射する.分泌されたオレキシンとMCHは視交叉上核内のcAMPレベルを減少させ,最終的に視交叉上核の概日リズム周期を短縮する.Hung et al., (2025) Journal of Neuroscienceより一部改変.

総合すると,視交叉上核に入力する外因性シグナルはcAMPを媒介として周期や位相を調節していることがわかる.アデノシンはcAMPを抑制し,カフェインはその抑制を解放してcAMPを上昇させる.VIPはcAMPを上昇させ,位相後退と周期延長をもたらす.オレキシンやMCHはcAMPを低下させ,周期短縮を引き起こす.視交叉上核は多様な神経入力をcAMPという共通のセカンドメッセンジャーに翻訳することで,環境シグナルや内的状態を柔軟に概日時計へと取り込んでいる.

5. Ca2+シグナルと視交叉上核神経ネットワーク

視交叉上核における細胞内Ca2+シグナルは,概日時計の固有振動とネットワーク同期をつなぐ重要な機構として,この20年で段階的にその理解が深まってきた.端緒となったのは,ジーンガンを用いFRET型の蛍光カルシウムプローブ(Cameleon)を視交叉上核切片に導入し,細胞質のCa2+が明瞭な概日リズムを示すことを初めて報告した研究である21).この研究では,TTXで神経発火を遮断しても細胞内Ca2+リズムは持続し,逆にリアノジンでCa2+貯蔵の放出を抑えるとCa2+と神経発火リズムがともに減衰することを示した.すなわち,視交叉上核の細胞内Ca2+リズムは,内因性(TTFLに関連した)機構に支えられ,活動電位とは独立に自律的にリズムを示すことが明らかになった.

その後,アデノ随伴ウイルスを用い1波長励起1波長蛍光型の蛍光カルシウムプローブ(GCaMP)を発現させる手法が普及し,視交叉上核の単一細胞から全体にわたるCa2+ダイナミクスの理解が進んだ.たとえば,アデノ随伴ウイルスを用いて視交叉上核切片の神経細胞にGCaMP3を導入した実験では,細胞内Ca2+の概日リズムが視交叉上核内で位相差を持つこと,またVIP欠損やVIP経路の遮断が細胞内Ca2+およびCRE依存転写リズムの減弱を招くことが示された13).アデノ随伴ウイルスを用いた細胞内Ca2+計測の技術革新により,視交叉上核内のCa2+が単に各細胞の「出力指標」ではなく,視交叉上核神経回路全体の時刻コードに深く関与することが実証された.

機能的にみても,視交叉上核の細胞内Ca2+は概日リズムの維持と同期に必須であることが示されている.薬理学的に視交叉上核の細胞外Ca2+を除去したり,電位依存性Ca2+チャネルを阻害したり,過分極でCa2+流入を抑制したりすると,時計遺伝子発現リズムが消失する22).この結果は,膜電位変動に伴う周期的なCa2+流入が概日時計機能に不可欠であることを示唆する.すなわち,視交叉上核の自律振動と膜興奮性は,Ca2+を介して双方向に結合している可能性がある.

一方で,視交叉上核の細胞内Ca2+とcAMPの差異や入力選択性もみえてきた.Onoらは,生物発光cAMPプローブ(Okiluc-aCT)を開発し,GCaMPを併用して,視交叉上核の細胞内cAMPとCa2+の時空間リズムを同時に可視化した4).その結果,細胞内Ca2+リズムは領域ごとによる位相がみられたのに対し,細胞内cAMPリズムは領域ごとの位相差はみられなかった(図1D).この結果は,細胞内Ca2+とcAMPリズムは異なる機能を持つことを示す.さらに,視交叉上核からのVIP放出の概日リズムがcAMPリズムを駆動すること,TTXによる活動電位遮断でcAMPリズムが強く減衰することを示した.この結果は,細胞内cAMPの概日リズムは,細胞内の内因性の時計機構ではなく,神経ネットワークにより調節されていることを示す.興味深いのは,VIPを過剰投与するとcAMPレベルは上昇するが,Ca2+レベル自体は変化しないという点である.これは,VIP–Gs–cAMP軸が主としてcAMPの同期・頑健性をつかさどる一方,Ca2+リズムは内因機構(TTFLや小胞体,ミトコンドリアなど)により強く規定されていることを示す.実際,Onoらも視交叉上核の細胞内Ca2+の概日リズムは,TTXを投与した後でも比較的保たれることを報告し,細胞内Ca2+はTTFL結合の自律振動としての側面がきわだつ一方,cAMPはネットワーク(VIP)に強く依存するという役割分担を明確化した4).

以上をまとめると,視交叉上核の細胞内Ca2+は(1)TTFLに調節された自律リズムとしての側面を持ち(TTX耐性,リアノジン受容体感受性),(2)GCaMPを用いた光イメージングにより背側から腹側に向けたウェーブ状パターンを示し,(3)Ca2+流入が分子リズムの持続に必要であることから,視交叉上核概日リズムの同期と維持の両輪を担っている.一方,VIP入力はcAMPを強力に駆動するがCa2+レベルを直接は押し上げないため,cAMP=外因性(VIP)に敏感な同期信号,Ca2+=内因性(TTFL結合)という二相構造の存在が示唆される.結果として,視交叉上核は細胞内Ca2+の自律振動で各細胞の基礎リズムを保ちつつ,cAMPを介した入力統合でネットワーク全体の位相整列と頑健性を担保していると整理できる.将来的には,細胞内小器官間のCa2+移動(小胞体・ミトコンドリア)や,電位依存性Ca2+チャネルの時刻依存的制御,グリア細胞由来シグナルなどを織り込んだCa2+-cAMPの階層結合モデルが明らかになると考えられる.

6. 結論と展望

本稿で整理したとおり,視交叉上核内の時間秩序はTTFLだけでなく,cAMPとCa2+という二大セカンドメッセンジャーの相互連関に大きく依存する.今後の課題としては,(1)空間コンパートメント化されたcAMP/Ca2+(軸索終末,核,ミトコンドリア,小胞体)を時空間分解能高く追跡し,TTFLのどの位相でどの局所シグナルが概日リズムに重要であるかを明らかにすること,(2)これらセカンドメッセンジャーを調節しうる視交叉上核への入力様式および細胞内TTFLへの入力様式を同定すること,(3)神経細胞–グリア細胞間の時間ダイナミクスの統合,(4)個体差・加齢・病態でのcAMP/Ca2+変容の因果解析,があげられる.近年,主要な時計遺伝子を欠損してもなお概日リズムが存在することが報告されている.従来の時計遺伝子とは異なる概日時計機能とこれらセカンドメッセンジャーとの関連性も今後明らかにされるであろう.

引用文献References

1) Reppert, S.M. & Weaver, D.R. (2002) Coordination of circadian timing in mammals. Nature, 418, 935–941.

2) Ono, D., Weaver, D.R., Hastings, M.H., Honma, K.I., Honma, S., & Silver, R. (2024) The suprachiasmatic nucleus at 50: Looking back, then looking forward. J. Biol. Rhythms, 39, 135–165.

3) O’Neill, J.S., Maywood, E.S., Chesham, J.E., Takahashi, J.S., & Hastings, M.H. (2008) cAMP-dependent signaling as a core component of the mammalian circadian pacemaker. Science, 320, 949–953.

4) Ono, D., Wang, H., Hung, C.J., Wang, H.T., Kon, N., Yamanaka, A., Li, Y., & Sugiyama, T. (2023) Network-driven intracellular cAMP coordinates circadian rhythm in the suprachiasmatic nucleus. Sci. Adv., 9, eabq7032.

5) Moore, R.Y. & Eichler, V.B. (1972) Loss of a circadian adrenal corticosterone rhythm following suprachiasmatic lesions in the rat. Brain Res., 42, 201–206.

6) Stephan, F.K. & Zucker, I. (1972) Circadian rhythms in drinking behavior and locomotor activity of rats are eliminated by hypothalamic lesions. Proc. Natl. Acad. Sci. USA, 69, 1583–1586.

7) Antle, M.C. & Silver, R. (2005) Orchestrating time: Arrangements of the brain circadian clock. Trends Neurosci., 28, 145–151.

8) Maywood, E.S., Reddy, A.B., Wong, G.K., O’Neill, J.S., O’Brien, J.A., McMahon, D.G., Harmar, A.J., Okamura, H., & Hastings, M.H. (2006) Synchronization and maintenance of timekeeping in suprachiasmatic circadian clock cells by neuropeptidergic signaling. Curr. Biol., 16, 599–605.

9) Inouye, S.T. & Kawamura, H. (1979) Persistence of circadian rhythmicity in a mammalian hypothalamic “island” containing the suprachiasmatic nucleus. Proc. Natl. Acad. Sci. USA, 76, 5962–5966.

10) Prosser, R.A. & Gillette, M.U. (1991) Cyclic changes in cAMP concentration and phosphodiesterase activity in a mammalian circadian clock studied in vitro. Brain Res., 568, 185–192.

11) Yamazaki, S., Maruyama, M., Cagampang, F.R., & Inouye, S.T. (1994) Circadian fluctuations of cAMP content in the suprachiasmatic nucleus and the anterior hypothalamus of the rat. Brain Res., 651, 329–331.

12) Travnickova-Bendova, Z., Cermakian, N., Reppert, S.M., & Sassone-Corsi, P. (2002) Bimodal regulation of mPeriod promoters by CREB-dependent signaling and CLOCK/BMAL1 activity. Proc. Natl. Acad. Sci. USA, 99, 7728–7733.

13) Brancaccio, M., Maywood, E.S., Chesham, J.E., Loudon, A.S., & Hastings, M.H. (2013) A Gq-Ca2+ axis controls circuit-level encoding of circadian time in the suprachiasmatic nucleus. Neuron, 78, 714–728.

14) Doi, M., Ishida, A., Miyake, A., Sato, M., Komatsu, R., Yamazaki, F., Kimura, I., Tsuchiya, S., Kori, H., Seo, K., et al. (2011) Circadian regulation of intracellular G-protein signalling mediates intercellular synchrony and rhythmicity in the suprachiasmatic nucleus. Nat. Commun., 2, 327.

15) Doi, M., Murai, I., Kunisue, S., Setsu, G., Uchio, N., Tanaka, R., Kobayashi, S., Shimatani, H., Hayashi, H., Chao, H.W., et al. (2016) Gpr176 is a Gz-linked orphan G-protein-coupled receptor that sets the pace of circadian behaviour. Nat. Commun., 7, 10583.

16) Jagannath, A., Varga, N., Dallmann, R., Rando, G., Gosselin, P., Ebrahimjee, F., Taylor, L., Mosneagu, D., Stefaniak, J., Walsh, S., et al. (2021) Adenosine integrates light and sleep signalling for the regulation of circadian timing in mice. Nat. Commun., 12, 2113.

17) Oike, H., Kobori, M., Suzuki, T., & Ishida, N. (2011) Caffeine lengthens circadian rhythms in mice. Biochem. Biophys. Res. Commun., 410, 654–658.

18) An, S., Irwin, R.P., Allen, C.N., Tsai, C., & Herzog, E.D. (2011) Vasoactive intestinal polypeptide requires parallel changes in adenylate cyclase and phospholipase C to entrain circadian rhythms to a predictable phase. J. Neurophysiol., 105, 2289–2296.

19) Patton, A.P., Edwards, M.D., Smyllie, N.J., Hamnett, R., Chesham, J.E., Brancaccio, M., Maywood, E.S., & Hastings, M.H. (2020) The VIP-VPAC2 neuropeptidergic axis is a cellular pacemaking hub of the suprachiasmatic nucleus circadian circuit. Nat. Commun., 11, 3394.

20) Hung, C.J., Tsai, C.T., Rahaman, S.M., Yamanaka, A., Seo, W., Yokoyama, T., Sakamoto, M., & Ono, D. (2025) Neuropeptidergic input from the lateral hypothalamus to the suprachiasmatic nucleus alters the circadian period in mice. J. Neurosci., 45, e0351242024.

21) Ikeda, M., Sugiyama, T., Wallace, C.S., Gompf, H.S., Yoshioka, T., Miyawaki, A., & Allen, C.N. (2003) Circadian dynamics of cytosolic and nuclear Ca2+ in single suprachiasmatic nucleus neurons. Neuron, 38, 253–263.

22) Lundkvist, G.B., Kwak, Y., Davis, E.K., Tei, H., & Block, G.D. (2005) A calcium flux is required for circadian rhythm generation in mammalian pacemaker neurons. J. Neurosci., 25, 7682–7686.

著者紹介Author Profile

小野 大輔(おの だいすけ)

名古屋大学環境医学研究所 講師.博士(医学).

略歴

1980年静岡県浜松市生まれ.2004年東邦大学理学部生物学科卒業,06年北海道大学大学院医学研究科医科学修士課程修了,07年ELS language school in St. Louis校卒業,12年北海道大学大学院医学研究科医学博士課程修了.12~16年北海道大学大学院医学研究科博士研究員→特任助教,16年名古屋大学環境医学研究所特任助教→助教,20年から現職.

研究テーマと抱負

すべての種に普遍的に存在する祖先型概日時計の同定,哺乳類概日時計中枢からの概日リズム出力メカニズム解明,種を超えた睡眠のメカニズム解明,の3本柱で研究を行っている.

ウェブサイト

https://daiono14.wixsite.com/circadianrhythm

趣味

ランニング.

This page was created on 2026-03-11T16:52:54.51+09:00
This page was last modified on 2026-04-17T16:26:24.000+09:00


このサイトは(株)国際文献社によって運用されています。