現代社会における不規則な生活や夜更かし習慣は概日時計の乱れを引き起こし,生活習慣病や精神疾患,悪性腫瘍などさまざまな病気のリスクを高めることが広く知られる.しかし「概日時計の乱れ」と一言でいっても,その具体的な機構には,内因的な概日時計の構成因子の機能不全から,概日時計の分子機構の下流でコントロールされる出力経路の異常,細胞どうしあるいは臓器どうしの概日リズムの脱同調まで,さまざまな要素が関係する.
遺伝学的な概日時計の機能異常と生理機能の関連は,時計遺伝子の変異体や遺伝子改変動物を用いた研究が進む.時計遺伝子の一つであるClockの変異マウスは体重増加や高血糖値,インスリン抵抗性などを示す一方で,Bmal1欠損マウスは体重減少や異所性脂肪蓄積を示すなど1),異常のある時計遺伝子により生理機能に生じる影響が異なる.また,外科的に概日時計の中枢である視交叉上核(suprachiasmatic nucleus:SCN)を破壊したマウスでは,体重増加やインスリン抵抗性を示す2).これらの知見から,概日時計の機能異常とエネルギー代謝および糖・脂質代謝の変調は密接につながることがわかる.
一方で,野生型動物を用いて,明暗周期や摂食時間を人為的に操作するなどの手法により,外因的に概日時計の乱れを誘導してその生理的影響を解析する研究も盛んに行われている.外因的な影響の解析は,ヒトにおける夜間照明やシフトワーク勤務などの概日リズム撹乱による健康への影響を理解する上で重要である.トランスクリプトームやプロテオーム解析をはじめとする近年の網羅解析技術の発展により,外因的なリズム撹乱により脳や肝臓,膵臓などに生じる影響が分子レベルで解明されてきた3–5).最近の報告では,明暗周期の前進シフトを繰り返したマウスの肝臓において,リズム性を示すトランスクリプトームの64%,全細胞プロテオームの98%,核プロテオームの95%がリプログラミングされるという6).これらの影響が全身の組織に生じる背景として,脳と末梢臓器を結ぶ神経系および内分泌系の概日シグナルに生じる影響がある.代表的なホルモンは副腎から分泌されるグルココルチコイドであり,末梢組織の強力なリセット因子として作用する7).また,さまざまな末梢組織には温度サイクル同調性があるため8),深部体温動態も全身のリズム統御に重要である.さらに,エストラジオールやテストステロンなどの性ホルモンを介する性依存的影響も大きい.
本稿では,週末の明暗周期を後退させて週明けに元の周期に戻した社会的時差ぼけモデル,および頻繁に明暗周期を前進シフトさせた慢性的時差ぼけモデルで生じる生理機能変化に焦点を当て,我々が解明してきた研究成果を概説する.脳や末梢組織への局所的な影響に加えて,全身的なホルモン・深部体温リズムを介した制御機構に視野を広げて,概日時計システムとしての「概日時計の乱れ」を考えたい.慢性的時差ぼけモデルについては,性ホルモンを介する性依存的な影響について議論する.
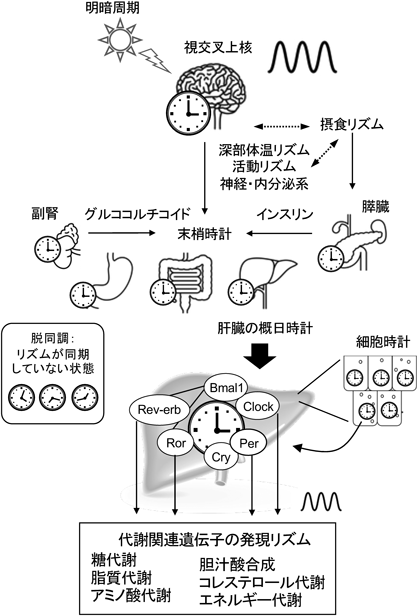
概日時計の中枢であるSCNは,環境の明暗周期情報を網膜–視床下部神経路を介して受け取り,神経系や内分泌系を介して,体全体のリズムが環境リズムに同調するように統括している.約24時間の概日リズムを生み出す分子機構は,脳や臓器を構成する細胞の一つ一つに備わっている.通常状態では各種組織における細胞間のリズムが同期して,集合体としてのリズムを刻んでいる.さらにすべての組織・臓器は個体の中で適切なリズム位相関係を維持しながら,概日時計システムの階層構造を構成している(図1).
細胞における概日時計の分子機構は,時計遺伝子の転写・翻訳フィードバックループからなり,Clock, Bmal1, Per, Cryを含むコアループにRev-erbαやRorαによるBmal1転写制御ループが重なる.Per2とルシフェラーゼの融合遺伝子を導入したマウス(Per2::Luc)の脳組織や各種臓器を切り出してex vivo培養を行うと,SCN・末梢臓器ともに20日以上の発光リズムが継続する9).SCNを破壊した動物でも末梢臓器の概日リズムは損なわれず,位相のみが脱同調する9).したがって,生体内で末梢時計が正常な時刻情報で作動するためには,SCNからの出力を媒介する概日シグナルのインプットが絶えず必要である.
全身のリズムを統括する概日シグナルには,深部体温とグルココルチコイドが含まれる7, 8).加えて,食事リズムに伴い分泌が変動するインスリンも末梢臓器の同調因子として作用する10)(図1).末梢時計はこれらの概日シグナル因子に応答して時刻合わせを行うが,その応答機序はシグナルにより異なる.たとえば,深部体温の場合,heat shock factor 1(HSF1)やその制御下にあるheat shock proteins(HSPs)が含まれる11, 12).肝臓におけるRev-erbαの過剰発現で局所的な概日時計機能を阻害すると,多くの時計遺伝子発現の概日リズムは消失するが,HSPsのリズムは継続する12).また,最近の研究により,体温リズムがPer2タンパク質産生を翻訳レベルで調節することが解明された13).一方で,グルココルチコイドの場合,glucocorticoid response elementがPer1のプロモーターに存在し,直接遺伝子発現を調節する14).これらの例のように,末梢時計の同調時にはすべての遺伝子発現が急激に応答するのではなく,まず一部の遺伝子群が概日シグナルに応答し,その後に組織全体の遺伝子発現リズムや生理出力リズムの同調が続く.このような秩序性は,急激な環境変化に対して生体機能を維持しながら環境リズムに適応するためのものと考えられる.
末梢時計の明暗周期に対する同調は緩慢であり,迅速に応答して位相を調節するSCNの概日時計とは対照的である15).中枢と末梢の同調速度の違いは,環境リズム変化直後における一時的なリズム位相の乖離,すなわち内的脱同調(internal desynchronization)の状態を生み出す.なお,明暗周期や社会生活のリズムとの概日リズムがずれた状態を「外的脱同調(external desynchronization)」といい,いわゆる時差ぼけの状態となる.外部環境の頻繁な変化に概日時計システムの同調が追いつかず,時差ぼけ状態が慢性化した場合,概日時計の機能異常や慢性的な内的脱同調を誘導し,概日時計下流で制御される生理機能出力系の変容を引き起こす.
社会的時差ぼけ(social jet lag)とは,平日の就寝・起床時刻の中央値に比べて週末の中央値が後退している状況を指し,現代社会における概日時計の乱れおよび睡眠問題と密接に関わる.身体の概日リズムと社会的なリズムが日常的にずれる状態であるため,慢性的な時差ぼけ状態が続いてしまう16).欧州の65,000人以上を対象とした調査では,3分の1以上が2時間以上の社会的時差ぼけ状態にあり,夜型のクロノタイプを有する人の睡眠不足と関連する17).社会的時差ぼけの程度は,肥満や糖尿病のリスク17–19),脳神経活動20),うつ病リスク21),学生の学業パフォーマンス22)などと相関があり,その生物学的な機序の理解と改善策が現代社会における重要な課題である.
実験動物を用いた社会的時差ぼけの基礎研究では,週に2日間,週末に相当する日の明暗周期を後退させ,月曜に相当する日に前進させて元のサイクルに戻す実験モデルが用いられる23–25).活動リズムおよびPer2::LucマウスのSCNや末梢時計における発光リズムは週末に大きく後退し,その後退は平日の間に少しずつ前進するものの,後退した位相は週の後半まで継続した23).また,回転輪の使用により月曜からの再同調が加速され,その影響は高脂肪食条件で顕著であった24).一方で,社会的時差ぼけ処理により,回転輪運動量そのものや,運動誘導性のミトコンドリア機能の増加が抑制されるとの報告もあり25),運動介入は万全の方策ではないといえる.
他のモデルとして,月曜から金曜に相当する日の明期開始から数時間の間,動物を強制的に運動させて平日の睡眠位相を後退させるモデルがある26).ラットを用いた報告では,この処理のみでは代謝指標に有意な影響はなかったが,週末に高脂肪・高糖質のカフェテリア食を与えることで,過剰な体重やメタボリック症候群の症状が誘導された26).以上の報告から,社会的時差ぼけの影響は食生活や運動習慣と密接に相互作用することがわかる.
4. 社会的時差ぼけ条件における概日時計システムの内的脱同調
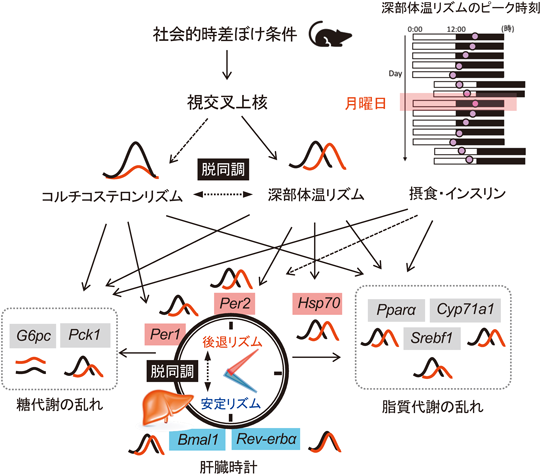
我々は最近,土日に相当する日の明暗周期を6時間後退させて月曜に元に戻す社会的時差ぼけモデルマウスを用いて,末梢時計とその調節に関わる深部体温・ホルモンリズムへの影響を解析した27)(図2).より明確な影響を検出するため,明暗周期シフトへの再同調が若齢動物に比べて遅い中高齢のオスマウス28)を用いた.体内埋め込み型ロガーを用いて測定した深部体温リズムのピーク時刻は土日に大きく後退し,月曜から火曜は有意に後退したままであった.一方で,月曜の血漿コルチコステロンリズムのピーク時刻は後退せず,概日リズム振幅の減弱のみがみられた.したがって,深部体温リズムとコルチコステロンリズムは,位相関係がずれる脱同調状態であった.
次に,月曜日の肝臓における時計遺伝子の発現リズムを調べた.Per1およびPer2の発現リズム位相には3時間以上の後退がみられたが,Bmal1の発現リズムには2時間程度の後退,Rev-erbαの発現リズムはほとんど後退しないなど,遺伝子特異的な位相変化量がみられた.時計遺伝子の制御下にある遺伝子群や糖・脂質代謝遺伝子群の発現にも,明確にリズム位相が後退する遺伝子群と,ほとんど変化しない遺伝子群がみられた.すなわち,肝臓の遺伝子発現リズムにも,遺伝子群間の脱同調が生じていた.これらの遺伝子特異的なリズムのずれは,深部体温およびコルチコステロンリズムといった概日シグナル間の脱同調と,それぞれのシグナルに対する肝臓の遺伝子特異的な応答性によるものと考えられる.
この仮説を確かめるため,肝臓組織片を高温刺激,デキサメタゾン(合成副腎皮質ホルモン)刺激,インスリン刺激のいずれかに曝露した.その結果,生体において月曜に大きく後退していた遺伝子群の多くは,高温刺激応答性を有することが判明した.デキサメタゾンやインスリンに対しては,時計遺伝子群よりも代謝遺伝子群で刺激特異的な応答性が確認された.さらに,これらの刺激に対する応答性は,肝臓組織片が由来する動物が若齢か高齢か,あるいは通常の明暗周期飼育か社会的時差ぼけ飼育かによって,大きく異なることがわかった.以上の結果は上記の仮説を裏づけるものであり,肝臓の遺伝子特異的な刺激応答性が脱同調状態を作り出すことが示唆された.
以上より,マウスにおける社会的時差ぼけ条件は,全身的な概日シグナルとしての深部体温リズムとグルココルチコイドリズムの脱同調を引き起こし,それが肝臓の分子時計や代謝経路の局所的な脱同調を引き起こすと示唆される(図2).これらの概日時計システムにおける内的脱同調は,週の後半になるにつれて回復するが,週末にまた脱同調状態が誘導される.このような階層的な脱同調機序を考慮すれば,解消に向けた取り組みとして,上位に位置する概日時計中枢や深部体温リズムを制御する方策が有効と考えられる.
概日時計システムには,テストステロンやエストラジオールといった性ホルモンによる制御機構も含まれるため,明確な性差が存在する.性ホルモンの分泌リズムは概日時計に制御されると同時に,脳中枢や末梢時計への入力因子としても作用する.精巣摘出マウスでは回転輪活動リズムの概日周期の延長や活動量低下がみられ,テストステロンの慢性投与により正常化する29).概日周期の延長は恒暗条件ではみられず赤色光の恒薄明条件で認められるため,テストステロンと光応答性との関連も示唆される30, 31).卵巣摘出動物でも回転輪活動量の低下などの影響がみられ,エストラジオールの慢性投与で回復する32).これらの影響には,SCNおよび求心性・遠心性の神経核に局在するアンドロゲン受容体(AR)およびエストロゲン受容体(ER)が関わる.これらの神経核におけるARおよびERの発現量には性差があり,性ホルモン分泌量により変化する31).さらに,各種神経核における細胞数や神経連絡の程度,またGABAやグルタミン酸神経細胞数などの構成的・機能的な機序にも性差がある31).
性ホルモンが概日時計に及ぼす影響において,SCNへの直接的な作用と,ほかの神経核を介した間接的な作用が,どの程度寄与するのかは不明である.SCNと神経連絡のあるさまざまな神経核にも局所的な概日時計が存在するため,脳内の概日時計システムとして捉える必要がある.メス動物では発情周期に伴い性ホルモン分泌量が変化し,発情前期から発情期にかけて行動量が増えてリズム位相が前進する.ラットの発情周期ステージごとの各種神経核におけるPer2タンパク質リズムを解析した研究では,SCNでのリズムは周期を通じて安定的であった一方で,oval nucleus of the bed nucleus of the stria terminalisやcentral nucleus of the amygdalaでのリズムの振幅は発情後期と発情休止期に減弱した33).これらの影響と活動リズム変化との関連は不明であるが,少なくとも中枢系の概日時計に対する雌性ホルモンの影響には部位特異性があるといえる.最近,ウェアラブルデバイスを用いて,女性の月経周期に伴う睡眠覚醒リズムの変化が一年を通して観察された34).月経ステージごとの24時間リズム成分の強さ(Qp値)が解析された結果,エストラジオール分泌が亢進する卵胞期で他のステージよりも強くなることが確認された34).この結果から,ヒトでも月経周期および性ホルモンと概日時計システムの間に相互作用があることが示唆される.また,雌雄ともに,加齢に伴う性ホルモン分泌量の変化が概日時計や活動リズムに顕著な影響を及ぼす35–37).したがって,性ホルモンによる概日時計システム制御の理解は,ライフステージを通した健康管理において重要な課題である.
近年,オミクス技術を駆使した分子レベルでの概日時計の性差研究が進む.マウスの肝臓や膵臓におけるトランスクリプトームの概日リズムには明確な性差があり3, 38),肝臓ではリズム性を示す遺伝子の数はメスの方がオスよりも多い38).どちらの臓器も,リズム性を示す遺伝子群には性特異性がみられる.さらに肝臓において,性ホルモン制御遺伝子群との比較解析が行われた.メスではER制御遺伝子の多くが,オスではAR制御遺伝子の多くがリズム性を示すことが解明され,性ホルモン依存的な末梢時計の制御が示唆された38).ヒトにおいても,死後組織の遺伝子発現を時刻情報とともに解析した結果,肝臓や副腎などいくつかの組織では,女性の方が男性よりもリズム性を示す遺伝子が多かった39).興味深いことに,無菌マウスでは性依存的な肝臓の遺伝子発現リズムが消失する40).腸内細菌叢にも性差があり,卵巣および精巣ホルモンにより制御されていることから41),概日時計システムの性差における腸内細菌叢の重要性も示唆される.
現代社会は昼も夜も社会が動き続ける24時間型社会である.この社会を支えるのは,昼と夜の勤務を交替で勤務するシフトワーカーである.2022年の人事院による民間企業の勤務条件制度等調査結果によると,交替性勤務がある企業は44.1%(500人以上の規模の企業では57%)にのぼる.うち勤務時間が長くなりがちである二交替性が51%,三交替性が26%であり,二交替性の割合が多い.医療機関で働く看護職員等の実態調査においても,二交替性の割合が50.7%であり,この割合は年々増加している(日本医療労働組合連合会,2024年度夜勤実態調査結果).さらに16時間以上の長時間勤務に従事する看護職員が全体の49.4%を占める.長期のシフトワークおよび長時間夜勤における安全面と健康面のリスク解消に向けて,勤務体制の適正化や生物学的側面からの改善方策が強く望まれる.
シフトワーク勤務が疾病リスクを高める要因として,1)昼夜リズムのシフトによる概日時計の乱れ,2)夜間の光曝露によるメラトニン分泌抑制,3)不規則な生活リズムによるストレスおよび食生活の変化,4)昼に外出しないことによるビタミンD生合成量の低下など,複数の要因が指摘されている42).前節で述べたように,概日時計システムには性差があるため,特に1)の要因に関しては性依存的影響が推察される.実際に,シフトワーカーを対象とした多くの疫学調査において,各種疾病リスクの性差が報告されてきた.しかし,肥満や糖尿病,メタボリック症候群のリスクは女性の方が男性より高いという報告と43),男性の方が高いという報告が混在し44),結果に一貫性がない.研究調査対象の集団により,シフト勤務のスケジュールや食事摂取パターン,職場の光環境,身体活動量の違いなどが異なるためと考えられる.
一方で,光環境や食事条件を統一できる実験室での模擬実験では,より正確に性差を捉えることができる.男女16名(平均年齢28±9歳,うち女性6名)の被験者を対象として,夜勤を模して明暗周期を逆転し,夜間を4日間連続で明期にした模擬的夜勤実験が行われた.その結果,食欲抑制ホルモンであるレプチンの分泌量が女性では減少する一方で男性では増加し,食欲増加ホルモンであるグレリンの分泌量は女性のみで増加した45).また,男性のみでエネルギー密度の高い食品に対する嗜好性が増加,女性のみで呼吸率が低下などの性差がみられた.これらの結果は,明暗周期の昼夜逆転パターンが生理指標に及ぼす性差を示唆する.しかし,ヒトでは遺伝的多様性や生育環境の違いによる嗜好性や代謝の個人差が大きいため,それらの交絡要因が関与する可能性が否めない.
マウスおよびラットを用いた実験において,頻繁に明暗周期をシフトさせる慢性的時差ぼけ実験(chronic jet lag;circadian misalignment)の結果が数多く報告されている.概日時計の位相は明暗周期の後退に対しては比較的迅速に再同調できるが,前進に対する再同調速度が遅い.このため数日ごとに明暗周期を前進させると,再同調が完了しないまま次の周期となるため,慢性的な時差ぼけ状態を誘導できる.多くの研究では,明暗周期を2~7日おきに6~8時間ずつ前進シフトさせる実験条件が用いられる.慢性的時差ぼけ動物において,体重・脂肪重量・血中トリグリセリド値の増加および糖耐性の低下・インスリン抵抗性増加といった肥満・糖尿病の症状46, 47),海馬神経新生および認知機能の低下48),不安およびうつ様行動の増大48, 49),腫瘍増殖の加速50)などが報告されている.高齢動物を用いた研究では,慢性的時差ぼけ処理による寿命の短縮51)や免疫老化52)の報告もある.
明暗周期の調節により概日時計の乱れを誘導する実験処理として,概日時計が同調不可能なサイクルで明暗条件を設定する強制的脱同調条件(10時間明期と10時間暗期の20時間サイクル)や,暗期に薄暗い照明を点灯し続ける夜間薄明条件などもある.20時間サイクルの明暗条件では,体重増加や血中インスリンおよびレプチン濃度の増加,前頭前野における樹状突起長の減少がみられた53).夜間薄明条件においても,体重増加および糖耐性の低下や時計遺伝子発現リズム振幅の減弱などが報告されている54, 55).これらの影響は摂食量の変化を伴わないため,ストレスによる過食ではなく,代謝リズムを調節する概日時計システムの異常と考えられる.
慢性的時差ぼけ条件をはじめとするさまざまな明暗周期撹乱実験の結果が蓄積されているが,その多くはオス動物のみを用いている.妊娠期や産後の明暗周期撹乱が不安・うつ様行動に及ぼす影響を調べる目的でメス動物を用いた報告もあるが56, 57),雌雄を比較した研究は少ない.オス動物において,さまざまな概日時計の乱れを誘導する処理により統一的に検出される表現型は,体重の過剰な増加や糖耐性の低下を特徴とする肥満・糖尿病・メタボリック症候群の症状である.これらの影響がメス動物でも同様かどうかを明らかにするためには,雌雄の動物を用いて概日リズムやそれに制御される代謝リズム指標を評価する必要がある.
8. 慢性的時差ぼけがマウスの概日時計と代謝に及ぼす影響の性差
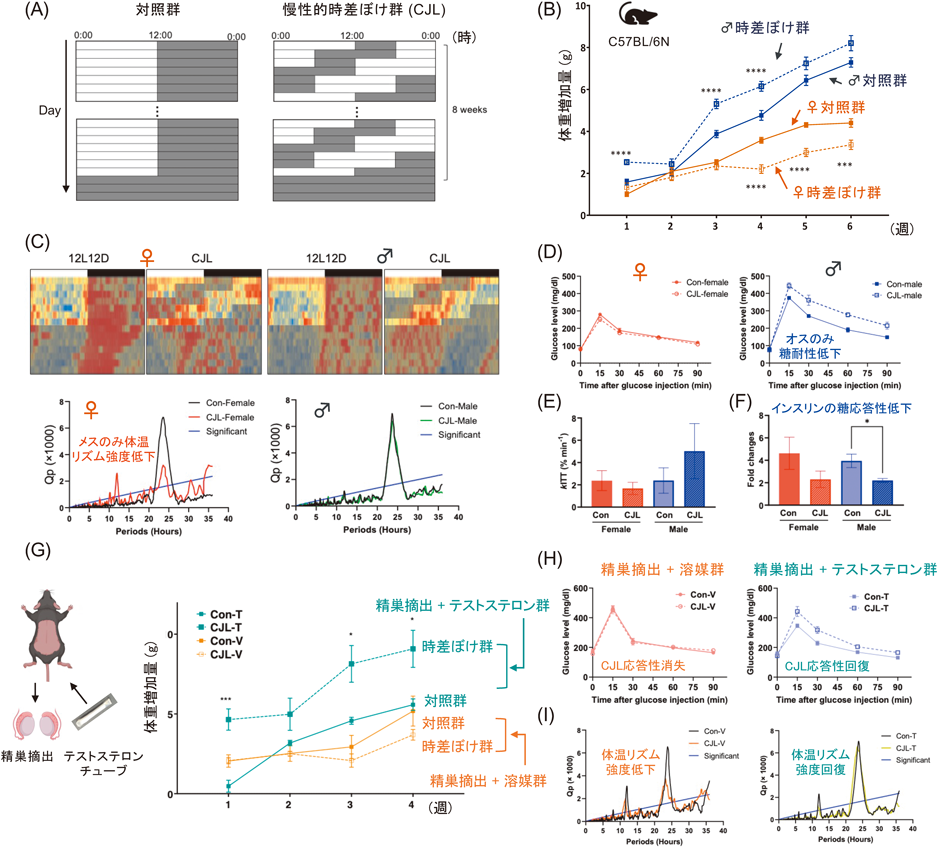
我々は最近,慢性的時差ぼけ処理がマウスの概日リズムおよび代謝に及ぼす影響の性差の解明に取り組んできた58).多くの概日時計に関する実験では,C57BL/6J系統が用いられている.この系統は糖恒常性に関わるnicotinamide nucleotide transhydrogenaseの変異を含めて,ほかの亜系統と比べて多くの一塩基多型(SNP)がある59).C57BL/6JはC57BL/6Nに比べて高脂肪食誘導性の肥満になりやすく60, 61),糖耐性も脆弱である62).そこで我々は,2日ごとに6時間ずつ明暗周期を前進シフトさせる慢性的時差ぼけ条件にて(図3A),雌雄のC57BL/6NおよびC57BL/6Jマウスの体重増加にみられる性差を比較した.興味深いことに,C57BL/6Nのオスの体重は対照群に比べて増加した一方で,メスの体重は減少するという真逆の性差が認められた(図3B).C57BL/6Jマウスのオスでも同様の影響がみられたが,メスにおける影響は限定的であった.どちらの系統・性別でも,慢性的時差ぼけ処理による摂食量への影響はみられず,体重への影響は代謝変化によるものと考えられた.これらの結果から,慢性的時差ぼけ条件における概日時計と代謝リズムの性差解析には,C57BL/6Nマウスが適していると示唆される.
C57BL/6Nマウスを用いて,体内埋め込み型ロガーにて,慢性的時差ぼけ条件後に恒暗条件でフリーランさせて活動および深部体温リズムを解析した.概日リズムの強さを示すQp値は,活動リズムについては雌雄ともに,深部体温リズムについてはメスのみで低下した(図3C).肝臓および副腎の時計遺伝子発現リズムを調べたところ,多くの遺伝子の有意なリズム性がメスのみで慢性的時差ぼけ処理により消失した.また,オープンフィールド試験による不安様行動がメスのみで増加した.これらの結果から,メスの方がオスよりも脳や末梢臓器の概日時計が慢性的時差ぼけに対して脆弱であることが示唆される.
次に,肝臓の糖・脂質代謝関連遺伝子の発現リズムを解析した.脂質代謝関連経路には,雌雄ともに慢性的時差ぼけ処理による影響は限定的であり,CTスキャンを用いた体脂肪解析や肝臓の脂肪量解析でも脂肪蓄積量に明確な変化は認められなかった.一方で,糖代謝関連経路には,性依存的な影響がみられた.E-boxを介して時計遺伝子により直接制御されるグリコーゲン合成遺伝子Gys263)の発現リズムの振幅は雌雄ともに慢性的時差ぼけ処理により減弱し,メスでは有意なリズム性が消失した.グリコーゲン分解遺伝子であるPyglおよびAglの発現リズムの振幅についても,メスのみで有意に減弱した.これらの結果は時計遺伝子発現リズムの結果と一致する.一方で,糖新生および解糖系経路に含まれるG6pcの発現量は,オスのみで一日を通して低下し,時計遺伝子発現リズムと連動しなかった.G6pcはBmal1と同様に,ROREを介してRORαにより発現制御される64).しかしG6pcの発現制御には概日時計に加えて,インスリンによる発現抑制経路やグルカゴンによる制御も関わる65).そこで糖代謝に関わる指標をさらに調べたところ,血糖値は雌雄ともに維持されており,血漿インスリン濃度はオスのみで慢性的時差ぼけにより亢進していた.したがって,G6pcの発現制御には,概日時計経路よりもインスリン応答経路の方が優位に作用すると考えられる.以上の結果から,肝臓の代謝関連遺伝子発現の多くは概日時計の制御下にあるものの,その影響には代謝関連ホルモンとの相互作用があること,また概日時計制御の優位性は遺伝子により異なることが示唆される.
糖恒常性への影響の性差をさらに明らかにするため,糖負荷試験を行ったところ,オスのみで糖耐性の低下がみられた(図3D).インスリンに対する血糖反応は雌雄ともに正常であり(図3E),グルコース応答性のインスリン分泌量がオスのみで低下した(図3F).これらの結果から,オスにおける糖耐性の低下には,膵臓の機能異常が関与する可能性が示唆される.実際に,慢性的時差ぼけ処理により膵臓のトランスクリプトームには顕著な影響があり,95%以上の遺伝子発現には位相変化がみられる3).膵臓に対する影響に加えて,血糖処理の70%を占めるともいわれるインスリン非依存的な血糖処理の関与も考えられる66).さらに,オスではグルコース応答性インスリン分泌が少ないのに,血漿インスリン濃度が恒常的に高いことから,インスリンクリアランスの関与も示唆される.オスにおける糖恒常性の撹乱機序には不明な点が多いが,メスよりもオスの方が,慢性的時差ぼけに対して糖恒常性機能が脆弱であることは確かである.これは一見,メスにおける概日時計の脆弱性と矛盾するが,代謝経路におけるインスリン制御機序との相互作用が,代謝への影響の性差を複雑化していると考えられる.
前節で述べたように,慢性的時差ぼけ条件での概日リズムや代謝変化には明確な性差が存在する.これらの性差に対する性ホルモンの役割を明らかにするため,精巣摘出およびテストステロン補充実験を行った58).精巣摘出マウスでは,健常オスマウスでみられたような慢性的時差ぼけ処理による体重増加や糖耐性低下はみられず,対照群と比べて体重が減少し,糖耐性は維持された(図3G, H).また,慢性的時差ぼけ処理により深部体温リズムの強度が低下した(図3I).これらの反応性は,健常メスマウスにおける反応性と類似していた.さらに,テストステロンを生理学的濃度で持続的に放出するシリコンチューブを腹腔内に埋め込んだマウスでは,健常オスマウスでみられた体重増加・糖耐性低下・深部体温リズム維持といったオス特有の反応性が回復した(図3G~I).以上の結果より,慢性的時差ぼけに対するオス特有の生体反応は,テストステロンが制御することが明らかとなった.
メス動物における卵巣やエストラジオールの影響に関しては,先行研究で卵巣摘出を用いた研究報告がある67).卵巣摘出マウスでは,慢性的時差ぼけ処理による内臓脂肪の増加,血漿インスリン濃度の亢進,糖耐性低下,インスリン抵抗性増加などの影響がみられた.これらの影響は,我々が見いだした健常オスマウスの生体応答と一部類似している.さらに,卵巣摘出マウスに17βエストラジオールを持続放出するペレットを埋め込むと,それらの影響が消失した67).したがって,慢性的時差ぼけ条件に対する性特異的な反応性において,精巣および卵巣(テストステロンおよびエストラジオール)はそれぞれの性で同等の役割を持つことが示唆される.
性ホルモンの働きは栄養条件の影響を受けることが知られる.たとえば高脂肪食の長期給餌により,オスマウスの血清テストステロン濃度が低下し,精子機能にも悪影響が生じる68).また,高脂肪食を給餌したラットやマウスの脳におけるERαおよびERβの発現には,性・給餌期間・脳部位特異的な影響がみられる69, 70).したがって,慢性的時差ぼけ条件が概日リズムや代謝に及ぼす影響は,栄養条件により大きく異なることが示唆される.オス動物を用いた研究では,高脂肪食給餌と20時間周期の強制的脱同調条件を組み合わせると,より顕著な体重増加の亢進や糖耐性の低下がみられた71).また,オスマウスを用いて,1週間のうち3日間の明期と暗期を反転させた条件で高脂肪食を給餌すると,通常の明暗周期群に比べて空腹時血糖値の顕著な亢進がみられた72).以上のように,オス動物では高脂肪食条件が明暗周期撹乱の影響を強めることが知られるが,メス動物における知見は少ない.
近年,高脂肪食を給餌したC57BL/6Jマウスを用いて,慢性的時差ぼけ条件の性差を比較した研究結果が発表された4).当該研究では,メスの方が回転輪活動の概日リズム強度および肝臓の遺伝子発現リズムがオスよりも強く維持されていた.この結果は,我々が通常食条件のC57BL/6Nマウスを用いて,体内埋め込みロガーにより深部体温リズムを解析した研究結果と真逆である58).これらの結果の不一致には,1)高脂肪食条件の有無,および2)回転輪使用の有無が大きく寄与していると考えられる.第一の要因に関して,高脂肪食を給餌したオスマウスでは,摂食リズムが減弱して体重の過剰な増加がみられる73).一方で,メスマウスではエストロゲン依存的に摂食リズムが維持され,高脂肪食に対する耐性が高い74).したがって,オスの高脂肪食に対する脆弱性が,慢性的時差ぼけ処理の影響をより強めたと考えられる.第二の要因について,メスでは回転輪の設置により活動リズムが顕著に強まる75).オスでも,回転輪の設置により摂食および肝臓の概日リズム位相が調節され76),加齢マウスの活動リズムが強められる77).以上より,慢性的時差ぼけ条件が概日時計に及ぼす性差は,摂取栄養のバランス,身体活動量,性ホルモンの状態(性周期や加齢)により顕著に変化すると考えられる.
「時差ぼけで太りやすくなる」と一般的に認識されてきたが,その認識を支える動物実験結果の多くはオス動物を用いた研究であった.本稿で説明したように,雌雄のマウスを用いて,飼育環境や栄養環境,遺伝的背景を統一して行った筆者らの実験では,オスでは慢性的時差ぼけ条件で太りやすい一方で,メスでは逆に体重増加が抑制されることが明らかとなった.ほかの研究グループの性差に関する報告を重ね合わせると,時差ぼけの影響は栄養条件や身体活動量,遺伝的背景などにより,時には雌雄の脆弱性が逆転するほど大きく変化することがわかる.逆の見方をすれば,生物学的性に基づく時差ぼけ脆弱性は,食事摂取や運動習慣により克服可能と考えられる.このことは,社会的時差ぼけやシフトワーク勤務と関連する疾病リスクにも当てはまる可能性がある.シフトワーク勤務とがんのリスクの相関は世界各国で多くの報告があり,個別の研究論文は1000報以上にのぼる.しかし,57論文(合計約840万人の調査対象者)を用いたメタアナリシスでは,シフトワーク勤務とがんの有意な相関は認められなかった78).高リスク群および低リスク群内の共通要素(勤務スケジュール,食事摂取状況など)を横断的に洗い出すことで,リスク軽減方策が見いだせるかもしれない.
概日時計システムの乱れの背後にある機序は複雑であり,多くの要因が絡み合う課題である.今後,個別の生物学的・環境的・社会的要因の影響の解明に加えて,複数要因の相互作用に関する科学的知見を蓄積することで,性を含む個別の特性に応じたオーダーメードな概日時計ケアが可能になると期待される.
謝辞Acknowledgments
本研究は,科学技術振興機構 創発的研究支援事業(JPMJFR201D)および日本医療研究開発機構(AMED, JP24gm2010005h0001)の補助を受けて実施されたものである.
引用文献References
1) Kolbe, I. & Oster, H. (2019) Chronodisruption, metabolic homeostasis, and the regulation of inflammation in adipose tissues. Yale J. Biol. Med., 92, 317–325.
2) Coomans, C.P., van den Berg, S.A., Houben, T., van Klinken, J.B., van den Berg, R., Pronk, A.C., Havekes, L.M., Romijn, J.A., van Dijk, K.W., Biermasz, N.R., et al. (2013) Detrimental effects of constant light exposure and high-fat diet on circadian energy metabolism and insulin sensitivity. FASEB J., 27, 1721–1732.
3) Schwartz, P.B., Walcheck, M.T., Berres, M., Nukaya, M., Wu, G., Carrillo, N.D., Matkowskyj, K.A., & Ronnekleiv-Kelly, S.M. (2021) Chronic jetlag-induced alterations in pancreatic diurnal gene expression. Physiol. Genomics, 53, 319–335.
4) Anderson, S.T., Meng, H., Brooks, T.G., Tang, S.Y., Lordan, R., Sengupta, A., Nayak, S., Mrela, A., Sarantopoulou, D., Lahens, N.F., et al. (2023) Sexual dimorphism in the response to chronic circadian misalignment on a high-fat diet. Sci. Transl. Med., 15, eabo2022.
5) Siddique, R., Awan, F.M., Nabi, G., Khan, S., & Xue, M. (2022) Chronic jet lag-like conditions dysregulate molecular profiles of neurological disorders in nucleus accumbens and prefrontal cortex. Front. Neuroinform., 16, 1031448.
6) Duong, H.A., Baba, K., DeBruyne, J.P., Davidson, A.J., Ehlen, C., Powell, M., & Tosini, G. (2024) Environmental circadian disruption re-writes liver circadian proteomes. Nat. Commun., 15, 5537.
7) Healy, K.L., Morris, A.R., & Liu, A.C. (2021) Circadian synchrony: Sleep, nutrition, and physical activity. Front. Netw. Physiol., 1, 732243.
8) Buhr, E.D., Yoo, S.H., & Takahashi, J.S. (2010) Temperature as a universal resetting cue for mammalian circadian oscillators. Science, 330, 379–385.
9) Yoo, S.H., Yamazaki, S., Lowrey, P.L., Shimomura, K., Ko, C.H., Buhr, E.D., Siepka, S.M., Hong, H.K., Oh, W.J., Yoo, O.J., et al. (2004) Period2::Luciferase real-time reporting of circadian dynamics reveals persistent circadian oscillations in mouse peripheral tissues. Proc. Natl. Acad. Sci. USA, 101, 5339–5346.
10) Yamajuku, D., Inagaki, T., Haruma, T., Okubo, S., Kataoka, Y., Kobayashi, S., Ikegami, K., Laurent, T., Kojima, T., Noutomi, K., et al. (2012) Real-time monitoring in three-dimensional hepatocytes reveals that insulin acts as a synchronizer for liver clock. Sci. Rep., 2, 439.
11) Reinke, H., Saini, C., Fleury-Olela, F., Dibner, C., Benjamin, I.J., & Schibler, U. (2008) Differential display of DNA-binding proteins reveals heat-shock factor 1 as a circadian transcription factor. Genes Dev., 22, 331–345.
12) Kornmann, B., Schaad, O., Bujard, H., Takahashi, J.S., & Schibler, U. (2007) System-driven and oscillator-dependent circadian transcription in mice with a conditionally active liver clock. PLoS Biol., 5, e34.
13) Miyake, T., Inoue, Y., Shao, X., Seta, T., Aoki, Y., Nguyen Pham, K.T., Shichino, Y., Sasaki, J., Sasaki, T., Ikawa, M., et al. (2023) Minimal upstream open reading frame of per2 mediates phase fitness of the circadian clock to day/night physiological body temperature rhythm. Cell Rep., 42, 112157.
14) Yamamoto, T., Nakahata, Y., Tanaka, M., Yoshida, M., Soma, H., Shinohara, K., Yasuda, A., Mamine, T., & Takumi, T. (2005) Acute physical stress elevates mouse period1 mrna expression in mouse peripheral tissues via a glucocorticoid-responsive element. J. Biol. Chem., 280, 42036–42043.
15) Yamazaki, S., Numano, R., Abe, M., Hida, A., Takahashi, R., Ueda, M., Block, G.D., Sakaki, Y., Menaker, M., & Tei, H. (2000) Resetting central and peripheral circadian oscillators in transgenic rats. Science, 288, 682–685.
16) Wittmann, M., Dinich, J., Merrow, M., & Roenneberg, T. (2006) Social jetlag: Misalignment of biological and social time. Chronobiol. Int., 23, 497–509.
17) Roenneberg, T., Allebrandt, K.V., Merrow, M., & Vetter, C. (2012) Social jetlag and obesity. Curr. Biol., 22, 939–943.
18) Koopman, A.D.M., Rauh, S.P., van ’t Riet, E., Groeneveld, L., van der Heijden, A.A., Elders, P.J., Dekker, J.M., Nijpels, G., Beulens, J.W., & Rutters, F. (2017) The association between social jetlag, the metabolic syndrome, and type 2 diabetes mellitus in the general population: The new hoorn study. J. Biol. Rhythms, 32, 359–368.
19) Bouman, E.J., Beulens, J.W.J., Groeneveld, L., de Kruijk, R.S., Schoonmade, L.J., Remmelzwaal, S., Elders, P.J.M., & Rutters, F. (2022) The association between social jetlag and parameters of metabolic syndrome and type 2 diabetes: A systematic review and meta-analysis. J. Sleep Res., 32, e13770.
20) Hasler, B.P., Dahl, R.E., Holm, S.M., Jakubcak, J.L., Ryan, N.D., Silk, J.S., Phillips, M.L., & Forbes, E.E. (2012) Weekend-weekday advances in sleep timing are associated with altered reward-related brain function in healthy adolescents. Biol. Psychol., 91, 334–341.
21) Levandovski, R., Dantas, G., Fernandes, L.C., Caumo, W., Torres, I., Roenneberg, T., Hidalgo, M.P., & Allebrandt, K.V. (2011) Depression scores associate with chronotype and social jetlag in a rural population. Chronobiol. Int., 28, 771–778.
22) Smarr, B.L. & Schirmer, A.E. (2018) 3.4 million real-world learning management system logins reveal the majority of students experience social jet lag correlated with decreased performance. Sci. Rep., 8, 4793.
23) Haraguchi, A., Nishimura, Y., Fukuzawa, M., Kikuchi, Y., Tahara, Y., & Shibata, S. (2021) Use of a social jetlag-mimicking mouse model to determine the effects of a two-day delayed light- and/or feeding-shift on central and peripheral clock rhythms plus cognitive functioning. Chronobiol. Int., 38, 426–442.
24) Oneda, S., Cao, S., Haraguchi, A., Sasaki, H., & Shibata, S. (2022) Wheel-running facilitates phase advances in locomotor and peripheral circadian rhythm in social jet lag model mice. Front. Physiol., 13, 821199.
25) Dial, M.B., Malek, E.M., Cooper, A.R., Neblina, G.A., Vasileva, N.I., & McGinnis, G.R. (2025) Social jetlag alters markers of exercise-induced mitochondrial adaptations in the heart. Npj Biol. Timing Sleep, 2, 4.
26) Espitia-Bautista, E., Velasco-Ramos, M., Osnaya-Ramírez, I., Ángeles-Castellanos, M., Buijs, R.M., & Escobar, C. (2017) Social jet-lag potentiates obesity and metabolic syndrome when combined with cafeteria diet in rats. Metabolism, 72, 83–93.
27) Fukushima, S., Yang, D., Morita, T., Kurogi, K., Matsuo, R., Ma, T., Ikegami, K., Furuse, M., & Yasuo, S. (2025) Internal desynchrony of the circadian clock system in middle-aged mice under social jet lag-like conditions. bioRxiv, 2025.2010.2001.679730
28) Sellix, M.T., Evans, J.A., Leise, T.L., Castanon-Cervantes, O., Hill, D.D., DeLisser, P., Block, G.D., Menaker, M., & Davidson, A.J. (2012) Aging differentially affects the re-entrainment response of central and peripheral circadian oscillators. J. Neurosci., 32, 16193–16202.
29) Daan, S., Damassa, D., Pittendrigh, C.S., & Smith, E.R. (1975) An effect of castration and testosterone replacement on a circadian pacemaker in mice (mus musculus). Proc. Natl. Acad. Sci. USA, 72, 3744–3747.
30) Butler, M.P., Karatsoreos, I.N., LeSauter, J., & Silver, R. (2012) Dose-dependent effects of androgens on the circadian timing system and its response to light. Endocrinology, 153, 2344–2352.
31) Bailey, M. & Silver, R. (2014) Sex differences in circadian timing systems: Implications for disease. Front. Neuroendocrinol., 35, 111–139.
32) Royston, S.E., Yasui, N., Kondilis, A.G., Lord, S.V., Katzenellenbogen, J.A., & Mahoney, M.M. (2014) Esr1 and esr2 differentially regulate daily and circadian activity rhythms in female mice. Endocrinology, 155, 2613–2623.
33) Perrin, J.S., Segall, L.A., Harbour, V.L., Woodside, B., & Amir, S. (2006) The expression of the clock protein per2 in the limbic forebrain is modulated by the estrous cycle. Proc. Natl. Acad. Sci. USA, 103, 5591–5596.
34) Namie, T., Kotaka, T., Watanabe, K., Takasu, N.N., Nakamura, W., & Nakamura, T.J. (2025) Menstrual variations of sleep-wake rhythms in healthy women. Sleep Biol. Rhythms, 23, 5–12.
35) Hood, S. & Amir, S. (2017) The aging clock: Circadian rhythms and later life. J. Clin. Invest., 127, 437–446.
36) Hashimoto, A., Fujiki, S., Nakamura, W., & Nakamura, T.J. (2019) Effects of testosterone on circadian rhythmicity in old mice. J. Physiol. Sci., 69, 791–798.
37) Takasu, N.N., Nakamura, T.J., Tokuda, I.T., Todo, T., Block, G.D., & Nakamura, W. (2015) Recovery from age-related infertility under environmental light-dark cycles adjusted to the intrinsic circadian period. Cell Rep., 12, 1407–1413.
38) Astafev, A.A., Mezhnina, V., Poe, A., Jiang, P., & Kondratov, R.V. (2024) Sexual dimorphism of circadian liver transcriptome. iScience, 27, 109483.
39) Talamanca, L., Gobet, C., & Naef, F. (2023) Sex-dimorphic and age-dependent organization of 24-hour gene expression rhythms in humans. Science, 379, 478–483.
40) Weger, B.D., Gobet, C., Yeung, J., Martin, E., Jimenez, S., Betrisey, B., Foata, F., Berger, B., Balvay, A., Foussier, A., et al. (2019) The mouse microbiome is required for sex-specific diurnal rhythms of gene expression and metabolism. Cell Metab., 29, 362–382.e8.
41) Org, E., Mehrabian, M., Parks, B.W., Shipkova, P., Liu, X., Drake, T.A., & Lusis, A.J. (2016) Sex differences and hormonal effects on gut microbiota composition in mice. Gut Microbes, 7, 313–322.
42) Van Dycke, K.C., Rodenburg, W., van Oostrom, C.T., van Kerkhof, L.W., Pennings, J.L., Roenneberg, T., van Steeg, H., & van der Horst, G.T. (2015) Chronically alternating light cycles increase breast cancer risk in mice. Curr. Biol., 25, 1932–1937.
43) Karlsson, B., Knutsson, A., & Lindahl, B. (2001) Is there an association between shift work and having a metabolic syndrome? Results from a population based study of 27,485 people. Occup. Environ. Med., 58, 747–752.
44) Gan, Y., Yang, C., Tong, X., Sun, H., Cong, Y., Yin, X., Li, L., Cao, S., Dong, X., Gong, Y., et al. (2015) Shift work and diabetes mellitus: A meta-analysis of observational studies. Occup. Environ. Med., 72, 72–78.
45) Qian, J., Morris, C.J., Caputo, R., Wang, W., Garaulet, M., & Scheer, F. (2019) Sex differences in the circadian misalignment effects on energy regulation. Proc. Natl. Acad. Sci. USA, 116, 23806–23812.
46) Casiraghi, L.P., Alzamendi, A., Giovambattista, A., Chiesa, J.J., & Golombek, D.A. (2016) Effects of chronic forced circadian desynchronization on body weight and metabolism in male mice. Physiol. Rep., 4, e12743.
47) Iwamoto, A., Kawai, M., Furuse, M., & Yasuo, S. (2014) Effects of chronic jet lag on the central and peripheral circadian clocks in cba/n mice. Chronobiol. Int., 31, 189–198.
48) Horsey, E.A., Maletta, T., Turner, H., Cole, C., Lehmann, H., & Fournier, N.M. (2019) Chronic jet lag simulation decreases hippocampal neurogenesis and enhances depressive behaviors and cognitive deficits in adult male rats. Front. Behav. Neurosci., 13, 272.
49) Acosta, J., Crespo, M.T., Plano, S.A., Golombek, D.A., Chiesa, J.J., & Agostino, P.V. (2023) Chronic jet lag reduces motivation and affects other mood-related behaviors in male mice. Front. Physiol., 14, 1225134.
50) Filipski, E., Delaunay, F., King, V.M., Wu, M.W., Claustrat, B., Grechez-Cassiau, A., Guettier, C., Hastings, M.H., & Francis, L. (2004) Effects of chronic jet lag on tumor progression in mice. Cancer Res., 64, 7879–7885.
51) Davidson, A.J., Sellix, M.T., Daniel, J., Yamazaki, S., Menaker, M., & Block, G.D. (2006) Chronic jet-lag increases mortality in aged mice. Curr. Biol., 16, R914–R916.
52) Inokawa, H., Umemura, Y., Shimba, A., Kawakami, E., Koike, N., Tsuchiya, Y., Ohashi, M., Minami, Y., Cui, G., Asahi, T., et al. (2020) Chronic circadian misalignment accelerates immune senescence and abbreviates lifespan in mice. Sci. Rep., 10, 2569.
53) Karatsoreos, I.N., Bhagat, S., Bloss, E.B., Morrison, J.H., & McEwen, B.S. (2011) Disruption of circadian clocks has ramifications for metabolism, brain, and behavior. Proc. Natl. Acad. Sci. USA, 108, 1657–1662.
54) Fonken, L.K., Workman, J.L., Walton, J.C., Weil, Z.M., Morris, J.S., Haim, A., & Nelson, R.J. (2010) Light at night increases body mass by shifting the time of food intake. Proc. Natl. Acad. Sci. USA, 107, 18664–18669.
55) Fonken, L.K. & Nelson, R.J. (2014) The effects of light at night on circadian clocks and metabolism. Endocr. Rev., 35, 648–670.
56) Smarr, B.L., Grant, A.D., Perez, L., Zucker, I., & Kriegsfeld, L.J. (2017) Maternal and early-life circadian disruption have long-lasting negative consequences on offspring development and adult behavior in mice. Sci. Rep., 7, 3326.
57) Reis, L.G., Teeple, K., Dinn, M., Schoonmaker, J., Scinto, S.B., Ferreira, C.R., & Casey, T. (2025) Exposure to circadian disrupting environment and high-fat diet during pregnancy and lactation alter reproductive competence and lipid profiles of liver, mammary, plasma and milk of icr mice. PLoS One, 20, e0320538.
58) Ma, T., Matsuo, R., Kurogi, K., Miyamoto, S., Morita, T., Shinozuka, M., Taniguchi, F., Ikegami, K., & Yasuo, S. (2024) Sex-dependent effects of chronic jet lag on circadian rhythm and metabolism in mice. Biol. Sex Differ., 15, 102.
59) Zurita, E., Chagoyen, M., Cantero, M., Alonso, R., Gonzalez-Neira, A., Lopez-Jimenez, A., Lopez-Moreno, J.A., Landel, C.P., Benitez, J., Pazos, F., et al. (2011) Genetic polymorphisms among c57bl/6 mouse inbred strains. Transgenic Res., 20, 481–489.
60) Heiker, J.T., Kunath, A., Kosacka, J., Flehmig, G., Knigge, A., Kern, M., Stumvoll, M., Kovacs, P., Bluher, M., & Kloting, N. (2014) Identification of genetic loci associated with different responses to high-fat diet-induced obesity in c57bl/6n and c57bl/6j substrains. Physiol. Genomics, 46, 377–384.
61) Siersbaek, M.S., Ditzel, N., Hejbol, E.K., Praestholm, S.M., Markussen, L.K., Avolio, F., Li, L., Lehtonen, L., Hansen, A.K., Schroder, H.D., et al. (2020) C57bl/6j substrain differences in response to high-fat diet intervention. Sci. Rep., 10, 14052.
62) Fontaine, D.A. & Davis, D.B. (2016) Attention to background strain is essential for metabolic research: C57bl/6 and the international knockout mouse consortium. Diabetes, 65, 25–33.
63) Doi, R., Oishi, K., & Ishida, N. (2010) Clock regulates circadian rhythms of hepatic glycogen synthesis through transcriptional activation of gys2. J. Biol. Chem., 285, 22114–22121.
64) Tao, W., Chen, S., Shi, G., Guo, J., Xu, Y., & Liu, C. (2011) Switch/sucrose nonfermentable (swi/snf) complex subunit baf60a integrates hepatic circadian clock and energy metabolism. Hepatology, 54, 1410–1420.
65) Hutton, J.C. & O’Brien, R.M. (2009) Glucose-6-phosphatase catalytic subunit gene family. J. Biol. Chem., 284, 29241–29245.
66) Ahrén, B. & Pacini, G. (2021) Glucose effectiveness: Lessons from studies on insulin-independent glucose clearance in mice. J. Diabetes Investig., 12, 675–685.
67) Zhu, L., Zou, F., Yang, Y., Xu, P., Saito, K., Othrell Hinton, A. Jr., Yan, X., Ding, H., Wu, Q., Fukuda, M., et al. (2015) Estrogens prevent metabolic dysfunctions induced by circadian disruptions in female mice. Endocrinology, 156, 2114–2123.
68) Fan, Y., Liu, Y., Xue, K., Gu, G., Fan, W., Xu, Y., & Ding, Z. (2015) Diet-induced obesity in male c57bl/6 mice decreases fertility as a consequence of disrupted blood-testis barrier. PLoS One, 10, e0120775.
69) Scudiero, R. & Verderame, M. (2017) Gene expression profile of estrogen receptors alpha and beta in rat brain during aging and following high fat diet. C. R. Biol., 340, 372–378.
70) Morselli, E., Fuente-Martin, E., Finan, B., Kim, M., Frank, A., Garcia-Caceres, C., Navas, C.R., Gordillo, R., Neinast, M., Kalainayakan, S.P., et al. (2014) Hypothalamic pgc-1alpha protects against high-fat diet exposure by regulating eralpha. Cell Rep., 9, 633–645.
71) Zitting, K.M., Vetrivelan, R., Yuan, R.K., Vujovic, N., Wang, W., Bandaru, S.S., Quan, S.F., Klerman, E.B., Scheer, F., Buxton, O.M., et al. (2022) Chronic circadian disruption on a high-fat diet impairs glucose tolerance. Metabolism, 130, 155158.
72) LLabre, J.E., Trujillo, R., Sroga, G.E., Figueiro, M.G., & Vashishth, D. (2021) Circadian rhythm disruption with high-fat diet impairs glycemic control and bone quality. FASEB J., 35, e21786.
73) Kohsaka, A., Laposky, A.D., Ramsey, K.M., Estrada, C., Joshu, C., Kobayashi, Y., Turek, F.W., & Bass, J. (2007) High-fat diet disrupts behavioral and molecular circadian rhythms in mice. Cell Metab., 6, 414–421.
74) Palmisano, B.T., Stafford, J.M., & Pendergast, J.S. (2017) High-fat feeding does not disrupt daily rhythms in female mice because of protection by ovarian hormones. Front. Endocrinol. (Lausanne), 8, 44.
75) Ruiz de Elvira, M.C., Persaud, R., & Coen, C.W. (1992) Use of running wheels regulates the effects of the ovaries on circadian rhythms. Physiol. Behav., 52, 277–284.
76) Pendergast, J.S., Branecky, K.L., Huang, R., Niswender, K.D., & Yamazaki, S. (2014) Wheel-running activity modulates circadian organization and the daily rhythm of eating behavior. Front. Psychol., 5, 177.
77) Leise, T.L., Harrington, M.E., Molyneux, P.C., Song, I., Queenan, H., Zimmerman, E., Lall, G.S., & Biello, S.M. (2013) Voluntary exercise can strengthen the circadian system in aged mice. Age (Omaha), 35, 2137–2152.
78) Dun, A., Zhao, X., Jin, X., Wei, T., Gao, X., Wang, Y., & Hou, H. (2020) Association between night-shift work and cancer risk: Updated systematic review and meta-analysis. Front. Oncol., 10, 1006.
著者紹介Author Profile
 安尾 しのぶ(やすお しのぶ)
九州大学大学院農学研究院 主幹教授.博士(農学).
略歴1999年北海道大学理学部卒業.2003年名古屋大学大学院生命農学研究科博士課程修了.05年日本学術振興会海外特別研究員としてドイツのフランクフルト大学にて研究に従事.09年九州大学大学院農学研究院准教授.22年同教授.24年同主幹教授.
研究テーマと抱負季節・性・概日リズムを含むマルチスケールの生体リズムの連関機序を解明し,時とともに揺れる気分や生体変調状態の制御基盤を明らかにしたい.冬季うつ病の性依存的な制御機序,予防改善に向けた研究にも取り組んでいる.
ウェブサイトhttps://www.agr.kyushu-u.ac.jp/lab/lrmb/
趣味楽器演奏,旅行,雑貨屋めぐり.