Online ISSN: 2189-0544 Print ISSN: 0037-1017
公益社団法人日本生化学会 The Japanese Biochemical Society
Journal of Japanese Biochemical Society 98(2): 274-284 (2026)
doi:10.14952/SEIKAGAKU.2026.980274

総説Review

NAD代謝と腸内細菌の連関Crosstalk between NAD metabolism and the gut microbiota

富山大学学術研究部医学系分子医科薬理学講座Department of Molecular and Medical Pharmacology, Faculty of Medicine, University of Toyama ◇ 〒930–0194 富山県富山市杉谷2630 ◇ 2630 Sugitani, Toyama, Toyama 930–0194, Japan

発行日:2026年4月25日Published: April 25, 2026
HTMLPDFEPUB3

ニコチンアミドアデニンジヌクレオチド(NAD)は多様な生命現象を支える重要な分子である.近年,抗老化戦略の一環として,生体内のNADレベルを上昇させる目的でNAD前駆体の利用が注目されている.一方で,NAD前駆体の一つであるニコチンアミドからNADを合成する過程において,腸内細菌が重要な役割を担うことが明らかにされて以降,NAD代謝における腸内細菌の関与が注目されている.さらに,腸内細菌叢の変化とNAD代謝との関連を示す報告も近年増加している.そこで本稿では,腸内細菌を介したNAD前駆体の代謝経路を概説するとともに,腸内細菌叢の変化が宿主のNAD恒常性に与える影響,およびNAD前駆体投与が腸内細菌叢に与える影響について整理した.これらの知見を基に,今後の課題について論じる.

1. はじめに

ニコチンアミドアデニンジヌクレオチド(NAD)は,補酵素として数百に及ぶ酸化還元反応に関与するのみならず,サーチュインによるタンパク質脱アセチル化やDNA修復など,代謝制御・エピジェネティクス制御・ゲノム恒常性の維持において中心的な役割を担っている1, 2).2000年にNADが酵母の寿命延長因子であるSir2の活性に必須であることが報告されて以降,NADは老化研究分野において重要な分子として注目されてきた3).実際,体内のNAD量は加齢に伴って低下することが多くの研究で示されており,この低下が老化に伴う生理機能低下や加齢関連疾患の発症に関与すると考えられている4–6).

こうした背景から,NAD不足に起因する生理機能低下は,NADを補充することで改善できる可能性があると考えられてきた.実際,NAD前駆体であるニコチンアミドリボシド(NR)やニコチンアミドモノヌクレオチド(NMN)は,さまざまな前臨床試験において老化関連疾患に対する有効性が報告されている7–11).一方で,これら前駆体からのNAD合成経路は主にin vitro系を用いて解析されてきたため,実際の生体内,とりわけ経口投与後にどのような代謝過程を経るのかについては不明な点が多く残されていた.

近年,NAD前駆体の一つであるニコチンアミド(NAM)の利用に腸内細菌が重要な役割を果たすことが報告されて以来,NAD代謝における腸内細菌の関与が注目を集めている12).NAD前駆体は主に経口投与で用いられることから,腸内細菌との相互作用を受けた後に宿主へ作用すると考えられ,腸内細菌はNAD代謝研究における新たな重要因子として位置づけられつつある.

そこで本稿では,著者らが明らかにしてきた腸内細菌を介したNAD前駆体代謝の知見を概説するとともに,これまでに報告されてきた腸内細菌とNAD代謝との関係について整理し,その生理的・病態的意義を紹介する.

2. NAD代謝物の分類と基本的な合成経路

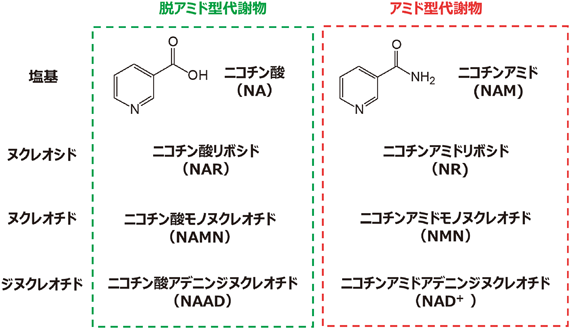
NAD関連代謝物は,その分子構造中にニコチン酸(NA)とNAMのいずれを含むかによって,脱アミド型代謝物とアミド型代謝物に大別される(図1).重要な点として,ヒトを含む哺乳類はNAMをNAへと変換するための酵素を有しておらず,この構造的差異に基づく二つの代謝物群は,生体内では原則として相互に変換されない.したがって,NAおよびNAMを起点とするNAD合成経路は,基本的に異なる代謝経路として理解されている.

Journal of Japanese Biochemical Society 98(2): 274-284 (2026)

図1 NAD代謝物の分類

NAを構造中に含むものを脱アミド型の代謝物,NAMを含むものをアミド型の代謝物に分類することができる.

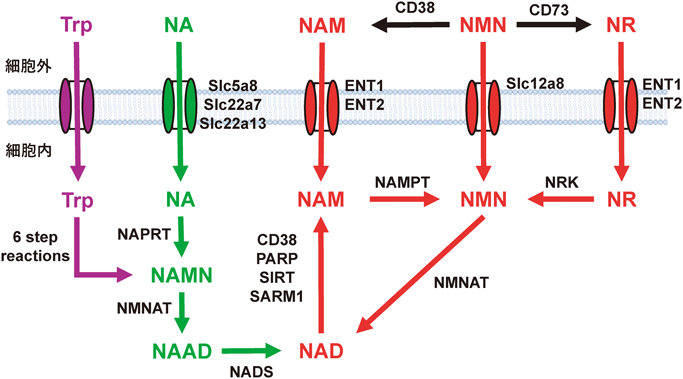
哺乳類におけるNAD合成は,利用される前駆体に応じて,de novo経路,Preiss–Handler経路,サルベージ経路の三つに分類される(図2).必須アミノ酸であるトリプトファンはde novo経路の起点として用いられ,複数の酵素反応と非酵素的変換を経てキノリン酸へと変換された後,ニコチン酸モノヌクレオチド(NAMN)を生成する.一方,Preiss–Handler経路では,NAがnicotinic acid phosphoribosyltransferase(NAPRT)によって直接NAMNへと変換される.このように,de novo経路とPreiss–Handler経路はいずれも脱アミド型前駆体を基盤とし,NAMNを共通の中間代謝物として利用する.NAMNはnicotinamide mononucleotide adenylyltransferase(NMNAT)によりニコチン酸アデニンジヌクレオチド(NAAD)へと変換され,続いてNAD synthetase(NADS)によるグルタミン依存的アミド化反応を経てNADが合成される.このNADSによる反応は,ヒトにおいて脱アミド型の代謝物とアミド型代謝物をつなぐ唯一の反応であると考えられている.

Journal of Japanese Biochemical Society 98(2): 274-284 (2026)

図2 基本的なNAD代謝の概略

脱アミド型の代謝物からなる経路とアミド型の代謝物からなる経路は細胞内ではそれぞれ独立している.紫:de novo経路と関連する代謝物,青:Preiss-Handler経路と関連する代謝物,赤:サルベージ経路と関連する代謝物.

アミド型前駆体を基盤とするサルベージ経路は,多くの哺乳類組織において主要なNAD供給経路として機能している.この経路では,NAMがnicotinamide phosphoribosyltransferase(NAMPT)によってニコチンアミドモノヌクレオチド(NMN)へと変換され,続くNMNATの反応によってNADが合成される.NRもまた,アミド型前駆体としてサルベージ経路に合流する.NRはnicotinamide riboside kinase(NRK)によりNMNへと変換され,NAD合成に利用される.

NAD前駆体の細胞内取り込みには複数の輸送体が関与する.NRはequilibrative nucleoside transporter(ENT)ファミリーを介して取り込まれることが知られており,近年ではNAM自体もENTを介して輸送されうることが報告されている13).一方,NMNについてはSlc12a8が輸送体候補として同定されているが,細胞外で脱リン酸化されNRとして取り込まれる経路も併存することから,前駆体輸送は組織や生理状態に応じて柔軟に制御されていると考えられる14, 15).

3. 腸内細菌を介したNAD代謝の概説

前節で示した一般的なNAD合成経路の機能は,主に培養細胞を用いた解析により確認されてきたが,脱アミド型代謝経路とアミド型代謝経路の独立性は,腸管という微生物が存在する環境においては必ずしも維持されていない.

腸内細菌が宿主NAD代謝に与える影響を明確に示した代表的研究として,Shatsらは,細菌が有するnicotinamidase(PncA)活性により,NAMがNAへと脱アミド化されることで,宿主細胞における脱アミド型NAD合成経路が利用されることを報告した12).この研究では,培養細胞においてNAMPT阻害剤FK866でサルベージ経路を阻害した際に,共培養したマイコプラズマや細菌由来のNAが宿主のNAD合成を代替的に支えることが見いだされた.さらに,抗生物質処理や無菌マウスを用いた解析により,経口投与されたNAMやNRによるNAD補充効果の大部分が,腸内細菌依存的な脱アミド化経路に由来することが示されている.

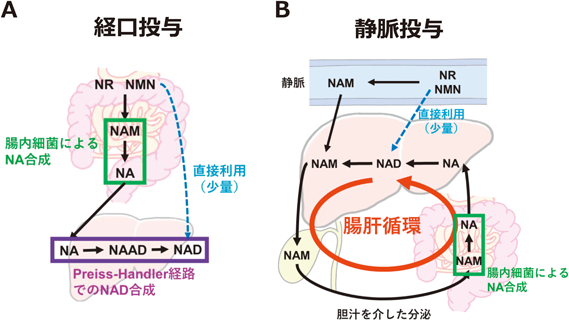
この知見は,従来アミド型前駆体として理解されてきたNRやNMNのin vivo代謝像を大きく修正するものである.実際,我々は経口投与されたNRの代謝経路を詳細に解析し,NRが一度NAMへと分解された後,腸内細菌によってNAへと脱アミド化され,最終的に肝臓でPreiss–Handler経路を介してNADに再合成される経路が存在することを明らかにしている16).この過程には,小腸上皮に高発現するBST1によるNRの加水分解が関与しており,さらにBST1はNRのグリコシダーゼ活性に加え,NRとNAR間の塩基交換反応を担うことで,アミド型と脱アミド型経路の流れを調節していることが明らかとなった.実際,同位体標識したNRを用いた解析では,NRとして直接宿主のNAD合成に利用される割合はきわめて低いことが複数の研究で確認されている.また,腸内細菌の除去はNRによるNAD補充効果を低下させることから,NAD補充における腸内細菌の重要性が強く示唆される16–20).

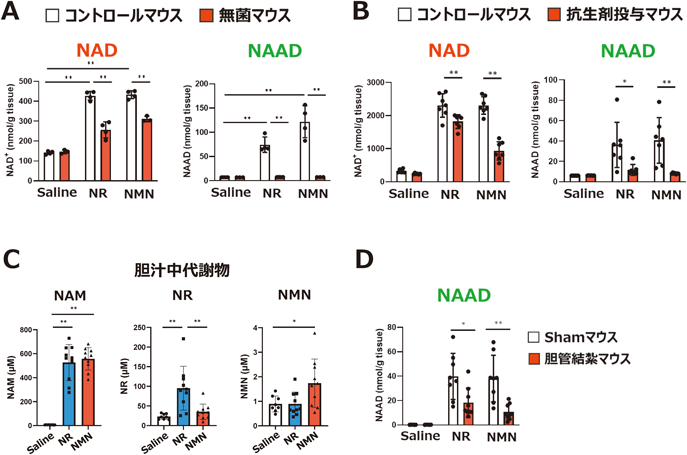
NMNに関しても同様に,腸内細菌による脱アミド化の重要性が示されている.我々は同様にNMNが腸内細菌依存的にマウスのNADを増加させることを明らかにしている(図3A, 4A)19).また,Kimらは,安定同位体で標識したNMNを用いた解析により,経口投与されたNMNが腸管内で脱リン酸化および脱アミド化を受け,NAあるいは脱アミド型中間体として宿主組織に取り込まれる経路が存在することを報告した21).さらに,我々はヒトを対象としたNMN投与試験において,250 mg/dayのNMN投与が血中のNAMN量を増加させることを確認しており,腸内細菌による脱アミド化反応はヒトにおいても機能していることが示されている22).

Journal of Japanese Biochemical Society 98(2): 274-284 (2026)

図3 NAD前駆体は投与形態によらず腸内細菌の影響を受ける

(A) NRとNMNの経口投与による肝臓のNAD量の増加は無菌マウスでは抑制された.同様にNAADの増加は顕著に抑えられた.(B)NRとNMNの静脈投与による肝臓のNAD量の増加は抗生剤による事前の腸内細菌の除去によって抑制された.同様にNAADの増加は顕著に抑えられた.(C)NRとNMNを静脈に投与すると胆汁中のNAM量が著明に増加した.(D)胆管結紮したマウスではNRとNMNの静脈投与による肝臓中のNAADの増加が抑制された.文献19より一部改変.

Journal of Japanese Biochemical Society 98(2): 274-284 (2026)

図4 NAD前駆体の利用経路の概要

(A)経口投与されたNRとNMNはその多くが腸内細菌の働きによってNAに変換され,宿主のNAD合成に利用される.(B)静脈投与されたNRとNMNは血中で速やかにNAMに分解される.NAMは,胆汁を介して腸内に排出され,腸内細菌によってNAに変換された後,宿主に再利用される,腸肝循環の系で代謝される.

さらに近年,宿主と腸内細菌の間でよりダイナミックなNAD代謝制御が行われていることが明らかになりつつある.Chellappaらは,同位体標識したNAMをマウスの静脈内に投与すると,消化管内容物中に標識されたNADが増加することを見いだした20).また我々は,静脈投与されたNRおよびNMNの大部分が速やかに血中で分解され,NAMとして胆汁中に分泌された後,腸管腔で腸内細菌によりNAへと脱アミド化されることを報告している19).実際に,腸内細菌の除去は,NRおよびNMNの静脈投与による肝臓中のNAD代謝物増加を抑制した(図3B).また,NRとNMNを静脈投与すると,胆汁中のNAM量が著明に増加する(図3C).さらに,胆管結紮によって脱アミド型の中間代謝物であるNAADの増加が抑制された(図3D).これらの結果から,NAD代謝において腸肝循環が重要な役割を担っていることが示唆される(図4B).なお,NAD前駆体を投与していない条件下においても胆汁中にはNAD代謝物が検出される.特にNRが最も豊富である点は興味深く,その生理的意義については今後の検討が必要である.

4. 腸内細菌がNAD代謝に与える影響について

前節では,腸内細菌がNAD前駆体を脱アミド化することで,宿主のNAD合成経路そのものを再編成しうることを示した.これらの知見は,腸内細菌叢の組成や機能の変化が,宿主のNAD代謝に直接的な影響を及ぼしうることを示している.実際に,dysbiosis(腸内細菌叢の異常)は腸内細菌のNA/NAM代謝の異常を来す23).そこで,本節では,疾患,食事,薬剤,環境因子などによって腸内細菌叢が変化する条件下で,宿主のNAD代謝がどのように変動するかについて概説する.

1)炎症性腸疾患における腸内細菌とNAD代謝

炎症性腸疾患において,腸内細菌叢の変化とNAD代謝異常との関連が示されている.潰瘍性大腸炎患者では,糞便中のNAM量が健常者と比較して有意に低下していることが報告されている24).特に,Sellimonasの存在量増加が糞便中NAM濃度と負に相関しており,さらに腸内細菌叢の機能予測を行ったところ,潰瘍性大腸炎患者においてnicotinamidase遺伝子の発現量の上昇が予測されたことから,腸内細菌によるNAM分解活性の亢進が,宿主側のNAM枯渇やNAD代謝異常に関与している可能性が示唆される.

マウスを用いた炎症性腸炎モデルにおいても,腸内細菌を介したNAM代謝の重要性が示唆されている.実際に,腸内細菌によるNAMからNAへの脱アミド化が,デキストラン硫酸ナトリウム(DSS)誘導性腸炎からの回復過程において重要であることが示されている25).この知見は,前節で述べた腸内細菌依存的な脱アミド型NAD合成経路が,病態生理的な意義を持つことを示すものである.

Muc2のミスセンス変異によって腸炎を自然発症するWinnieマウスの糞便では特にLactobacillusとBifidobacterium, Enterococcus, Butyricicoccusが減少する一方で,Akkermansia, Bacteroides, Prevotella, Ruminococcus, Oscillospiraが増加していた26).興味深いことに,これらの腸内細菌叢変化に伴い,Winnieマウスの脳内ではトリプトファン関連代謝物およびNAM量の低下が確認されている.

さらに,腸内細菌とNAD代謝の関係は治療反応性にも影響を及ぼす可能性が示されている.DSS誘導性腸炎マウスに抗TNF抗体インフリキシマブ(IFX)を投与すると,結腸長や病理スコアなどの腸炎指標は改善するが,Fusobacterium nucleatum併用下ではその改善が減弱することが示唆された27).さらにNAMPT阻害剤FK866を併用すると,F. nucleatum存在下でのIFX抵抗性が軽減され,結腸長や病理スコアが改善したことから,F. nucleatumがNADサルベージ関連代謝の変動を介して治療反応性に影響する可能性が示唆される.

2)神経疾患モデルにおける腸内細菌とNAD代謝の連関

神経変性疾患において,腸内細菌叢の変化と宿主NAD代謝異常との関連が明らかにされてきている.パーキンソン病モデルでは,腸内細菌叢においてdysbiosisが生じ,この変化が脳内におけるNAD合成酵素Nmnat2の発現低下と関連することで,神経障害の進展を促進する可能性が示されている28).この知見は,腸内細菌叢の変化が末梢組織にとどまらず,中枢神経系におけるNAD代謝制御にまで影響を及ぼしうることを示唆する.

筋萎縮性側索硬化症(amyotrophic lateral sclerosis:ALS)のモデルであるSOD1-G93Aトランスジェニックマウス(Sod1-Tgマウス)を用いた解析では,発症前の段階から腸内細菌叢のdysbiosisが認められ,さらに腸内細菌を除去すると神経症状が悪化することが報告されている29).腸内細菌のNAD代謝が宿主に与える影響を検討するため,腸内細菌を除去したSod1-Tgマウスに,細菌のde novo経路でのNAD合成に必須なnadAを欠損したEscherichia coliを接種したところ,野生型E. coli接種群と比較して神経筋機能が低下した.これは,腸内細菌側のNAD合成能が宿主の神経機能維持に寄与している可能性を示す結果である.

さらに,Akkermansia muciniphila(AM)の投与により本マウスの運動機能が改善し,血中および脳脊髄液中のNAM濃度が上昇したことが報告されている.NAMの直接投与によっても症状が改善したことから,AMは腸内環境を介して宿主のNAD代謝を調節し,ALS病態を改善する可能性が示唆される.加えて,ヒトALS患者においても腸内細菌叢の組成が健常者と異なること,ならびに血中および脳脊髄液中のNAM濃度が低下していることが報告されており,腸内細菌–NAD代謝–神経機能の連関はヒトにおいても成立する可能性がある.

3)自閉スペクトラム症における糞便微生物移植とNAD代謝

7歳から16歳の消化器症状を有する自閉スペクトラム症(autism spectrum disorder:ASD)患者に対して糞便微生物移植(fecal microbiota transplantation:FMT)を行った試験では,消化器症状の改善とともにASD関連の指標の改善が認められている30, 31).これらの患者は健常者と比較して腸内細菌多様性が低下していたが,FMT治療後には多様性がドナーのものに近づいていた.

続く代謝解析試験において,血漿中の代謝物の変化を確認したところ,ASD患者で低下していたNR濃度が,FMT後に回復することが示された32).さらに,糞便中代謝物の解析からトリプトファン代謝関連物質の変動が確認されており,腸内細菌によるトリプトファン代謝の変化を介して,宿主のNAD代謝が影響を受けている可能性が示唆される.これらの結果は,腸内細菌叢の再構築によってNAD代謝の改善が起こることを示す,ヒトにおける重要な例である.

4)食事介入による腸内細菌変化と肝臓NAD代謝

高脂肪食は腸内細菌叢のdysbiosisを誘導し,肝臓におけるNAD代謝にも影響を及ぼす.実際,高脂肪食により肝臓中のNAMおよびその代謝産物である1-メチルニコチンアミド(1-MNA),4-ピリドン-3-カルボキサミド(4PY)が増加することが報告されている33).これらの変化は時間制限食(time-restricted feeding:TRF)の適用によって抑制され,さらにTRF群由来のFMTによって同様の改善効果が再現された.この結果は,食事パターンの変化が腸内細菌叢を介して肝臓のNAM代謝を制御している可能性を示しており,腸内細菌が肝臓NAD代謝の調節因子として機能することを支持する知見である.

5)プロバイオティクス・ポストバイオティクスとNAD代謝

プロバイオティクスによる腸内環境の改変も,宿主NAD代謝に影響を及ぼしうる.サルコペニア患者を対象とした解析では,健常高齢者と比較してBifidobacterium adolescentisの存在量が低下しており,同菌の存在量の低下は骨格筋量および筋機能の低下と有意な相関を示した34).そこで,高齢マウスにB. adolescentisを5週間投与したところ,骨格筋中のNAD量が増加し,加齢に伴う筋量および筋機能低下が改善された.この際,糞便中のNA量が増加していたことから,B. adolescentisによるナイアシン供給がNAD増加に寄与している可能性が示唆されている.

虚血再灌流によるマウス腎不全モデルを解析した結果,腎臓中のNA, NAM, NAAD, NADが減少し,NAの代謝産物であるニコチン尿酸が増加する35).一方で,Lactobacillus casei Zhang(LcZ)を投与すると腎臓中のNADとNAADが増加し,腎障害が改善される.この研究ではNAMの投与による腎障害の改善も示されており,腸内細菌によるNAD代謝の改善が腎保護に寄与している可能性が示唆されている.しかしながら,LcZによって実際に宿主のNAD合成が活性化されたのか,あるいは短鎖脂肪酸などを介した経路による障害改善の結果NAD代謝が改善されたのかといった点については明らかにされておらず,詳細な解析が必要である.

アンピシリンでdysbiosisを誘導したマウスでは,Staphylococcusが増加するが,この増加はLactobacillusの3菌株混合剤(L. rhamnosus GMNL-74, L. acidophilus GMNL-185, L. plantarum GMNL-141)を投与することによって抑制された36).また,RuminococcusやLactobacillusはアンピシリン投与で減少するが,Lactobacillusの3菌株混合剤の投与によって回復する.この変化は腸内細菌叢におけるナイアシン代謝関連遺伝子の発現変動とも一致しており,Lactobacillusが腸内細菌全体のナイアシン代謝能を調節する可能性が示唆される.

さらに,ホエイタンパク誘導食物アレルギーモデルでは,Lactiplantibacillus plantarum DPUL F232の生菌および死菌の投与により盲腸内容物中のNAMが増加し,NAMを含む複数の代謝物が免疫指標と負に相関した37).これらの結果は,プロ・ポストバイオティクスがNAD関連代謝物を介して免疫調節に関与する可能性を示している.

6)環境因子とNAD代謝

環境因子もまた,腸内細菌–NAD代謝軸に影響を与える.妊娠期マウスへのポリスチレンナノプラスチック曝露では,母体腸内のLactobacillusが減少し,胎盤中のNAMおよびNADが低下した.さらに,曝露マウス由来糞便を移植したマウスの胎盤においても同様の変化が再現されたことから,腸内細菌叢の変化を介したNAM代謝異常が胎盤機能に影響を及ぼす可能性が示唆されている38).

ロテノン曝露ラットにおいて腸内細菌叢の撹乱とNA/NAM代謝異常がみられる39).これらの結果は,腸内細菌叢の恒常性が宿主のNAD関連代謝を維持する上で重要であることを示している.

以上のように,疾患,食事,薬剤,環境因子などにより腸内細菌叢が変化する条件下では,宿主のNAD代謝が多様な臓器において変動しうることが明らかにされつつある(表1).また,いくつかの研究においては,腸内細菌叢の変化とNAD関連代謝物量の変動,あるいはNAD依存的な生理機能の変化との間に関連が認められている.

表1 腸内細菌の変化がNAD代謝に与える影響
対象主な腸内細菌の変化NAD代謝への影響文献
放射線性腸炎ラットへのFMTBlautia,Romboutsia,Clostridium↑糞便中NAの増加23
潰瘍性大腸炎患者Sellimonas↑糞便中NAMの減少24
DSS誘導性腸炎マウスへのC. tropicalis投与—NAMの脱アミド化促進25
腸炎自然発症マウスLactobacillus,Bifidobacterium,Enterococcus,Butyricicoccus↓
Akkermansia,Bacteroides,Prevotella,Ruminococcus,Oscillospira↑
脳のトリプトファン関連代謝物およびNAM量減少26
パーキンソン病患者Firmicutes,Proteobacteria↓
Verrucomicrobia↑
脳のNMNAT2発現低下28
パーキンソン病モデルラットへのFMT—脳のNMNAT2の発現の回復28
ALSモデルマウスへのAM投与—血中,脳脊髄液中のNAMの増加29
ASD患者へのFMTBifidobacterium,Prevotella↑血漿中NRの増加30–32
高脂肪食負荷マウスへのTRFLactobacillus iners,etc↓
Bacteroidaceae bacterium,etc↑
肝臓中NAM, 1-MNA, 4PYの減少33
高齢マウスへのB. adolescentis投与—骨格筋のNAD増加34
糞便中NA増加腎不全モデルマウスへのL. casei Zhang投与—腎臓のNAD, NAAD増加35
食物アレルギーモデルラットへのLactiplantibacillus plantarum投与—盲腸内容物中のNAM増加37
マウスへのポリスチレンナノプラスチック曝露Lactobacillus↓胎盤中NAM, NAD減少38

一方で,腸内細菌叢の変化がどのような分子機構を介して宿主のNAD代謝に影響を及ぼしているのかについては,未解明な点が多く残されている.すなわち,観察されるNAD代謝の変化が,腸内細菌によるNAD前駆体の直接的な供給や変換に起因するのか,あるいは病態の変化や短鎖脂肪酸などを介した代謝変化に起因する二次的な現象なのかについては,多くの研究で明らかにされておらず,今後より詳細な解析が求められる.

5. NAD前駆体が腸内細菌に与える影響について

前節では,腸内細菌叢の変化が宿主のNAD代謝に影響を及ぼしうることを概説した.一方で,NAD前駆体そのものが腸内細菌叢の構成や機能に与える影響についても,近年多くの知見が蓄積してきている.本節では,NAD前駆体が,投与条件に応じて腸内細菌叢をどのように変化させるかを概説する.

1)ナイアシンおよびNAMが腸内細菌に与える影響

食事由来ナイアシンの摂取量は,腸内細菌叢に対して明確な用量依存的影響を及ぼすことが示されている.子ブタに対して2000 mg/kgの酪酸と0~320 mg/kgのナイアシンを含む飼料を給餌した試験では,低用量ナイアシン摂取時にはナイアシンの摂取量とCollinsellaなどビタミン代謝関連菌との正の相関が認められた一方,高用量では腸内細菌のα多様性(種の豊富さ)が低下し,Actinobacteria系統の菌が優勢となるなど偏りが生じる40).

NAMおよびその代謝産物も,腸内細菌叢を介した作用を示す.NAMはDSS誘導性腸炎モデルにおいて炎症を抑制し,OdoribacterとBifidobacterium, Flexispiraを増加させるとともに,DSSにより低下したバレリン酸量を回復させる41).また,NAMは,細菌間の代謝的クロスフィーディングを介して腸内細菌叢全体の構造や機能に影響を及ぼす可能性が示唆されている42).

外因性のNAD前駆体投与に加え,宿主側のNAM代謝フラックスの操作が腸内細菌叢に影響を及ぼす可能性も示されている.食餌誘導性肥満マウスを用いた研究では,カロリー制限食とNNMT(nicotinamide N-methyltransferase)阻害を併用することで,Lactobacillusの増加やErysipelatoclostridiumの減少などが確認された43).

さらに,NNMTの主要代謝産物である1-メチルニコチンアミド(1-MNA)は,糖尿病モデルマウスにおいて糖代謝を改善するが,この効果は抗生物質投与によって消失することから,腸内細菌依存的な効果であると考えられる44).実際に,1-MNAの投与により主に増加する属はBlautiaであり,Blautiaの経口投与により1-MNA同様高血糖が改善されることが確認されている.また,ラット壊死性腸炎(necrotizing enterocolitis:NEC)モデルにおいても1-MNA投与は生存率を改善し,NECで増加したAcinetobacter, Escherichia–Shigellaを減少させた45).

2)NMNが腸内細菌に与える影響

NMNについても,腸内細菌叢に対する影響が複数の動物モデルで検討されている.DSS誘導性大腸炎モデルでは,NMN投与により血中NAD量が上昇し,腸管粘膜バリアの修復および炎症抑制が認められた.また,Firmicutes, Akkermansia, Lactobacillusが増加し,Bacteroidetesが減少することで,DSSによる腸内細菌のdysbiosisが改善された46).

一方で,NMNの腸内細菌叢への影響は投与条件に大きく依存することがわかっている.非近交系であるKunmingマウスを用いたTRFとNMN併用試験では,TRF単独でも持久力や筋力の改善が認められたが,NMNを併用することでこれらの効果は用量依存的に増強された47).腸内細菌叢解析においても,TRF単独でα多様性が増加したのに対し,NMN併用により多様性はさらに増加し,Anaerotignum, Roseburia, Lachnoclostridium, Akkermansiaなどの増加が確認された.これらの菌は短鎖脂肪酸産生や腸管バリア機能の維持に関与することが知られており,NMNが宿主のNAD源になるだけでなく腸内細菌叢を介して生理機能に寄与する可能性が示唆される.

一方で,NMNの投与量が増加した場合には,腸内細菌叢への影響が必ずしも同じ方向に増強されるわけではないことも明らかになっている.NMNを飲水中に0.1 mg/mLから0.6 mg/mLの濃度で調製し,15週間自由摂水させた試験では,高濃度NMN投与群においてα多様性の低下が認められた48).α多様性への影響が比較的小さい低濃度NMN投与群では,Ruminococcaceae_UCG-014やPrevotellaceae_NK3B31, Akkermansiaなどが増加し,Bilophilaなどの炎症関連菌が減少していた.また,これらの細菌叢変化に伴い,糞便中の胆汁酸,タウリン,ベタインなどの腸内代謝物の増加も確認されている.さらに,16か月齢のマウスに対して500 mg/LのNMNを40日間投与した試験においても,腸内細菌α多様性の低下が認められ,HelicobacterやMucispirillum, Faecalibacteriumの増加が確認された一方,低濃度NMN投与試験で増加していたAkkermansiaは本試験ではむしろ減少していた49).これらの結果から,NMNが腸内細菌叢に与える影響は投与濃度,投与期間などに強く依存することが示唆される.

3)NRが腸内細菌に与える影響

NRは精神疾患モデル,神経変性疾患モデル,代謝異常モデルの腸内細菌叢に対する影響が報告されている.アルコール誘導性うつ様症状モデルでは,NR投与により行動異常,脳内炎症性サイトカイン発現,血清BDNF量が改善されるとともに,アルコールによる腸内細菌α多様性の低下が抑制された50).また,細菌の組成もNR投与によってコントロール群に近づく.実際に,アルコール投与により減少したPrevotellaceaeはNRによって回復し,反対に増加していたVerrucomicrobiaceaeは減少していた51).さらに,FMT実験では,炎症性サイトカインやBDNFの変化がドナー由来の腸内細菌叢と一致しており,NRの効果が腸内細菌を介して発揮される可能性が示唆されている50).

代謝異常モデルにおいてNRの影響は一様ではない.高脂肪食に0.4%NRを含む飼料を24週間投与したマウスでは,Firmicutesの増加と糞便中短鎖脂肪酸量の増加が認められた52).一方,カフェテリア食を給餌したラットでは,Firmicutesが減少しBacteroidetesが増加する53).このラットに400 mg/dayのNRを投与すると,Firmicutesの存在量には影響を与えないものの,Bacteroidetesの増加が抑制された.さらに,フルクトースによるdysbiosisでは,Enterorhabdusが減少するが,NRは減少したEnterorhabdusを回復させることが報告されている54).

4)NRとNMNの神経変性疾患モデルに対する影響

アルツハイマー病モデルであるAPP/PS1トランスジェニックマウス(ADマウス)において,NRおよびNMNはいずれも腸内細菌叢に影響を与えるが,その方向性は必ずしも一致しない.12 mMに調製したNRの8週間の飲水投与は,ADマウスで増加していたBacteroidesやAkkermansiaを減少させ,ADマウスで減少していたOscillospiraやAdlercreutziaを回復させた55).また,Lactobacillusは野生型マウス,ADマウスともにNRの投与によって減少した.

一方,300 mg/kgのNMNをADマウスに16週間投与すると,LactobacillusやBacteroides, Millionellaが増加した56).これらNRとNMNの影響の差異の原因として,投与量や投与経路の違いに加え,NRが細菌のPnuCトランスポーターを介して直接的な選択圧を与える可能性や57),腸内細菌側のNAD代謝制御機構の違いが寄与する可能性が考えられる.

5)NAD前駆体がヒトの腸内細菌叢に与える影響

ヒトを対象とした研究においても,NAD前駆体と腸内細菌叢との相互作用が検討されているが,その影響は動物モデルと比較して限定的である.まず,食事由来ナイアシン摂取量と腸内細菌叢との関連を検討した研究では,ナイアシン摂取量が低い個体において腸内細菌のα多様性が低下し,Bacteroidetesの存在量が減少することが報告されている58).また,ヒトにおいてdelayed-release NAを投与した場合にはBacteroidetesが増加する一方,delayed-release NAMでは同様の変化は認められず,NAD前駆体であっても,その形態によって腸内細菌への影響が異なることが示されている.

NRについては,ヒト介入試験において宿主代謝改善効果と腸内細菌叢変化との関係が詳細に検討されている.BMI不一致の一卵性双生児を対象に,NRを250 mg/日から1000 mg/日まで漸増し,5か月間投与した試験では,NRによる骨格筋ミトコンドリア生合成および筋分化能の改善が確認された59).腸内細菌叢解析では,NR投与によってFaecalibacteriumが増加する傾向が認められたものの,FDR補正後では統計学的有意水準には至らなかった.興味深いことに,この試験では腸内細菌叢の初期状態とNRによる宿主NAD代謝応答との間に関連が見いだされている.NR投与前のFaecalibacteriumの存在量が高い個体ほど,NR投与による宿主の全血中のNAD代謝物の増加が大きくなる.一方で,NR投与後にFaecalibacteriumが増加した個体では,NAD代謝物の上昇量が小さくなる傾向が見いだされた.この結果は,NAD前駆体が腸内細菌叢を制御する一方向的な作用だけでなく,腸内細菌叢の構成がNAD前駆体の利用効率を規定する双方向的関係の存在を示唆している.

ラットとマウス,ヒトの腸内細菌へのNRの影響を比較した試験では,種間で腸内細菌叢の応答が大きく異なることが示されている57).この試験では,ラットは300 mg/kgのNRを12週間,マウスは400 mg/kgのNRを12週間,ヒトは1 gのNRを1日2回,12週間投与された.ラットではNR投与によってErysipelotrichaceaeやRuminococcaceaeが増加しており,これの菌はNRトランスポーターであるPnuCを発現することが知られている.一方,マウスにおいてはLachnospiraceaeが増加していたが,ヒトにおいてはNR投与によるα多様性とβ多様性の変化は認められず,腸内細菌の特徴的な組成変化は観察されなかった.

本節ではNAD前駆体が宿主代謝の改善にとどまらず,腸内細菌叢の構成や機能に影響を及ぼしうることを概説した.NAD前駆体はいずれも,腸内細菌叢に対して一様な影響を与えるわけではなく,その作用は投与量,投与形態,宿主の疾患,さらには腸内細菌叢の組成に強く依存していることが明らかとなっている.さらに,NAD前駆体ではないが,NAD代謝物であるNADPHが腸内細菌叢に影響を及ぼす例も報告されている60).腸管虚血再灌流モデルではFirmicutesの減少とVerrucomicrobiaおよびBacteroidetesの増加が認められるが,NADPH投与によりこれらの腸内細菌叢の異常が改善され,腸炎の病態が抑制されることが示されている.

また,動物モデルではNAD前駆体投与により腸内細菌叢の変化が比較的明瞭に観察される一方,ヒトではその影響が限定的であることも重要な点である.この傾向は,ヒトを対象としたNAD前駆体の臨床試験において,前臨床試験で報告されたほど一貫した代謝改善効果が得られていないことと関連している可能性がある.

6. おわりに

本稿では,腸内細菌と宿主NAD代謝との相互作用について,NAD前駆体の体内利用経路における腸内細菌の役割を概説したほか,腸内細菌叢の変動がNAD代謝に与える影響を紹介してきた.これらの研究により,NAD代謝は宿主細胞内で完結する代謝経路ではなく,腸内細菌を含む多主体的な代謝ネットワークとして理解すべきであることが明らかになりつつある.また,NAD前駆体の投与は腸内細菌の組成や代謝に影響を与えることから,NAD前駆体の生理作用についても腸内細菌が関与していると予想される.

しかしながら,基礎的な理解の観点からは,現時点の研究にはいくつかの本質的な不十分さが存在する.まず,多くの研究は腸内細菌叢の組成変化とNAD関連代謝物量の変動との相関を示すにとどまっていることである.この点は,腸内細菌とNAD代謝の因果関係の解釈を困難にしている主要な要因である.

また,腸内細菌側の視点も十分に整理されていない.どの細菌種・属がNAD前駆体の脱アミド化や利用に中心的な役割を担っているのか,またその代謝活性が腸内環境や宿主因子によってどのように制御されているのかについては,明らかにされていない.さらに,NAMを含むNAD代謝物が細菌間クロスフィーディングにどのように関与しているのか,すなわち,腸内細菌叢全体の代謝ネットワークにどのような影響を与えているのかについては未解明な点が多く残されている.

動物モデルで得られた知見の多くが,ヒトにおいては必ずしも再現されていない点も重要な課題である.NAD前駆体投与による腸内細菌叢変化やNAD代謝改善効果は,前臨床モデルでは明確である一方,ヒトを対象とした臨床試験では効果が限定的である.この乖離が,種差による腸内細菌叢構造の違いに起因するのか,相対的な投与量の差や遺伝的背景に起因するのか,さらなる検討が必要である.

以上のように,腸内細菌とNAD代謝の関係は,依然として多くの未解決問題を残している.今後,これらの課題を克服することによって,NAD代謝を標的とした応用研究の確固たる基盤が形成されることを期待する.
謝辞Acknowledgments

本稿は2025年度日本生化学会奨励賞受賞に際し,寄稿させていただきました.NAD代謝に関する研究について長年手厚いご指導いただきました,富山大学の中川崇教授に心より感謝申し上げます.また,研究をご支援いただきました多くの共同研究者の方々にも,感謝申し上げます.

本総説は2025年度奨励賞を受賞した.

引用文献References

1) Yaku, K., Okabe, K., & Nakagawa, T. (2018) NAD metabolism: Implications in aging and longevity. Ageing Res. Rev., 47, 1–17.

2) Iqbal, T. & Nakagawa, T. (2024) The therapeutic perspective of NAD(+) precursors in age-related diseases. Biochem. Biophys. Res. Commun., 702, 149590.

3) Imai, S., Armstrong, C.M., Kaeberlein, M., & Guarente, L. (2000) Transcriptional silencing and longevity protein Sir2 is an NAD-dependent histone deacetylase. Nature, 403, 795–800.

4) Yaku, K., Okabe, K., & Nakagawa, T. (2018) Simultaneous measurement of NAD metabolome in aged mice tissue using liquid chromatography tandem-mass spectrometry. Biomed. Chromatogr., 32, e4205.

5) Camacho-Pereira, J., Tarragó, M.G., Chini, C.C.S., Nin, V., Escande, C., Warner, G.M., Puranik, A.S., Schoon, R.A., Reid, J.M., Galina, A., et al. (2016) CD38 dictates age-related NAD decline and mitochondrial dysfunction through an SIRT3-dependent mechanism. Cell Metab., 23, 1127–1139.

6) Janssens, G.E., Grevendonk, L., Perez, R.Z., Schomakers, B.V., de Vogel-van den Bosch, J., Geurts, J.M.W., van Weeghel, M., Schrauwen, P., Houtkooper, R.H., & Hoeks, J. (2022) Healthy aging and muscle function are positively associated with NAD(+) abundance in humans. Nat. Aging, 2, 254–263.

7) Yoshino, J., Mills, K.F., Yoon, M.J., & Imai, S. (2011) Nicotinamide mononucleotide, a key NAD(+) intermediate, treats the pathophysiology of diet- and age-induced diabetes in mice. Cell Metab., 14, 528–536.

8) Cantó, C., Houtkooper, R.H., Pirinen, E., Youn, D.Y., Oosterveer, M.H., Cen, Y., Fernandez-Marcos, P.J., Yamamoto, H., Andreux, P.A., Cettour-Rose, P., et al. (2012) The NAD(+) precursor nicotinamide riboside enhances oxidative metabolism and protects against high-fat diet-induced obesity. Cell Metab., 15, 838–847.

9) Sorrentino, V., Romani, M., Mouchiroud, L., Beck, J.S., Zhang, H., D’Amico, D., Moullan, N., Potenza, F., Schmid, A.W., Rietsch, S., et al. (2017) Enhancing mitochondrial proteostasis reduces amyloid-β proteotoxicity. Nature, 552, 187–193.

10) Zhang, H., Ryu, D., Wu, Y., Gariani, K., Wang, X., Luan, P., D’Amico, D., Ropelle, E.R., Lutolf, M.P., Aebersold, R., et al. (2016) NAD+ repletion improves mitochondrial and stem cell function and enhances life span in mice. Science, 352, 1436–1443.

11) Yaku, K. & Nakagawa, T. (2023) NAD(+) precursors in human health and disease: Current status and future prospects. Antioxid. Redox Signal., 39, 1133–1149.

12) Shats, I., Williams, J.G., Liu, J., Makarov, M.V., Wu, X., Lih, F.B., Deterding, L.J., Lim, C., Xu, X., Randall, T.A., et al. (2020) Bacteria boost mammalian host NAD metabolism by engaging the deamidated biosynthesis pathway. Cell Metab., 31, 564–579.e7.

13) Chen, M., Yuan, L., Chen, B., Chang, H., Luo, J., Zhang, H., Chen, Z., Kong, J., Yi, Y., Bai, M., et al. (2025) SLC29A1 and SLC29A2 are human nicotinamide cell membrane transporters. Nat. Commun., 16, 1181.

14) Grozio, A., Mills, K.F., Yoshino, J., Bruzzone, S., Sociali, G., Tokizane, K., Lei, H.C., Cunningham, R., Sasaki, Y., Migaud, M.E., et al. (2019) Slc12a8 is a nicotinamide mononucleotide transporter. Nat. Metab., 1, 47–57.

15) Grozio, A., Sociali, G., Sturla, L., Caffa, I., Soncini, D., Salis, A., Raffaelli, N., De Flora, A., Nencioni, A., & Bruzzone, S. (2013) CD73 protein as a source of extracellular precursors for sustained NAD+ biosynthesis in FK866-treated tumor cells. J. Biol. Chem., 288, 25938–25949.

16) Yaku, K., Palikhe, S., Izumi, H., Yoshida, T., Hikosaka, K., Hayat, F., Karim, M., Iqbal, T., Nitta, Y., Sato, A., et al. (2021) BST1 regulates nicotinamide riboside metabolism via its glycohydrolase and base-exchange activities. Nat. Commun., 12, 6767.

17) Frederick, D.W., Loro, E., Liu, L., Davila, A. Jr., Chellappa, K., Silverman, I.M., Quinn, W.J. 3rd, Gosai, S.J., Tichy, E.D., Davis, J.G., et al. (2016) Loss of NAD homeostasis leads to progressive and reversible degeneration of skeletal muscle. Cell Metab., 24, 269–282.

18) Liu, L., Su, X., Quinn, W.J. 3rd, Hui, S., Krukenberg, K., Frederick, D.W., Redpath, P., Zhan, L., Chellappa, K., White, E., et al. (2018) Quantitative analysis of NAD synthesis-breakdown fluxes. Cell Metab., 27, 1067–1080.e5.

19) Yaku, K., Palikhe, S., Iqbal, T., Hayat, F., Watanabe, Y., Fujisaka, S., Izumi, H., Yoshida, T., Karim, M., Uchida, H., et al. (2025) Nicotinamide riboside and nicotinamide mononucleotide facilitate NAD(+) synthesis via enterohepatic circulation. Sci. Adv., 11, eadr1538.

20) Chellappa, K., McReynolds, M.R., Lu, W., Zeng, X., Makarov, M., Hayat, F., Mukherjee, S., Bhat, Y.R., Lingala, S.R., Shima, R.T., et al. (2022) NAD precursors cycle between host tissues and the gut microbiome. Cell Metab., 34, 1947–1959.e5.

21) Kim, L.J., Chalmers, T.J., Madawala, R., Smith, G.C., Li, C., Das, A., Poon, E.W.K., Wang, J., Tucker, S.P., Sinclair, D.A., et al. (2023) Host-microbiome interactions in nicotinamide mononucleotide (NMN) deamidation. FEBS Lett., 597, 2196–2220.

22) Okabe, K., Yaku, K., Uchida, Y., Fukamizu, Y., Sato, T., Sakurai, T., Tobe, K., & Nakagawa, T. (2022) Oral administration of nicotinamide mononucleotide is safe and efficiently increases blood nicotinamide adenine dinucleotide levels in healthy subjects. Front. Nutr., 9, 868640.

23) Ding, Q., Xue, J., Li, N., Hu, Z., & Song, J. (2025) Fecal microbiota transplantation alleviates radiation enteritis by modulating gut microbiota and metabolite profiles. Biomol. Biomed., 25, 1992–2003.

24) Aoyama, K., Yamamura, R., Katsurada, T., Shimizu, T., Takahashi, D., Kondo, E., Iwasaki, N., Tamakoshi, A., Soga, T., Fukuda, S., et al. (2025) Decreased fecal nicotinamide and increased bacterial nicotinamidase gene expression in ulcerative colitis patients. Inflamm. Bowel Dis., 31, 2815–2825.

25) Doan, H.T., Cheng, L.C., Chiu, Y.L., Cheng, Y.K., Hsu, C.C., Chen, Y.C., Lo, H.J., & Chiang, H.S. (2024) Candida tropicalis-derived vitamin B3 exerts protective effects against intestinal inflammation by promoting IL-17A/IL-22-dependent epithelial barrier function. Gut Microbes, 16, 2416922.

26) Devereaux, J., Robinson, A.M., Stavely, R., Davidson, M., Dargahi, N., Ephraim, R., Kiatos, D., Apostolopoulos, V., & Nurgali, K. (2024) Alterations in tryptophan metabolism and de novo NAD(+) biosynthesis within the microbiota-gut-brain axis in chronic intestinal inflammation. Front. Med. (Lausanne), 11, 1379335.

27) Lei, J., Lv, L., Zhong, L., Xu, F., Su, W., Chen, Y., Wu, Z., He, S., & Chen, Y. (2025) The gut microbiota affects anti-TNF responsiveness by activating the NAD(+) salvage pathway in ulcerative colitis. Adv. Sci. (Weinh.), 12, e2413128.

28) Yu, J., Meng, J., Qin, Z., Yu, Y., Liang, Y., Wang, Y., & Min, D. (2023) Dysbiosis of gut microbiota inhibits NMNAT2 to promote neurobehavioral deficits and oxidative stress response in the 6-OHDA-lesioned rat model of Parkinson’s disease. J. Neuroinflammation, 20, 117.

29) Blacher, E., Bashiardes, S., Shapiro, H., Rothschild, D., Mor, U., Dori-Bachash, M., Kleimeyer, C., Moresi, C., Harnik, Y., Zur, M., et al. (2019) Potential roles of gut microbiome and metabolites in modulating ALS in mice. Nature, 572, 474–480.

30) Kang, D.W., Adams, J.B., Gregory, A.C., Borody, T., Chittick, L., Fasano, A., Khoruts, A., Geis, E., Maldonado, J., McDonough-Means, S., et al. (2017) Microbiota transfer therapy alters gut ecosystem and improves gastrointestinal and autism symptoms: An open-label study. Microbiome, 5, 10.

31) Kang, D.W., Adams, J.B., Coleman, D.M., Pollard, E.L., Maldonado, J., McDonough-Means, S., Caporaso, J.G., & Krajmalnik-Brown, R. (2019) Long-term benefit of microbiota transfer therapy on autism symptoms and gut microbiota. Sci. Rep., 9, 5821.

32) Kang, D.W., Adams, J.B., Vargason, T., Santiago, M., Hahn, J., & Krajmalnik-Brown, R. (2020) Distinct fecal and plasma metabolites in children with autism spectrum disorders and their modulation after microbiota transfer therapy. MSphere, 5, e00314-20.

33) Feng, R., Yang, W., Feng, W., Huang, X., Cen, M., Peng, G., Wu, W., Wang, Z., Jing, Y., Long, T., et al. (2024) Time-restricted feeding ameliorates non-alcoholic fatty liver disease through modulating hepatic nicotinamide metabolism via gut microbiota remodeling. Gut Microbes, 16, 2390164.

34) Zhang, Z., Guo, Q., Yang, Z., Sun, Y., Jiang, S., He, Y., Li, J., & Zhang, J. (2025) Bifidobacterium adolescentis-derived nicotinic acid improves host skeletal muscle mitochondrial function to ameliorate sarcopenia. Cell Rep., 44, 115265.

35) Zhu, H., Cao, C., Wu, Z., Zhang, H., Sun, Z., Wang, M., Xu, H., Zhao, Z., Wang, Y., Pei, G., et al. (2021) The probiotic L. casei Zhang slows the progression of acute and chronic kidney disease. Cell Metab., 33, 1926–1942.e8.

36) Tsai, W.H., Yeh, W.L., Chou, C.H., Wu, C.L., Lai, C.H., Yeh, Y.T., Liao, C.A., & Wu, C.C. (2023) Suppressive effects of lactobacillus on depression through regulating the gut microbiota and metabolites in C57BL/6J mice induced by ampicillin. Biomedicines, 11, 1068.

37) Feng, L., Guo, Z., Yao, W., Mu, G., & Zhu, X. (2024) Metagenomics and untargeted metabolomics analysis revealed the probiotic and postbiotic derived from lactiplantibacillus plantarum DPUL F232 alleviate whey protein-induced food allergy by reshaping gut microbiota and regulating key metabolites. J. Agric. Food Chem., 72, 25436–25448.

38) He, Y., Li, Q., Sun, Q., Li, H., Yu, T., Chen, M., Zhang, G., Zhang, B., Wang, W., & Ju, S. (2025) Gut microbiota contributes to polystyrene nanoplastics-induced fetal growth restriction by disturbing placental nicotinamide metabolism. J. Nanobiotechnology, 23, 561.

39) Sai, Y., Ge, W., Zhong, L., Zhang, Q., Xiao, J., Shan, Y., Ye, W., Liu, H., Liu, S., Ye, F., et al. (2025) The role of the gut microbiota and the nicotinate/nicotinamide pathway in rotenone-induced neurotoxicity. Curr. Res. Toxicol., 8, 100212.

40) Zhen, R., Liu, C., Wei, C., Luo, Y., Hu, X., Liu, G., Yi, H., & Huang, Y. (2022) Effect of different dosages of sodium butyrate and niacin on growth, faecal microbiota and Vitamin B metabolism in weaned piglets. J. Appl. Microbiol., 132, 4466–4475.

41) Kang, K., Sun, Y., Pan, D., Chang, B., & Sang, L.X. (2021) Nicotinamide ameliorates dextran sulfate sodium-induced chronic colitis in mice through its anti-inflammatory properties and modulates the gut microbiota. J. Immunol. Res., 2021, 5084713.

42) Zhang, S., Nie, Q., Sun, Y., Zuo, S., Chen, C., Li, S., Yang, J., Hu, J., Zhou, X., Yu, Y., et al. (2024) Bacteroides uniformis degrades β-glucan to promote Lactobacillus johnsonii improving indole-3-lactic acid levels in alleviating colitis. Microbiome, 12, 177.

43) Dimet-Wiley, A., Wu, Q., Wiley, J.T., Eswar, A., Neelakantan, H., Savidge, T., & Watowich, S. (2022) Reduced calorie diet combined with NNMT inhibition establishes a distinct microbiome in DIO mice. Sci. Rep., 12, 484.

44) Zhang, J., Chen, Y., Li, L., Liu, R., & Li, P. (2024) MNAM enhances Blautia abundance and modulates Th17/Treg balance to alleviate diabetes in T2DM mice. Biochem. Pharmacol., 230, 116593.

45) Hou, L., Du, J., Li, J., Luo, Q., & Kang, Q. (2025) 1-methylnicotinamide attenuated inflammation and regulated flora in Necrotizing enterocolitis. PLoS One, 20, e0324068.

46) Huang, P., Wang, X., Wang, S., Wu, Z., Zhou, Z., Shao, G., Ren, C., Kuang, M., Zhou, Y., Jiang, A., et al. (2022) Treatment of inflammatory bowel disease: Potential effect of NMN on intestinal barrier and gut microbiota. Curr. Res. Food Sci., 5, 1403–1411.

47) Shi, J., Zhuang, T., Li, W., Wu, X., Wang, J., Lyu, R., Chen, J., & Liu, C. (2025) Effects of time-restricted fasting-nicotinamide mononucleotide combination on exercise capacity via mitochondrial activation and gut microbiota modulation. Nutrients, 17, 1467.

48) Huang, P., Jiang, A., Wang, X., Zhou, Y., Tang, W., Ren, C., Qian, X., Zhou, Z., & Gong, A. (2021) NMN maintains intestinal homeostasis by regulating the gut microbiota. Front. Nutr., 8, 714604.

49) Niu, K.M., Bao, T., Gao, L., Ru, M., Li, Y., Jiang, L., Ye, C., Wang, S., & Wu, X. (2021) The impacts of short-term NMN supplementation on serum metabolism, fecal microbiota, and telomere length in pre-aging phase. Front. Nutr., 8, 756243.

50) Jiang, Y., Liu, Y., Gao, M., Xue, M., Wang, Z., & Liang, H. (2020) Nicotinamide riboside alleviates alcohol-induced depression-like behaviours in C57BL/6J mice by altering the intestinal microbiota associated with microglial activation and BDNF expression. Food Funct., 11, 378–391.

51) Yu, X., Xue, M., Liu, Y., Zhou, Z., Jiang, Y., Sun, T., & Liang, H. (2021) Effect of nicotinamide riboside on lipid metabolism and gut microflora-bile acid axis in alcohol-exposed mice. Food Sci. Nutr., 9, 429–440.

52) Lozada-Fernández, V.V., deLeon, O., Kellogg, S.L., Saravia, F.L., Hadiono, M.A., Atkinson, S.N., Grobe, J.L., & Kirby, J.R. (2022) Nicotinamide riboside-conditioned microbiota deflects high-fat diet-induced weight gain in mice. mSystems, 7, e0023021.

53) Longo, L., de Castro, J.M., Keingeski, M.B., Rampelotto, P.H., Stein, D.J., Guerreiro, G.T.S., de Souza, V.E.G., Cerski, C.T.S., Uribe-Cruz, C., Torres, I.L.S., et al. (2023) Nicotinamide riboside and dietary restriction effects on gut microbiota and liver inflammatory and morphologic markers in cafeteria diet-induced obesity in rats. Nutrition, 110, 112019.

54) Zhang, H., Zhao, X., Zhang, L., Sun, D., Ma, Y., Bai, Y., Bai, X., Liang, X., & Liang, H. (2024) Nicotinamide riboside ameliorates fructose-induced lipid metabolism disorders in mice by activating browning of WAT, and may be also related to the regulation of gut microbiota. Nutrients, 16, 3920.

55) Chu, X., Hou, Y., Meng, Q., Croteau, D.L., Wei, Y., De, S., Becker, K.G., & Bohr, V.A. (2022) Nicotinamide adenine dinucleotide supplementation drives gut microbiota variation in Alzheimer’s mouse model. Front. Aging Neurosci., 14, 993615.

56) Zhao, X., Kong, M., Wang, Y., Mao, Y., Xu, H., He, W., He, Y., & Gu, J. (2023) Nicotinamide mononucleotide improves the Alzheimer’s disease by regulating intestinal microbiota. Biochem. Biophys. Res. Commun., 670, 27–35.

57) Peluso, A.A., Lundgaard, A.T., Babaei, P., Mousovich-Neto, F., Rocha, A.L., Damgaard, M.V., Bak, E.G., Gnanasekaran, T., Dollerup, O.L., Trammell, S.A.J., et al. (2023) Oral supplementation of nicotinamide riboside alters intestinal microbial composition in rats and mice, but not humans. NPJ Aging, 9, 7.

58) Fangmann, D., Theismann, E.M., Türk, K., Schulte, D.M., Relling, I., Hartmann, K., Keppler, J.K., Knipp, J.R., Rehman, A., Heinsen, F.A., et al. (2018) Targeted microbiome intervention by microencapsulated delayed-release niacin beneficially affects insulin sensitivity in humans. Diabetes Care, 41, 398–405.

59) Lapatto, H.A.K., Kuusela, M., Heikkinen, A., Muniandy, M., van der Kolk, B.W., Gopalakrishnan, S., Pöllänen, N., Sandvik, M., Schmidt, M.S., Heinonen, S., et al. (2023) Nicotinamide riboside improves muscle mitochondrial biogenesis, satellite cell differentiation, and gut microbiota in a twin study. Sci. Adv., 9, eadd5163.

60) Chen, S.Y., Xu, H., Qin, Y., He, T.Q., Shi, R.R., Xing, Y.R., Xu, J., Cong, R.C., Wang, M.R., Yang, J.S., et al. (2024) Nicotinamide adenine dinucleotide phosphate alleviates intestinal ischemia/reperfusion injury via Nrf2/HO-1 pathway. Int. Immunopharmacol., 143, 113478.

著者紹介Author Profile

夜久 圭介(やく けいすけ)

富山大学学術研究部医学系分子医科薬理学講座 准教授.博士(生活科学).

略歴

1987年京都府生まれ.2009年大阪市立大学生活科学部卒業.14年同大学院生活科学研究科後期博士課程修了.14~15年アイオワ大学.15年より富山大学.25年より現職.

研究テーマと抱負

NAD代謝に関する基礎研究.生化学反応の中心的な役割を担うNADの新たな側面を調べることで,医療・産業分野への応用が可能な興味深い発見をしたいと考えています.

ウェブサイト

http://www.med.u-toyama.ac.jp/pharma/

趣味

運動,登山,楽器演奏(ギター,ベース),TRPG.

This page was created on 2026-03-12T14:26:50.212+09:00
This page was last modified on 2026-04-17T16:53:38.000+09:00


このサイトは(株)国際文献社によって運用されています。