Online ISSN: 2189-0544 Print ISSN: 0037-1017
公益社団法人日本生化学会 The Japanese Biochemical Society
Journal of Japanese Biochemical Society 98(2): 312-315 (2026)
doi:10.14952/SEIKAGAKU.2026.980312

みにれびゅうMini Review

細胞膜損傷による細胞老化—生体内のメカニカルストレスによる加齢性疾患を説明する新たな視点Plasma membrane damage-dependent senescence: A new perspective on mechanical stress–associated age-related disorders

沖縄科学技術大学院大学Okinawa Institute of Science and Technology Graduate University ◇ 〒904–0495 沖縄県国頭郡恩納村字谷茶1919–1 ◇ 1919–1 Tancha, Onna Village, Kunigami, Okinawa 904–0495, Japan

発行日:2026年4月25日Published: April 25, 2026
HTMLPDFEPUB3

1. 老化細胞には多様なサブタイプが存在する

細胞老化はさまざまな細胞内外ストレスにより誘導される不可逆的な細胞周期停止状態である.古典的には,テロメア短縮に起因する分裂老化,DNA損傷応答依存的老化,がん遺伝子活性化による老化などが知られていた1–3).近年,ミトコンドリア機能不全による老化や,薬物・放射線治療に伴う治療誘導性老化など,トリガーの違いに基づく多様な老化細胞サブタイプが報告されている4).これらの老化細胞は,p53/p21経路やp16/Rb経路を介した細胞周期停止,SA-β-gal活性の上昇,Lamin B1の減少など,共通の古典的老化マーカーを呈する一方で,転写プロファイルや細胞老化随伴分泌現象(senescence-associated secretory phenotype:SASP)の組成,およびその時間的推移において顕著な多様性を示す.このようなことから,「老化細胞」は「がん細胞」と同様に,多様な遺伝子発現プロファイルを有する細胞の総称であって,個別の老化細胞サブタイプについて理解を深めるべき時が来ていると考えられる.

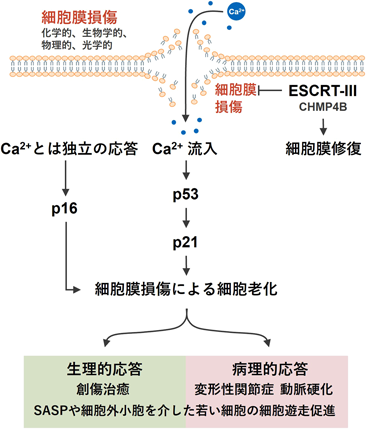
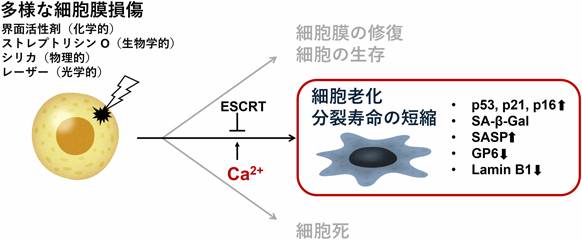
我々はこのような老化細胞サブタイプの一つとして,細胞膜損傷による老化細胞を見いだし,報告した5).細胞膜は厚さ5~10 nm程度の脆弱な構造であり,筋収縮や細胞遊走といったメカニカルストレス,活性酸素種,細菌が産生する孔形成毒素など,日常的に多様な物理的・化学的・生物学的要因による損傷を受けうる6, 7).これまで,細胞膜に損傷を受けた細胞は,細胞膜修復に成功し生存するか,修復に失敗し細胞死に至るか,の二つが想定されてきた.我々はこれら二つに加えて,細胞膜修復後に細胞老化へと移行する「第三の運命」が存在することを見いだした(図1).

Journal of Japanese Biochemical Society 98(2): 312-315 (2026)

図1 細胞膜損傷を受けた細胞の第三の運命・細胞老化

細胞膜損傷による老化細胞は一般的な老化細胞の表現型をすべて呈するが,SASPをコードする遺伝子など一部遺伝子の発現パターンがDNA損傷による老化細胞やテロメア短縮による老化細胞とは顕著に異なる.

2. 細胞膜損傷は細胞老化を誘導する

出芽酵母を用いた解析により,細胞膜損傷が分裂寿命の短縮を導き,細胞膜修復応答関連因子の過剰発現が分裂寿命の延長につながることが明らかになった5).そこで,ヒト培養細胞においても細胞膜損傷が分裂寿命の短縮を導くかを検討する目的で,WI-38やBJなどの正常ヒト線維芽細胞を用いて解析を行った.培地に希薄な界面活性剤(SDS)を継続的に添加し,慢性的な細胞膜損傷を与えながら継代すると,SDS濃度に依存して分裂寿命が短縮し,増殖停止後にはSA-β-gal陽性,p53, p21, p16の蓄積,Lamin B1の減少,SASP因子の発現上昇など,典型的な老化細胞の表現型が観察された5).これらの結果から,ヒト培養細胞においても出芽酵母と同様に細胞膜損傷が分裂寿命の短縮を導くことが示唆された.

しかし,長期培養下ではSDS処理による二次的影響を排除できない.そこで次に一過的な細胞膜損傷が細胞老化誘導に十分かどうかを検討した.細胞を24時間のみ希薄な(0.007~0.012%)SDSを含む培地で処理し,その後,通常の培地に戻して細胞膜修復を起こさせると,細胞増殖が恒久的に停止し,処理後6~8日にかけて老化マーカーの上昇が認められた5).同様の老化様表現型は,サポニン,シリカ(1 µm以下の鋭利なガラス片),溶血毒素ストレプトリシンO,さらには顕微鏡下での一過的かつ局所的なレーザー照射など,性質の異なる化学的・物理的・生物学的・光学的細胞膜損傷によっても誘導された(図1).以上から,細胞膜損傷は正常ヒト線維芽細胞において,刺激の種類を問わず急性の細胞老化を誘導しうると考えられる.

この細胞老化が,真に細胞膜損傷に由来するのであれば,細胞膜修復の亢進が細胞老化を抑制するはずである.この可能性を検討するため,さまざまな生物種,細胞種において細胞膜修復に寄与することが知られているESCRT-III構成因子CHMP4B8)を,細胞膜損傷処理中のみ一過的に過剰発現させた.その結果,CHMP4B高発現下では,同一のSDS処理にもかかわらず増殖停止は解除され,SA-β-gal陽性化やp53/p21/p16の誘導,IL-6やCCL2といったSASP因子の発現上昇も抑制された5).これらの結果は,細胞膜損傷が細胞老化を誘導するという我々の解釈と一致する.

3. 細胞膜損傷による細胞老化の鍵を握るCa2+–p53制御軸

次に,細胞膜損傷による細胞老化の鍵を握る分子メカニズムを検討したところ,多くの老化細胞サブタイプと同様に,細胞膜損傷による老化細胞においてもp53/p21経路が中心的な役割を果たすことが明らかになった.SDS処理後直ちにp53とp21の発現上昇がみられ,p53ノックダウンによりSA-β-gal陽性やp21増加が著しく抑制されることから,p53は細胞膜損傷による細胞老化に必須であることがわかった5).一方で,DNA損傷マーカーγH2AXやATMリン酸化は,細胞膜損傷による細胞老化の初期には顕著な上昇を示さず,ATM阻害剤もp53/p21増加を抑制しない.このことから,細胞膜損傷に起因するp53増加は,典型的なDNA損傷応答(ATM/ATR–Chk1/Chk2経路)とは独立の経路を介すると考えられる.注意すべきは,細胞膜損傷処理の直後にはDNA損傷応答は誘起されていないものの,6~8日後以降にはDNA損傷マーカーγH2AXのシグナルが検出されることである5).したがって細胞膜損傷による細胞老化においては,DNA損傷応答は初期のp53増加を制御する最上流シグナルではないと考えられる.

では,細胞膜損傷による細胞老化メカニズムにおけるp53の上流シグナルは何か.細胞膜損傷に最も早い細胞応答の一つは,細胞外からのCa2+流入であり,これはESCRT-IIIを含む細胞膜修復機構にも不可欠である.細胞膜損傷による細胞老化においてもCa2+シグナルの関与が予想され,実際,細胞膜透過性のCa2+キレート剤BAPTA-AMを用いてCa2+流入を抑制すると,細胞膜損傷による老化細胞に特徴的な増殖停止,p53/p21誘導,SA-β-gal陽性化,IL-6発現上昇の多くが抑制された5).一方,p16の誘導とCCL2発現上昇にはBAPTA-AMがほとんど影響しなかったことから,細胞膜損傷による細胞老化にはCa2+依存的経路と非依存的経路の少なくとも二つの経路が存在すると考えられる(図2).

Journal of Japanese Biochemical Society 98(2): 312-315 (2026)

図2 細胞膜損傷による老化細胞の分子メカニズム

細胞膜損傷による老化細胞にはCa2+依存的な経路と非依存的な経路の少なくとも二つが寄与する.

さらに,細胞膜損傷を伴わずにCa2+流入を誘導する条件として,高濃度KClによる膜電位変化を利用した実験では,細胞は細胞膜損傷処理の場合と同様の老化表現型を示した5).これらの結果を総合すると,Ca2+流入は細胞膜損傷による細胞老化の誘導に必要であり,またCa2+–p53軸がDNA損傷とは異なる老化誘導経路をなしていると結論づけられる.興味深いことに,細胞膜損傷による細胞老化ではp53のSer33残基特異的リン酸化が顕著である一方,DNA損傷応答で典型的に観察されるSer15リン酸化は検出されない5).このことは,Ca2+依存的にp53-Ser33を修飾する上流キナーゼが存在することを示唆しており,細胞膜損傷による細胞老化特異的なp53制御経路として今後の重要な解析対象である.

トランスクリプトーム解析の観点からみると,細胞膜損傷による老化細胞は老化後期(6~16日目)には,DNA損傷による老化細胞や分裂老化細胞と同様に,細胞老化関連経路の活性化と細胞周期関連経路の抑制を示し,古典的老化細胞と高い共通性を有する5).一方,老化初期(0~4日目)の遺伝子発現パターンはDNA損傷による老化細胞とは大きく異なり,特に1~2日目には正常細胞と近い状態を保ちつつ,コラーゲンに関連し血栓形成に寄与することで知られるglycoprotein VI経路の抑制や創傷治癒関連経路の一過的活性化が特徴的である5).このことは,細胞膜損傷による細胞老化では膜損傷修復や創傷応答に関わるプログラムがまず立ち上がり,その後,おそらく内部システムの破綻を経て不可逆的老化へと移行する,という二相性のダイナミクスを反映していると考えられる.

4. 細胞膜損傷による老化細胞はメカニカルストレスが寄与する加齢性疾患と深く関わる

細胞膜損傷による老化細胞は,細胞膜損傷という生体内においてきわめて頻繁に起こり得るストレスを起点とするサブタイプであり,創傷部位周辺やメカニカルストレスにさらされる組織での老化細胞を理解する鍵となる可能性が高い.実際,細胞膜損傷による老化細胞のトランスクリプトームとヒト皮膚創傷部位の細胞のmRNA発現データを比較すると,多数のパスウェイで有意な類似性がみられ,特に細胞膜損傷処理直後および老化誘導後16日後が創傷細胞に近いプロファイルを示した5).一方,DNA損傷による老化細胞のプロファイルはヒト皮膚創傷部位の細胞との類似性が低かった.さらに,培養皿上で細胞膜損傷による老化細胞と若い細胞を共培養すると,細胞膜損傷による老化細胞はSASPや細胞外小胞を介して,パラクライン的に若い細胞の遊走を促進した5).これらの結果は,細胞膜損傷による老化細胞がヒト生体内の創傷部位における老化細胞の出現メカニズムであるという理解と整合的である(図1).

細胞老化は,がん抑制や組織修復など有益な側面と,慢性炎症や加齢性疾患促進など有害な側面を併せ持つ9).セノリティクス薬(老化細胞選択的除去薬)やSASPを標的としたセノモルフィック薬が加齢関連疾患の新たな治療戦略として注目されているが,無差別な老化細胞除去には創傷治癒や組織恒常性維持といった生理的機能を損なうリスクがある.細胞膜損傷による老化細胞のように,特に創傷初期の組織リモデリングに寄与するサブタイプをどう扱うかは,今後のセノセラピー設計において重要な論点となるであろう.

細胞膜損傷による老化細胞は,皮膚など外界に近い組織だけでなく,筋肉や血管内皮,さらには免疫系の病態にも関与しうる.筋細胞は収縮に伴う反復的なメカニカルストレスにさらされており,細胞膜修復機構の破綻は筋ジストロフィーなどの病態と密接に関連する7, 10).また,全身性エリテマトーデスなどの自己免疫疾患では,細胞傷害性免疫細胞が放出するパーフォリンやグランザイムにより標的組織の細胞膜損傷が繰り返し生じる11).さらに,変形性関節症や動脈硬化など,メカニカルストレスと老化細胞の両方が寄与することが知られる病態と,細胞膜損傷による老化細胞の遺伝子発現パターンが類似することも明らかになりつつあり,メカニカルストレスによる加齢性疾患のメカニズムを細胞膜損傷による老化細胞が説明できる可能性がある.

がんの文脈では,細胞老化は一方で強力ながん抑制バリアとして働き,他方でSASPを介して腫瘍進展や治療抵抗性を促進するという二面性を持つ12, 13).細胞膜損傷による老化細胞も類似の二面性を持ち,組織の物理的傷害や細胞外マトリックスリモデリングが強い腫瘍微小環境において,増殖停止を通じて短期的には腫瘍抑制に寄与しつつ,長期的には炎症性・線維化性のSASPを介して腫瘍進展や免疫回避に関与する可能性がある.

これまでの我々の解析により,細胞膜損傷によって誘導される老化細胞と遺伝子発現パターンがよく似た細胞が,さまざまな生理的・病理的文脈において,実際に生体内に存在することが明らかになりつつあるが,これらの細胞が真に細胞膜損傷を起点として誘導された老化細胞であることの実証は,今後の重要な課題である.この課題に取り組むためには,細胞膜損傷レポーター,あるいは細胞膜損傷に依存した細胞老化のみを検出するレポーターを発現する動物モデルの確立が有用である.こうしたモデルを用いれば,組織損傷モデル,変形性関節症モデル,動脈硬化モデルなど,メカニカルストレス・細胞膜損傷が生じやすいと想定される病態において,細胞膜損傷と老化細胞蓄積との時空間的関係を単一細胞レベルで追跡することが可能となる.さらに,single-cell RNA-seq,空間トランスクリプトミクス,プロテオーム解析を統合し,SenNet14), SASP Atlas15), the Mouse aging proteomic atlas16)などの既存リソースと連携させて解析することで,老化細胞の組織特異的かつ時間依存的な多様性を高解像度でマッピングすることができる.これにより,個別化医療の概念に基づき,病態ごとに中核的な役割を担う老化細胞サブタイプを同定し,それらを選択的に標的とする治療戦略の開発へとつながることが期待される.

引用文献References

1) Di Micco, R., Krizhanovsky, V., Baker, D., & d’Adda di Fagagna, F. (2021) Cellular senescence in ageing: From mechanisms to therapeutic opportunities. Nat. Rev. Mol. Cell Biol., 22, 75–95.

2) Hayflick, L. & Moorhead, P.S. (1961) The serial cultivation of human diploid cell strains. Exp. Cell Res., 25, 585–621.

3) Hayflick, L. (1965) The limited in vitro lifetime of human diploid cell strains. Exp. Cell Res., 37, 614–636.

4) Alghamdi, E. & Kono, K. (2025) Heterogeneity of cellular senescence: Subtype-specific mechanisms and the emerging role of plasma membrane damage. Cancer Sci., 116, 3274–3285.

5) Suda, K., Moriyama, Y., Razali, N., Chiu, Y., Masukagami, Y., Nishimura, K., Barbee, H., Takase, H., Sugiyama, S., Yamazaki, Y., et al. (2024) Plasma membrane damage limits replicative lifespan in yeast and induces premature senescence in human fibroblasts. Nat. Aging, 4, 319–335.

6) McNeil, P.L. & Steinhardt, R.A. (2003) Plasma membrane disruption: Repair, prevention, adaptation. Annu. Rev. Cell Dev. Biol., 19, 697–731.

7) Dias, C. & Nylandsted, J. (2021) Plasma membrane integrity in health and disease: Significance and therapeutic potential. Cell Discov., 7, 4.

8) Hurley, J.H., Coyne, A.N., Miączyńska, M., & Stenmark, H. (2025) The expanding repertoire of ESCRT functions in cell biology and disease. Nature, 642, 877–888.

9) Herranz, N. & Gil, J. (2018) Mechanisms and functions of cellular senescence. J. Clin. Invest., 128, 1238–1246.

10) Bashir, R., Britton, S., Strachan, T., Keers, S., Vafiadaki, E., Lako, M., Richard, I., Marchand, S., Bourg, N., Argov, Z., et al. (1998) A gene related to Caenorhabditis elegans spermatogenesis factor fer-1 is mutated in limb-girdle muscular dystrophy type 2B. Nat. Genet., 20, 37–42.

11) Moschetti, L., Piantoni, S., Vizzardi, E., Sciatti, E., Riccardi, M., Franceschini, F., & Cavazzana, I. (2022) Endothelial dysfunction in systemic lupus erythematosus and systemic sclerosis: A common trigger for different microvascular diseases. Front. Med. (Lausanne), 9, 849086.

12) Takasugi, M., Yoshida, Y., & Ohtani, N. (2022) Cellular senescence and the tumour microenvironment. Mol. Oncol., 16, 3333–3351.

13) Ohtani, N. (2022) The roles and mechanisms of senescence-associated secretory phenotype (SASP): Can it be controlled by senolysis? Inflamm. Regen., 42, 11.

14) Suryadevara, V., Hudgins, A.D., Rajesh, A., Pappalardo, A., Karpova, A., Dey, A.K., Hertzel, A., Agudelo, A., Rocha, A., Soygur, B., et al. (2024) SenNet recommendations for detecting senescent cells in different tissues. Nat. Rev. Mol. Cell Biol., 25, 1001–1023.

15) Basisty, N., Kale, A., Jeon, O.H., Kuehnemann, C., Payne, T., Rao, C., Holtz, A., Shah, S., Sharma, V., Ferrucci, L., et al. (2020) A proteomic atlas of senescence-associated secretomes for aging biomarker development. PLoS Biol., 18, e3000599.

16) Takasugi, M., Nonaka, Y., Takemura, K., Yoshida, Y., Stein, F., Schwarz, J.J., Adachi, J., Satoh, J., Ito, S., Tombline, G., et al. (2024) An atlas of the aging mouse proteome reveals the features of age-related post-transcriptional dysregulation. Nat. Commun., 15, 8520.

著者紹介Author Profile

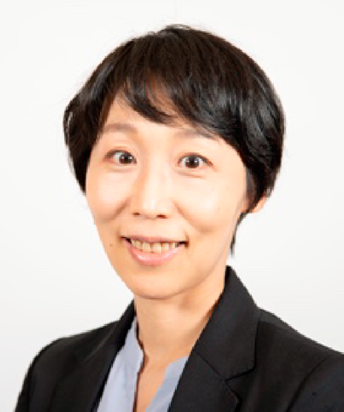
河野 恵子(こうの けいこ)

沖縄科学技術大学院大学 准教授.博士(生命科学).

略歴

2000年東京大学理学部卒業.05年同大学院新領域創成科学研究科博士課程修了.Dana-Farber Cancer Instituteポスドク,名古屋市立大学大学院医学研究科講師を経て17年からOIST准教授.

研究テーマと抱負

細胞が老化に至る分子メカニズムと,その生理学的・病態学的帰結を明らかにしたい.とりわけ,細胞膜の損傷やメカニカルストレスを起点とする細胞老化に着目し,ヒトにおける加齢性疾患の発症機構を説明することを目指している.

ウェブサイト

https://www.oist.jp/research/research-units/memu/keiko-kono

趣味

将棋,読書,バスケットボール観戦,ジョギング.

This page was created on 2026-03-17T14:11:25.406+09:00
This page was last modified on 2026-04-17T17:39:34.000+09:00


このサイトは(株)国際文献社によって運用されています。