Online ISSN: 2189-0544 Print ISSN: 0037-1017
公益社団法人日本生化学会 The Japanese Biochemical Society
Journal of Japanese Biochemical Society 98(2): 316-320 (2026)
doi:10.14952/SEIKAGAKU.2026.980316

みにれびゅうMini Review

新規単離精製法により明らかになったアストロサイトエンドフットの脳血管領域依存的な多様性Heterogeneity of perivascular astrocyte endfeet depending on vascular regions in the mouse brain revealed by a novel isolation method

神戸大学大学院医学系研究科精神医学分野病態シグナル学部門The Division of Pathogenetic Signaling, Department of Psychiatry, Kobe University, Graduate School of Medicine ◇ 〒650–0047 神戸市中央区港島南町1–5–6 神戸BTセンター ◇ 1–5–6 Minatojima-minamimachi, Chuo-ku, Kobe 650–0047, Japan

発行日:2026年4月25日Published: April 25, 2026
HTMLPDFEPUB3

1. はじめに

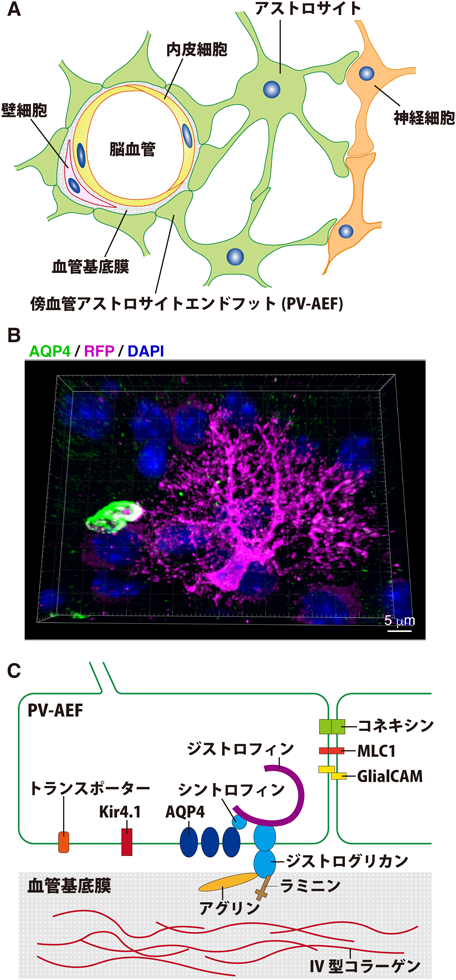
血液脳関門(blood-brain barrier:BBB)は,血液と脳実質との間において,分子や細胞の移行を厳密に制御する生体バリアである.1695年,Humphrey Ridleyが血管内に投与した物質が脳へ移行しにくいことを記載したのが,BBBに関する最初期の観察とされている.19世紀末にはPaul EhrlichおよびEdwin Goldmannによる色素投与実験から,脳血管には選択的透過性を持つバリア機能が存在することが示された1).20世紀中ごろ以降,電子顕微鏡解析や生化学・分子生物学の発展により,内皮細胞が形成するタイトジャンクションが,BBBの主要な物理的基盤であることが明らかになった.さらに,脳血管を構成する壁細胞(血管平滑筋細胞や周皮細胞),血管基底膜,そして脳血管の外側から血管表面を被覆するアストロサイトの細胞突起である傍血管アストロサイトエンドフット(perivascular astrocyte endfoot:PV-AEF)が相互に協調し,BBBの機能を支えていることが示されてきた1–4)(図1A).

Journal of Japanese Biochemical Society 98(2): 316-320 (2026)

図1 神経–血管ユニット(NVU)における傍血管アストロサイトエンドフット(PV-AEF)

(A)神経–血管ユニット(neurovascular unit:NVU)の模式図.脳血管は,内皮細胞によって内張りされ,その外側を壁細胞(血管平滑筋細胞および周皮細胞)と血管基底膜が取り囲む.アストロサイトは血管方向に一つまたは複数の細胞突起を伸ばし,傍血管アストロサイトエンドフット(perivascular astrocyte endfoot:PV-AEF)を形成する.PV-AEFは血管基底膜に接着し,脳血管の大部分を被覆することで,血管と脳実質を隔てる主要な境界領域を構成する.(B)マウス皮質におけるアストロサイトの形態.Nestin-CreERT2マウス(タモキシフェン誘導型Cre発現系)とAi9レポーターマウス(CreERT2依存的にtdTomatoを恒久的に発現)を交配し,胎生期12.5日目にタモキシフェンを投与することで,Nestin陽性前駆細胞由来のアストロサイトをスパースに標識した.PV-AEFのマーカーであるアクアポリン4(AQP4,緑),RFP(マゼンタ),DAPI(青)を示す.アストロサイトは,複雑に枝分かれした形態を示し,AQP4は血管周囲のPV-AEFに強く集積している.著者未発表データ;既報の知見と整合的な代表的な画像.(C)PV-AEFの細胞膜には,ジストロフィン,シントロフィン,ジストログリカンからなるジストロフィン関連タンパク質複合体(dystrophin-associated protein complex:DAPC)が形成される.DAPCは,水・イオン輸送に関与するアクアポリン4(AQP4)を細胞膜上に保持・安定化するとともに,ジストログリカンを介して血管基底膜と結合する.血管基底膜は,IV型コラーゲンを主体とし,ラミニンやアグリンなどから構成される細胞外基質であり,ラミニンおよびアグリンが,ジストログリカンと結合する.また,PV-AEF間にはコネキシン,MLC1,GlialCAMなどの膜タンパク質が局在し,イオン・水輸送の調節や細胞間接着に関与する.文献2の図を改変して作成.

このような脳血管とアストロサイトの連関は,脳梗塞をはじめとする多くの病態研究を通じて,その重要性が再認識され,神経細胞も含めた脳の構造・機能単位として,神経–血管ユニット(neurovascular unit:NVU)として理解されるようになった.NVUは,血流調節・代謝制御・炎症応答といった多様な生理学的・病理学的プロセスを統合する中心的な役割を担っており,脳の恒常性とレジリエンスの維持に不可欠である1–4).さらに近年,BBBは単なる静的な「バリア」ではなく,血液と脳実質との間で,状況依存的かつ選択的に物質を輸送・交換する動的なインターフェースであることが明らかになりつつある.従来の「バリア」という語が想起する遮断的な性質を超えて,より能動的な制御機構を強調する観点から,BBBを「境界(borders)」として捉え直す“blood–brain borders”という概念が提唱されている5).

本稿では,BBBおよびNVUの機能制御において重要な役割を担うPV-AEFに焦点を当て,その構造と機能に関する基礎的知見を概説するとともに,私どもが生化学的精製により明らかにした,脳血管領域依存的なPV-AEFの構造的・機能的多様性に関する研究成果を紹介する.

2. PV-AEFの構造と機能

PV-AEFは,アストロサイトの総体積の約3.5%を占める構造であり,アストロサイトから血管方向に伸びる一つまたは複数の細長い細胞突起として形成される.これらの突起は,血管基底膜に接着しており,皮質や海馬では一つのアストロサイトが平均して三つの血管領域と接着することが知られている1, 2)(図1B).動脈・細動脈から毛細血管,細静脈・静脈に至る脳内血管ネットワークの大部分は,このようなPV-AEFによって連続的に被覆されており,血管径が小さくなるほどPV-AEFのサイズも小さくなる傾向が観察される6).

PV-AEFは,BBB機能の調節,神経活動に応じた血流制御(neurovascular coupling),グルコース・脂質・アミノ酸などの代謝基質の受け渡し,さらには老廃物の排出など,多彩な機能に関与している1, 2, 4).PV-AEFを人為的に除去すると,除去数十分後から再構築されることが報告されており7),この構造が静的な被覆ではなく,動的に維持されていることが示唆されている.

電子顕微鏡解析から,PV-AEFにはミトコンドリア,粗面小胞体,小胞,微小管,グリコーゲン顆粒などが含まれることが示されている.また,一部ではグリア線維性酸性タンパク質(glial fibrillary acidic protein:GFAP)からなる中間フィラメント構造が観察される1, 2).さらに,PV-AEFにはmRNAが局所的に輸送され,その場で翻訳されることが報告されており,代謝制御・イオン恒常性維持・シグナル伝達を統合的に担う機能的コンパートメントとしての性質が明らかになりつつある8).

PV-AEFに局在する代表的な膜タンパク質として,水・イオン輸送に関与するアクアポリン4(AQP4)や内向き整流カリウムチャネル(inwardly rectifier K+ channel 4.1:Kir4.1),グルコースの輸送に関わるグルコーストランスポーター(GLUT1),さらに機械刺激や浸透圧変化に応答するTRPV4(transient receptor potential vanilloid-related channel 4)などが知られている1, 2)(図1C).AQP4は,ジストロフィン関連タンパク質複合体(dystrophin-associated protein complex:DAPC)によってPV-AEF細胞膜に局在することが知られているが,他の膜タンパク質の局在機構は,ほとんど解明されていない.さらに,DAPCを構成するジストログリカンは,血管基底膜を構成するラミニンやアグリンと結合し,PV-AEFを血管基底膜にアンカーする足場として機能することで,その構造的・機能的特性を支えている.

このように,PV-AEFはアストロサイトの高度に分極した細胞突起として,多様な機能を担っていることが明らかになってきた.しかし,PV-AEFは構造がきわめて薄く,単離精製手法が確立されていなかったため,その構成分子を包括的に解析することは困難であった.一方,近年のシングルセル解析の進展により,内皮細胞や壁細胞では,脳血管領域ごとに遺伝子発現が異なることが明らかになり,脳血管領域に応じた構造的・機能的な多様性が示されていたが9, 10),PV-AEFにおける脳血管領域依存的な構成分子の違いについては,十分に解析されていなかった2).

3. PV-AEFの単離精製法と脳血管領域依存的な多様性

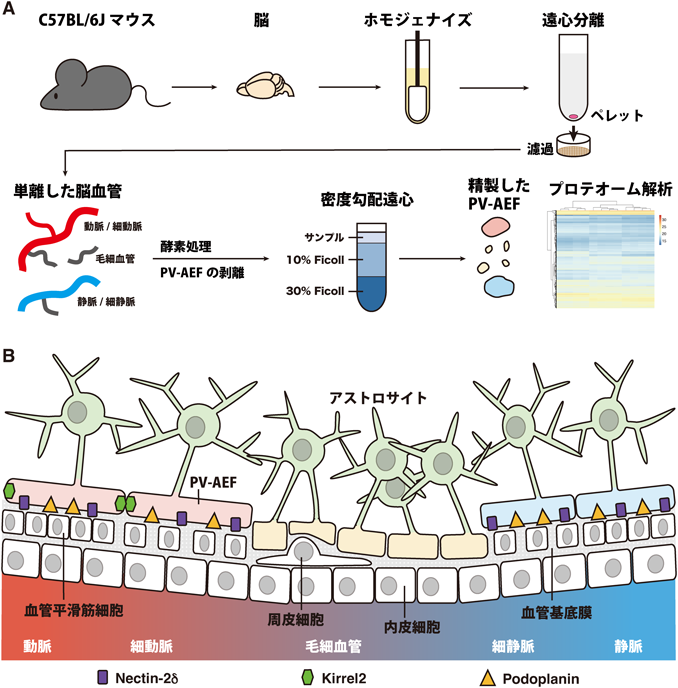
このような背景から,私どもは,PV-AEFの構成分子や脳血管領域依存性を明らかにするために,PV-AEFの生化学的な単離精製法の確立を試みた11)(図2A).まず先行研究を参考にして脳血管の単離精製を行った12, 13).摘出したマウス脳を,0.25 mmのクリアランスのPotter-Elvehjemホモジェナイザーにてホモジェナイズし,Ficoll PM400を用いた遠心分離によりミエリンを除去した後,その細胞懸濁液を100 µmおよび40 µmのフィルターメッシュで段階的に濾過し,脳血管画分を得た.さらに20 µmのフィルターメッシュを用いて再濾過することで,より高純度の脳血管画分を得た.免疫染色および走査電子顕微鏡解析の結果,この単離精製した脳血管は,内皮細胞・壁細胞・血管基底膜,そしてアストロサイトの細胞体から切り離された細胞断片であるPV-AEFが付着した状態であることがわかった.また,動脈・細動脈マーカーであるαSMA(alpha smooth muscle actin)や,血管内皮マーカーであるVWE(von Willebrand factor)の染色により,単離した脳血管画分には,動脈・細動脈・毛細血管・細静脈・静脈といった多様な血管領域が含まれることを確認した.

Journal of Japanese Biochemical Society 98(2): 316-320 (2026)

図2 PV-AEFの単離精製法と脳血管領域依存的な多様性

(A)PV-AEFの単離精製法のワークフロー.C57BL/6Jマウスから脳を摘出後,ホモジナイズし,遠心分離および濾過操作によって脳血管画分を単離精製した.得られた脳血管画分には,動脈・細動脈,毛細血管,静脈・細静脈が含まれる.これらの脳血管に基底膜分解酵素処理を行い,血管に付着したPV-AEFを剥離した後,Ficoll PM400を用いた密度勾配遠心によりPV-AEFを単離精製し,超高感度プロテオーム解析を実施した.(B)PV-AEFの脳血管領域依存的な多様性の模式図.PV-AEFは動脈・細動脈・毛細血管・細静脈・静脈といった異なる脳血管領域に接着している.血管径の大きな動脈・細動脈,細静脈・静脈では,毛細血管と比較してPV-AEFのサイズが大きい傾向を示す.細胞接着因子Nectin-2δおよびPodoplaninは主に動脈・細動脈および静脈・細静脈周囲のPV-AEFに,Kirrel2は主に動脈・細動脈周囲のPV-AEFに局在する.一方,毛細血管周囲のPV-AEFではこれらの分子の明確な局在は認められなかった.本図は現時点の知見に基づく予想図であり,Kirrel2およびPodoplaninの詳細な局在様式については今後の検討が必要である.文献11の図を改変した.

続いて,この脳血管画分から,PV-AEFを選択的に回収するための条件検討を行った.当初は,高塩濃度やEDTA処理によるPV-AEFの剥離を試みたが,1)内皮細胞や壁細胞の一部が同時に剥離し,これらの細胞とPV-AEFを分離するのが困難であったこと,2)細胞がEDTAによるダメージを受け,PV-AEFを除去した脳血管を用いた培養実験が成立しないことが明らかになった(未発表データ).そこで,基底膜成分を穏やかに分解する方法に変更した.内皮細胞や壁細胞への影響を最小限に抑えるため,Liberase DLによる酵素処理条件を低濃度かつ短時間となるように最適化した.酵素処理後,20 µmのフィルターメッシュで濾過することで,フロースルーに粗画分のPV-AEFを,フィルター側にPV-AEFを除去した脳血管を回収した.フロースルーには,AQP4陽性でDAPI陰性のPV-AEFに加え,一部DAPI陽性の細胞体が混在していた.Ficoll PM400による密度勾配遠心の結果,AQP4陽性でDAPI陰性のPV-AEFは10%および30% Ficoll PM400層の界面,すなわち1.04 g/mL以下の低密度画分に集積することが判明したため,これらの画分を回収し,PV-AEFを精製した.得られた画分を走査および透過電子顕微鏡にて解析したところ,内部にミトコンドリアを含む多様な大きさの細胞断片が観察された.これらの特徴は,PV-AEFの構造と整合していたため,本画分は,PV-AEFが高純度で含まれることが示唆された.

そこで,この単離精製したPV-AEF画分を用いて,データ非依存的取得(DIA)質量分析データを解析するソフトウェアDIA-NN(data-independent acquisition–neural network)により,超高感度プロテオーム解析を行った.GO(gene ontology)解析から,単離精製したPV-AEFは,ミトコンドリア関連タンパク質が強くエンリッチしており,核タンパク質が著しく減少していたこと,さらに既報のPV-AEF関連タンパク質が検出されていたことから,PV-AEFが高い純度で効率的に回収されていることが示唆された.そこで,これらのタンパク質リストから細胞接着分子に注目し,PV-AEFにエンリッチしていたNectin-2δ,Kirrel2,Podoplaninを候補として選び,その局在を詳細に解析した.

その結果,Nectin-2δおよびPodoplaninは,主に動脈・細動脈および静脈・細静脈の血管周囲に局在しており,毛細血管領域ではほとんど認められなかった.一方,Kirrel2は,主に動脈・細動脈の血管周囲に局在し,毛細血管や静脈・細静脈ではほとんど認められなかった.これらの三つの分子は,いずれもGFAPと共局在していたことから,少なくともPV-AEFに局在することが明らかになった.さらに,単離精製したPV-AEFの解析により,これらの分子はいずれも比較的大きなサイズのPV-AEFに優先的に局在することが明らかとなり,本結果は,脳血管領域ごとのPV-AEFサイズと分子局在パターンの関係と整合した.対照的に,AQP4は,これまでの報告と一致して,ほぼすべての脳血管領域に広く分布しており,脳血管領域による差は認められなかった.

PV-AEFにおけるKirrel2の機能を調べるために,アストロサイトにKirrel2を過剰発現させて細胞凝集アッセイを行ったところ,Kirrel2の過剰発現により細胞の凝集が有意に促進した.この結果から,Kirrel2はPV-AEF間の接着に関与する分子であることが示唆された.

以上より,PV-AEFは均一な構造体ではなく,脳血管領域ごとに異なるサイズと分子的構成を有することが示された11)(図2B).

4. おわりに

これまで,PV-AEFの構成因子に関する研究は,主として個別の分子に着目した解析に依存しており,その全体像を体系的に捉えることは困難であった.本稿で紹介したPV-AEFの新規単離精製法は,生化学的にPV-AEFを回収することを可能にし,その構成分子を包括的に解析するための有効なアプローチを提供した点に大きな意義がある.実際,本手法により,PV-AEFに局在する新規の細胞接着分子が同定されるとともに,PV-AEFが脳血管領域ごとに異なるサイズと分子構成を有することが明らかになった11).これらの知見は,動脈・細動脈・毛細血管・細静脈・静脈といった脳血管領域ごとに異なる血管構造の違いに対応して,PV-AEFが固有の分子基盤を備えていることを示唆し,BBBが脳血管領域に応じて多様な機能特性を示すことを支持する.ごく最近では,アストロサイト特異的にTurboIDを用いた近接ビオチン化標識を行い,in vivoでプロテオーム解析を可能にした手法も報告され,PV-AEFと内皮細胞との相互作用の一端が明らかにされた14).今後,こうした解析手法によって,PV-AEFの構成分子や,脳血管周囲の細胞との細胞間コミュニケーション,さらにはNVUの機能制御機構について,より多角的な理解が進むことが期待される.また,脳の領域によって血管透過性が異なることも知られており15),今後,脳領域特異的なPV-AEFの構成分子や機能的特徴を明らかにすることで,脳領域特異的に発症・進展する脳神経疾患の病態理解にもつながる可能性がある.

このように,PV-AEFに着目した研究は,BBBを動的に制御される境界である“blood–brain borders”として捉え,その制御機構を分子レベルで解明する上で重要な鍵となる.さらに,NVUを構成する細胞間相互作用の理解を深めるとともに,脳血管機能の破綻が関与する脳神経疾患の病態解明や,新たな予防・治療戦略の創出につながることが期待される.

謝辞Acknowledgments

本研究は,神戸大学大学院医学研究科病態シグナル学分野の高井義美特命教授のご指導のもと実施しました.生化学の基礎から研究の遂行,論文作成に至るまで,多大なるご指導とご鞭撻を賜りましたことに深く感謝申し上げます.また,同研究室の水谷清人特命准教授(現・徳島大学先端酵素学研究所教授)をはじめ,教室員の皆様には,研究の遂行にあたり多くのご支援と貴重なご助言をいただきました.電子顕微鏡解析においては,順天堂大学の内山安男特命教授ならびに角田宗一郎准教授に,プロテオーム解析においては,医薬基盤・健康・栄養研究所の足立淳プロジェクトリーダーに多大なご協力をいただきました.ここに厚く御礼申し上げます.なお,本研究は,神戸大学大学院医学研究科に設置されたエーザイ株式会社との共同研究講座,病態シグナル学部門において実施しました.さらに本研究は,東京生化学研究会研究助成,科学技術振興機構(JST)ムーンショット型研究開発事業の支援を受けて行いました.ここに記して深く感謝申し上げます.

引用文献References

1) Cohen-Salmon, M., Guille, N., & Boulay, A.-C. (2025) Development of perivascular astrocyte processes. Front. Neurosci., 19, 1585340.

2) Díaz-Castro, B., Robel, S., & Mishra, A. (2023) Astrocyte endfeet in brain function and pathology: Open questions. Annu. Rev. Neurosci., 46, 101–121.

3) Iadecola, C. (2004) Neurovascular regulation in the normal brain and in Alzheimer’s disease. Nat. Rev. Neurosci., 5, 347–360.

4) Heithoff, B.P., George, K.K., Phares, A.N., Zuidhoek, I.A., Munoz-Ballester, C., & Robel, S. (2021) Astrocytes are necessary for blood–brain barrier maintenance in the adult mouse brain. Glia, 69, 436–472.

5) Badaut, J., Ghersi-Egea, J.-F., Thorne, R.G., & Konsman, J.P. (2024) Blood–brain borders: A proposal to address limitations of historical blood–brain barrier terminology. Fluids Barriers CNS, 21, 3.

6) Wang, M.X., Ray, L., Tanaka, K.F., Iliff, J.J., & Heys, J. (2021) Varying perivascular astroglial endfoot dimensions along the vascular tree maintain perivascular-interstitial flux through the cortical mantle. Glia, 69, 715–728.

7) Kubotera, H., Ikeshima-Kataoka, H., Hatashita, Y., Mascaro, A.L.A., Pavone, F.S., & Inoue, T. (2019) Astrocytic endfeet re-cover blood vessels after removal by laser ablation. Sci. Rep., 9, 1263.

8) Boulay, A.-C., Saubaméa, B., Adam, N., Chasseigneaux, S., Mazaré, N., Gilbert, A., Bahin, M., Bastianelli, L., Blugeon, C., Perrin, S., et al. (2017) Translation in astrocyte distal processes sets molecular heterogeneity at the gliovascular interface. Cell Discov., 3, 17005.

9) Vanlandewijck, M., He, L., Mäe, M.A., Andrae, J., Ando, K., Gaudio, F.D., Nahar, K., Lebouvier, T., Laviña, B., Gouveia, L., et al. (2018) A molecular atlas of cell types and zonation in the brain vasculature. Nature, 554, 475–480.

10) Schaeffer, S. & Iadecola, C. (2021) Revisiting the neurovascular unit. Nat. Neurosci., 24, 1198–1209.

11) Kameyama, T., Miyata, M., Shiotani, H., Adachi, J., Kakuta, S., Uchiyama, Y., Mizutani, K., & Takai, Y. (2023) Heterogeneity of perivascular astrocyte endfeet depending on vascular regions in the mouse brain. iScience, 26, 108010.

12) Yousif, S., Marie-Claire, C., Roux, F., Scherrmann, J.-M., & Declèves, X. (2007) Expression of drug transporters at the blood–brain barrier using an optimized isolated rat brain microvessel strategy. Brain Res., 1134, 1–11.

13) Chun, H.B., Scott, M., Niessen, S., Hoover, H., Baird, A., Yates, J. 3rd, Torbett, B.E., & Eliceiri, B.P. (2011) The proteome of mouse brain microvessel membranes and basal lamina. J. Cereb. Blood Flow Metab., 31, 2267–2281.

14) Hill, S.A., Bravo-Ferrer, I., Čiulkinytė, A., Ramos, N.P., Rossetti, I., Colvin, C., Beltran-Lobo, P., Parra-Pérez, C., Emelianova, K., Dando, O., et al. (2025) Molecular profiling of brain endothelial cell to astrocyte endfoot communication in mouse and human. Nat. Commun., 16, 9750.

15) Ueno, M., Akiguchi, I., Hosokawa, M., Kotani, H., Kanenishi, K., & Sakamoto, H. (2000) Blood–brain barrier permeability in the periventricular areas of the normal mouse brain. Acta Neuropathol., 99, 385–392.

著者紹介Author Profile

亀山 武志(かめやま たけし)

神戸大学大学院医学系研究科精神医学分野病態シグナル学部門 特命講師.博士(歯学).

略歴

2004年北海道大学歯学部卒業.09年博士(歯学)取得.09~18年北海道大学遺伝子病制御研究所(髙岡晃教研究室)にて自然免疫研究に従事.18年より神戸大学大学院医学研究科(高井義美研究室)に所属.

研究テーマと抱負

生化学的手法とプロテオーム解析を基盤として,脳血管の加齢性変化とそれに伴う機能破綻やレジリエンス低下の分子機構を解明し,神経変性疾患の予防・治療法の開発につなげたい.

ウェブサイト

https://researchmap.jp/kamel/

https://www.med.kobe-u.ac.jp/pathosig/

趣味

写真撮影,野鳥観察,旅行.

This page was created on 2026-03-17T12:31:03.15+09:00
This page was last modified on 2026-04-17T17:44:23.000+09:00


このサイトは(株)国際文献社によって運用されています。