Online ISSN: 2189-0544 Print ISSN: 0037-1017
公益社団法人日本生化学会 The Japanese Biochemical Society
Journal of Japanese Biochemical Society 98(2): 321-326 (2026)
doi:10.14952/SEIKAGAKU.2026.980321

みにれびゅうMini Review

植物の接木に関わるオートファジーAutophagy involved in plant grafting

1 名古屋大学生物機能開発利用研究センター生物産業創出研究室Laboratory of Bioindustry, Bioscience and Biotechnology Center, Nagoya University ◇ 〒464–8601 愛知県名古屋市千種区不老町 ◇ Furo-cho, Chikusa-ku, Nagoya, Aichi 464–8601, Japan

2 京都大学大学院理学研究科附属サイエンス連携探索センター地球と生命の共進化ユニットEarth-Life Coevolution Research Unit, Center for Science Adventure and Collaborative Research Advancement, Graduate School of Science, Kyoto University ◇ 〒606–8502 京都府京都市左京区北白川追分町 ◇ Oiwake-cho, Kitashirakawa, Sakyo-ku, Kyoto 606–8502, Japan

3 京都大学大学院理学研究科生物科学専攻分子植物科学講座Laboratory of Plant Physiology, Department of Botany, Division of Biological Science, Graduate School of Science, Kyoto University ◇ 〒606–8502 京都府京都市左京区北白川追分町 ◇ Oiwake-cho, Kitashirakawa, Sakyo-ku, Kyoto 606–8502, Japan

発行日:2026年4月25日Published: April 25, 2026
HTMLPDFEPUB3

1. はじめに

オートファジーは,細胞内物質を分解する真核生物に保存されたシステムである.このシステムは,細胞内物質の品質管理,物質やエネルギーの循環,発達やストレス応答に関わることがわかってきている1, 2).そのため,オートファジーの分子機構やその生理学的役割を明らかにすることは,生命現象の根幹を理解する上で重要である.

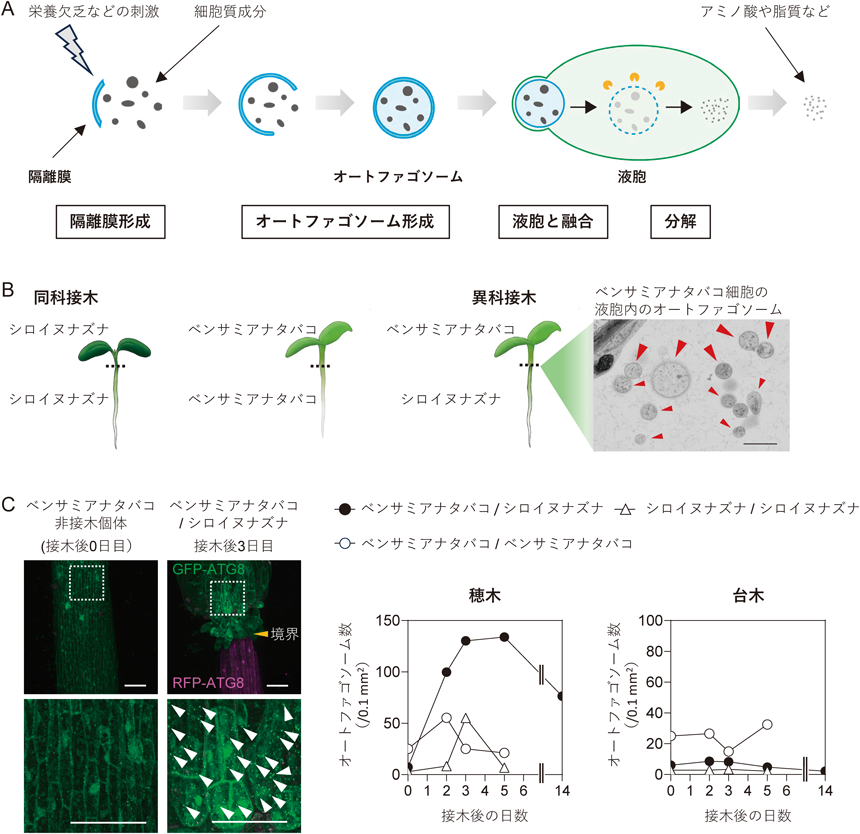
オートファジーは,細胞内物質が分解区画へ輸送される経路によって,マクロオートファジー,ミクロオートファジー,シャペロン介在性オートファジーの3種類に分けられる.主要な分解区画は,動物ではリソソーム,酵母や植物では液胞がその役割を担う.マクロオートファジーでは,脂質二重膜からなる隔離膜がタンパク質や細胞小器官などの細胞内物質を取り囲んで閉じ,オートファゴソームと呼ばれる小胞を形成する(図1A).オートファゴソームはその後,リソソームまたは液胞と外膜で膜融合し,内膜内の物質は輸送されて分解される.液胞内でみられる小胞状の構造体はオートファジックボディと呼ばれる.ミクロオートファジーでは,リソソームや液胞の単一膜が内腔側へ陥入し,細胞質を取り込んで分解する.この2種類のオートファジーは,真核生物に共通してみられる.一方,シャペロン介在性オートファジーは動物のみで報告され,シャペロンタンパク質が積み荷タンパク質に選択的に結合し,リソソーム膜上の受容体を介して積み荷が内部へ輸送されて分解される3).本稿では,植物のオートファジーに関する研究を紹介し,筆者らが直近で取り組んできた接木の傷害修復に関わるオートファジーに着目して解説する.

Journal of Japanese Biochemical Society 98(2): 321-326 (2026)

図1 接木はオートファジーを誘導する

(A)マクロオートファジーの経路の概略図.(B)同科接木と異科接木のイラスト(左).ベンサミアナタバコとシロイヌナズナの異科接木における電子顕微鏡画像(右).穂木側のベンサミアナタバコの細胞の液胞内にオートファジックボディがみられる(矢印).スケールは1 µm.(C)オートファゴソームのマーカー系統における蛍光画像[左下:破線四角(左上)を拡大].接木後に穂木側でオートファゴソーム(GFP-ATG8でラベル,矢印)の形成が増加する.スケールは100 µm.オートファゴソーム数(平均値)は,台木側では接木後に大きな変動がみられず,穂木側では同科接木の接木後2, 3日目に,異科接木では接木後2~14日目まで増加した(右).図はKurotani et al. (2025) Nat. Commun.より一部改変して使用.

2. 植物におけるオートファジー

植物では,一般的なマクロオートファジーとミクロオートファジーに加え,葉緑体を分解するクロロファジーなどの選択的オートファジー,さらには液胞の崩壊を伴うメガオートファジーといった植物特異的な経路が報告されている2).特に,マクロオートファジーのメカニズムに関わるオートファジー関連遺伝子(autophagy-related gene:ATG)は,真核生物間で高い相同性を示し,幅広く研究されている.植物は自ら動けないことから,多様な刺激や環境ストレスを受けやすく,オートファジーは成長や発達だけでなく,これらストレスへの適応応答にも機能する.

オートファジーは,植物ホルモン,免疫シグナル(非自己分子の認識),ダメージシグナル(傷害関連因子の認識)といった多様な刺激によって,活性化が誘導される4).傷害を受けた組織を構成する体細胞がカルス(未分化の細胞集団)を形成するリプログラミング過程は,植物ホルモンのオーキシンやサイトカイニンによって誘導される.この初期段階において,オートファジーは分化状態を特徴づけていた既存のプロテオームを分解することで,細胞が新たなプロテオームを再構築し,脱分化の進行を可能にする4).さらに,オートファジーはカルス形成後の再分化において,早期老化や細胞死を抑制することから,リプログラミングだけでなく,新しい状態に移行する際の細胞内物質の品質管理としても機能し,無秩序な細胞運命の決定を防ぐことも示唆されている4).

窒素栄養の欠乏条件下では,オートファジーが貯蔵タンパク質を分解することでアミノ酸や窒素を回収し,栄養の再配分や新たな成長を支える5).リン欠乏条件下では,根の分化領域でマクロオートファジーが誘導される.これはリン酸トランスポーターの分解を促進する調節タンパク質を分解することで,トランスポーターの安定性を維持し,リンの恒常性に寄与する可能性が示唆されている6).亜鉛過剰条件下では,副次的に生じる鉄欠乏に対し,オートファジーが細胞内物質に含まれる鉄のリサイクルを通じて,亜鉛と鉄のバランスを是正する7).また,オートファジーは強光に伴う酸化ストレスへの応答にも重要である.光損傷を受けた葉緑体を分解するクロロファジーが誘導され8),活性酸素種の発生源を除去することで細胞毒性を抑え,細胞の生存率を高める.

このように,オートファジーの役割は,単なる栄養のリサイクルにとどまらず,ストレスで細胞内に蓄積する有害な物質や機能不全となった細胞小器官の除去にも及ぶ.また,刺激に応じて,細胞内のプロテオームをリセット・調整する統合的な制御システムとしても機能する.

3. 接木

接木は二つの植物組織を切断面でつなぎ合わせる農業技術である.農業面では,病害抵抗性といった台木(根)の有する優良な形質を穂木側(地上部)の生育に活用し,生産性を向上させる利点がある.接木では,茎の切断による傷害に加えて,異なる植物体と接ぐことによる生理的不親和が生じる.接木の親和性は種が近い組合わせほど高く,系統関係が遠ざかるほど低下するといわれている.異なる科に属する植物どうしの接木(異科接木)は一般に不親和により組織が接着することはなく,穂木側の植物体が枯死することが知られてきた.しかし,筆者らの研究グループは,ベンサミアナタバコ(タバコ属植物の一種)や寄生植物などの一部の植物が,異なる科の植物とも例外的に接木を成立させる能力を発揮することを見いだした9, 10).接木は,接木部位におけるカルス形成,細胞接着,維管束組織の分化といった一連の傷害修復プロセスを経由して穂木と台木をつなげる11).ベンサミアナタバコを用いた異科接木では遠縁の組合わせの生理的親和性の低さという困難を乗り越える必要があるため,これらのプロセスが通常の接木に比べて顕著に高く活性化される傾向が認められる.そこで,未解明な点が多い接木の細胞内における傷害修復機構を探ることにした.

4. 接木はオートファジーを誘導する

オートファジーは,植物において窒素栄養欠乏時に誘導されることが報告されている7).接木では,茎の切断により台木側から穂木側への栄養供給が一時的に途絶するため,これが引き金となってオートファジーが誘導され,傷害修復に寄与する可能性がある.筆者らは,接木における傷害修復時の細胞動態を明らかにするため,親和性の高い組合わせとして同じ植物どうしの接木(同科接木)と,親和性が低く強いストレスにさらされる組合わせとしてナス科ベンサミアナタバコ(以下,タバコ)とアブラナ科シロイヌナズナ(以下,ナズナ)の異科接木を解析した(図1B).

はじめに,電子顕微鏡による観察を行ったところ,異科接木およびナズナまたはタバコそれぞれの同科接木において,接木境界付近の細胞の液胞内に,非接木個体と比較して多数のオートファジックボディが認められた(図1B)12).次に,オートファゴソーム数の経時的な変化を調べるため,マクロオートファジーの代表的なマーカータンパク質であるGFP-ATG8またはRFP-ATG8を発現させたタバコとナズナを用いて蛍光観察を行った(図1C)12).ATG8はオートファゴソーム膜上に局在し,オートファゴソームがドット状の蛍光シグナルとして観察される.異科接木では,穂木側のオートファゴソーム数がタバコ非接木個体と比較して接木後3日目まで増加し,14日目には減少するものの,高いレベルで維持された.台木側のオートファゴソーム数はナズナ非接木個体(接木後0日目)と大きな変動がなかったことから,異科接木においてオートファゴソームの形成は穂木側で誘導されることが示唆された.穂木側のオートファゴソーム数は同科接木でも,タバコとナズナそれぞれで接木後2日目,3日目に増加し,5日目には非接木個体と同程度に減少した.台木におけるオートファゴソーム数は,同科接木でも非接木個体と大きな変化は認められなかった.このことから,同科接木でも,オートファゴソームが穂木側で誘導されることが示唆された.さらに,強いストレスモデルである異科接木では,接木が成立する組合わせでもオートファゴソームが長期間にわたり形成されており,これは同科接木より傷害修復の期間が長く,オートファジーが継続的に活性化しているためと考えられる.

接木によるオートファゴソーム形成の誘導が示されたことから,次に,オートファゴソームの分解が誘導されるかを調べた.GFP-ATG8融合タンパク質では,オートファゴソームが液胞内で分解される際に,ATG8は分解される一方で,GFPは安定的な構造を有するため分解されにくく,遊離GFPが蓄積する.この性質を利用して,ナズナの同科接木後の遊離GFP量の変化をウェスタンブロット解析で調べた.その結果,遊離GFP量は接木後1日目から3日目まで上昇し,7日目でも高いレベルで保持されていた.これらのことから,接木はオートファジーの活性を誘導することが示された.

5. オートファジーは接木の成立と生育に寄与する

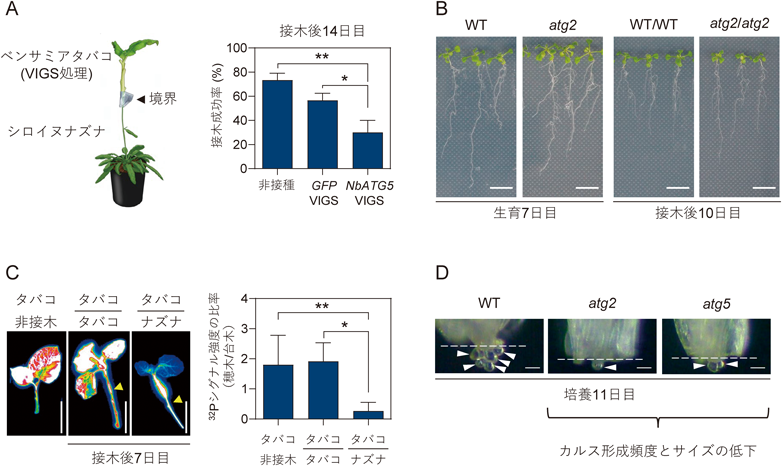
接木の成立におけるオートファジーの役割を検証するため,オートファジー関連遺伝子ATGの機能欠損変異体や発現抑制変異体を用い,2種類の接木モデルで解析を行った.植物のATGファミリーのうち,ATG2は小胞体から隔離膜への脂質輸送を仲介し,隔離膜の先端の融合・閉鎖によるオートファゴソームの形成に関与する13).また,ATG5はATG12と複合体を形成し,ATG8のリン脂質付加を促進することで,隔離膜の伸長に関与する14).異科接木の検証として,タバコにおいて,ATG5の発現レベルをウイルス誘導性ジーンサイレンシング(virus-induced gene silencing:VIGS)により抑制した個体(NbATG5 VIGS)を穂木とし,ナズナに接木した.その結果,ATG5の発現を抑制した個体での成功率は,ウイルス非接種個体や非標識遺伝子(GFP)を抑制した個体と比較して低下した(図2A)12).これは,オートファジーが,強いストレスを伴う異科接木において接木の成立に寄与することを示唆した.同科接木への寄与の検証として,ナズナのatg2変異体どうしを接木した場合,接木後の地上部の生育は,野生型どうしの接木と比較して低下した(図2B)12).これらの結果は,オートファジーがストレスの度合いにかかわらず,接木の成立と生育の両方に寄与することを示唆した.

Journal of Japanese Biochemical Society 98(2): 321-326 (2026)

図2 オートファジーは接木の成立に寄与する

(A)ベンサミアナタバコとシロイヌナズナの異科接木イラスト(左).タバコのATG5遺伝子の発現抑制(VIGS:ウイルス誘導ジーンサイレンシング)は,シロイヌナズナとの異科接木における成功率が低下する(右).*P<0.05, **P<0.01で有意差あり.(B)シロイヌナズナのatg2変異体の同科接木(atg2/atg2)では,穂木の生育が野生型の同科接木(WT/WT)より低下する.スケールは10 mm.(C)接木(矢印:境界)における放射性同位体32Pのシグナル検出(左).スケールは5 cm.ベンサミアナタバコ(タバコ)とシロイヌナズナ(ナズナ)の異科接木では,台木から穂木へのマストランスポート(32P指標)がタバコの同科接木より低下する(右).*P<0.05, **P<0.01で有意差あり.(D)炭素欠乏条件におけるシロイヌナズナのatg変異体のカルス形成.atg2変異体とatg5変異体では,栄養欠乏時に傷害誘導性(切断部位:破線)のカルス形成(矢印)が低下する.スケールは100 µm.図はKurotani et al. (2025) Nat. Commun.より一部改変して使用.

オートファジーは,栄養欠乏条件でも誘導されることから,接木時に誘導されるオートファジーも栄養欠乏が引き金になっている可能性が考えられた.そこで,台木から穂木への栄養移行性を,放射性同位体32Pで標識したリン酸を用いて,32Pのマスフローで評価した(図2C)12).タバコの同科接木では接木後7日目で32Pの移行性が回復したのに対し,タバコとナズナの異科接木では,移行性の回復が遅れた.これは,異科接木の穂木側では栄養欠乏状態が同科接木より長期間続いており,この状態はオートファゴソームの形成誘導が続いている結果と一致する.

接木では,穂木と台木の間にできるカルスが物理的な隙間を埋め,接木成立に寄与する11).オートファゴソームの形成が接木後2日目以降に高まることから,オートファジーは接木初期のカルス形成に寄与すると考えられる.栄養欠乏条件下でのカルス形成をナズナのatg2変異体およびatg5変異体を用いて調べた(図2D)12).暗条件で伸長させた胚軸を切断し,炭素や窒素が欠乏した条件で11日間培養したところ,atg2変異体およびatg5変異体はいずれも,野生型と比較してカルス形成頻度が低下し,サイズも小さかった.一方,これら変異体にカザミノ酸(遊離アミノ酸の混合物)を処理することで,カルス形成の低下が抑制された.この結果は,オートファジーが栄養欠乏条件下で,傷害によって誘導されるカルス形成にアミノ酸のリサイクルが必要であることを示している.このように,オートファジーは接木において新たなカルス形成を促進し,これを通じて接木の成立に寄与することが示唆された.

6. おわりに

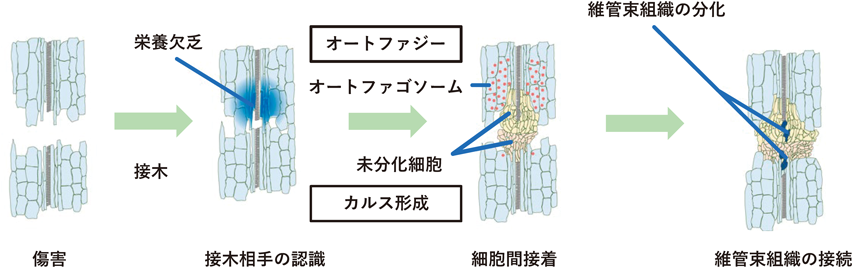
今回,接木の修復過程において,穂木側で生じる栄養欠乏がオートファゴソームの形成とオートファジーの活性化を誘導すること,そして,オートファジーが新たなカルス形成を促進し,接木の成立に寄与することを示した(図3)12).これは,接木の傷害修復機構における重要な生理現象の一端を明らかにした.接木の分子メカニズムの理解が進むことによって,接木技術のさらなる効率化や利用範囲の拡大を通じて,農業の持続性が高まることが期待される.オートファジーの関与は他の植物間の相互作用として,寄生植物が宿主植物へ寄生する際に,維管束の前形成層様細胞内でオートファジックボディが観察されている15).しかし,寄生および接木の組織修復におけるオートファジーに関わる植物ホルモンとの連携やオートファジー誘導の分子機構は未解明な点が多く,これらの詳細を今後明らかにする必要がある.

Journal of Japanese Biochemical Society 98(2): 321-326 (2026)

図3 接木における傷害修復のモデル図

接木は傷害により,穂木側では栄養欠乏を伴うとともに,接木相手を認識する.穂木側では傷害および栄養欠乏によりオートファゴソームが誘導され,オートファジーが活性化される.オートファジーの活性化によりカルス形成が誘導される.その後,カルスの維管束組織への分化が進み,穂木と台木間を維管束組織が接続することで接木が成立する.図はKurotani et al. (2025) Nat. Commun.より一部改変して使用.

謝辞Acknowledgments

本稿で紹介した筆者らの研究は,明治大学農学部の吉本光希教授,理化学研究所環境資源科学研究センターの豊岡公徳上級技師らの研究グループとの共同で進めた研究成果である.この場をかりて感謝申し上げたい.

引用文献References

1) Khandia, R., Dadar, M., Munjal, A., Dhama, K., Karthik, K., Tiwari, R., Yatoo, M.I., Iqbal, H.M.N., Singh, K.P., Joshi, S.K., et al. (2019) A comprehensive review of autophagy and its various roles in infectious, non-infectious, and lifestyle diseases: Current knowledge and prospects for disease prevention, novel drug design, and therapy. Cells, 8, 674.

2) Yagyu, M. & Yoshimoto, K. (2024) New insights into plant autophagy: Molecular mechanisms and roles in development and stress responses. J. Exp. Bot., 75, 1234–1251.

3) Kaushik, S. & Cuervo, A.M. (2018) The coming of age of chaperone-mediated autophagy. Nat. Rev. Mol. Cell Biol., 19, 365–381.

4) Rodriguez, E., Chevalier, J., Olsen, J., Ansbøl, J., Kapousidou, V., Zuo, Z., Svenning, S., Loefke, C., Koemeda, S., Drozdowskyj, P.S., et al. (2020) Autophagy mediates temporary reprogramming and dedifferentiation in plant somatic cells. EMBO J., 39, e103315.

5) Thompson, A.R., Doelling, J.H., Suttangkakul, A., & Vierstra, R.D. (2005) Autophagic nutrient recycling in Arabidopsis directed by the ATG8 and ATG12 conjugation pathways. Plant Physiol., 138, 2097–2110.

6) Chiu, C.Y., Lung, H.F., Chou, W.C., Lin, L.Y., Chow, H.X., Kuo, Y.H., Chien, P.S., Chiou, T.J., & Liu, T.Y. (2023) Autophagy-mediated phosphate homeostasis in Arabidopsis involves modulation of phosphate transporters. Plant Cell Physiol., 64, 519–535.

7) Shinozaki, D., Tanoi, K., & Yoshimoto, K. (2021) Optimal distribution of iron to sink organs via autophagy is important for tolerance to excess zinc in Arabidopsis. Plant Cell Physiol., 62, 515–527.

8) Nakamura, S., Hidema, J., Sakamoto, W., Ishida, H., & Izumi, M. (2018) Selective elimination of membrane-damaged chloroplasts via microautophagy. Plant Physiol., 177, 1007–1026.

9) Notaguchi, M., Kurotani, K.-I., Sato, Y., Tabata, R., Kawakatsu, Y., Okayasu, K., Sawai, Y., Okada, R., Asahina, M., Ichihashi, Y., et al. (2020) Cell-cell adhesion in plant grafting is facilitated by β-1,4-glucanases. Science, 369, 698–702.

10) Kurotani, K.-I., Wakatake, T., Ichihashi, Y., Okayasu, K., Sawai, Y., Ogawa, S., Cui, S., Suzuki, T., Shirasu, K., & Notaguchi, M. (2020) Host-parasite tissue adhesion by a secreted type of β-1,4-glucanase in the parasitic plant Phtheirospermum japonicum. Commun. Biol., 3, 407.

11) Feng, M., Augstein, F., Kareem, A., & Melnyk, C.W. (2024) Plant grafting: Molecular mechanisms and applications. Mol. Plant, 17, 75–91.

12) Kurotani, K.-I., Shinozaki, D., Okada, K., Tabata, R., Kawakatsu, Y., Sugita, R., Utsugi, Y., Okayasu, K., Mori, M., Tanoi, K., et al. (2025) Autophagy is induced during plant grafting to promote wound healing. Nat. Commun., 16, 3483.

13) Luo, M., Law, K.C., He, Y., Chung, K.K., Po, M.K., Feng, L., Chung, K.P., Gao, C., Zhuang, X., & Jiang, L. (2023) Arabidopsis AUTOPHAGY-RELATED2 is essential for ATG18a and ATG9 trafficking during autophagosome closure. Plant Physiol., 193, 304–321.

14) Le Bars, R., Marion, J., le Borgne, R., Satiat-Jeunemaitre, B., & Bianchi, M.W. (2014) ATG5 defines a phagophore domain connected to the endoplasmic reticulum during autophagosome formation in plants. Nat. Commun., 5, 4121.

15) Masumoto, N., Suzuki, Y., Cui, S., Wakazaki, M., Sato, M., Kumaishi, K., Shibata, A., Furuta, K.M., Ichihashi, Y., Shirasu, K., et al. (2021) Three-dimensional reconstructions of haustoria in two parasitic plant species in the Orobanchaceae. Plant Physiol., 185, 1429–1442.

著者紹介Author Profile

岡田 健太郎(おかだ けんたろう)

名古屋大学生物機能開発利用研究センター 特任助教.博士(バイオサイエンス).

略歴

2013年創価大学工学部卒業,21年奈良先端科学技術大学院大学先端科学技術研究科修了.博士(バイオイエンス)取得.名古屋大学生物機能開発利用研究センター研究員を経て,25年4月より現職.

研究テーマと抱負

植物が,環境や他の植物との相互作用によって,どのように適応してきたかについて研究している.植物間および植物と環境間の相互作用に共通する普遍的な適応メカニズムに迫りたい.

趣味

酒蔵巡り.

黒谷 賢一(くろたに けんいち)

京都大学大学院理学研究科サイエンス連携探索センター 准教授.博士(農学).

略歴

1995年京都大学農学部農林生物学科卒業,2002年同大学院農学研究科にて学位博士取得.奈良先端科大,京都大,名古屋大他での博士研究員,名古屋大での特任講師,特任准教授を経て,25年より現職.

研究テーマと抱負

植物の環境応答に興味を持ち,光環境,病傷害,環境ストレス等を植物がどのように受容,認識し,シグナルとして伝達して,どのような生理応答を示すか,またそれらの機構が進化的にどのように獲得されてきたかを明らかにしていきたい.

ウェブサイト

https://k96.coresv.com/CeEL/index.html

趣味

単車,マイコン工作,プログラミング,エレキベースなど.

野田口 理孝(のたぐち みちたか)

京都大学大学院理学研究科生物科学専攻分子植物科学講座 教授.博士(理学).

略歴

1980年東京都生まれ.2009年京都大学理学研究科卒業.カリフォルニア大学にて研究員(日本学術振興会海外特別研究員),名古屋大学にて助教(JSTさきがけ研究員,文科省卓越研究員)および准教授を経て,23年より現職.

研究テーマと抱負

植物の個体レベルの全身性シグナル伝達機構と,二つの植物をつなぐ接木の組織再生機構について研究している.環境変動による社会課題を克服するべく,研究成果を発展させることで農業と環境問題に貢献したい.

ウェブサイト

https://physiol2.bot.kyoto-u.ac.jp/HP3/index.html

趣味

読書,ジョギング.

This page was created on 2026-03-18T09:29:44.222+09:00
This page was last modified on 2026-04-17T17:50:19.000+09:00


このサイトは(株)国際文献社によって運用されています。