Online ISSN: 2189-0544 Print ISSN: 0037-1017
公益社団法人日本生化学会 The Japanese Biochemical Society
Journal of Japanese Biochemical Society 98(2): 327-331 (2026)
doi:10.14952/SEIKAGAKU.2026.980327

みにれびゅうMini Review

小胞体プロテオスタシスの多層制御機構Multilayered control of proteostasis in the endoplasmic reticulum

1 神戸大学大学院農学研究科Graduate School of Agricultural Science, Kobe University ◇ 〒657–8501 兵庫県神戸市灘区六甲台町1–1 ◇ Rokkodai-cho 1–1, Nada-ku, Kobe, Hyogo 657–8501, Japan

2 神戸大学バイオシグナル総合研究センターBiosignal Research Center Kobe University ◇ 〒657–8501 兵庫県神戸市灘区六甲台町1–1 ◇ Rokkodai-cho 1–1, Nada-ku, Kobe, Hyogo 657–8501, Japan

発行日:2026年4月25日Published: April 25, 2026
HTMLPDFEPUB3

1. はじめに

すべてのタンパク質の約3分の1は,小胞体(endoplasmic reticulum:ER)に結合したリボソーム上で合成される.新たに合成された分泌タンパク質および膜タンパク質は,翻訳後修飾とともに小胞体局在性の分子シャペロンの補助を受け,小胞体内で適切な三次元構造を獲得する.正しくフォールディングしたタンパク質のみが,分泌経路の次の区画であるゴルジ体へと進む.一方で,どうしても正しい構造形成ができないタンパク質は,小胞体から細胞質へ逆行輸送され,ユビキチン–プロテアソーム経路で分解される.この分解過程は小胞体関連分解と呼称される.このように小胞体は,正しい構造のタンパク質のみを次の区画へ送り出し,構造の悪いタンパク質を小胞体にとどめ出荷しないという機構を有す.これは工場の出荷用製品の品質管理になぞらえられ,「小胞体タンパク質品質管理機構」と呼ばれる1).

小胞体において,生合成されたタンパク質はフォールディングを促進する翻訳後修飾を受ける.これを担うのがフォールディング酵素であり,種々の酸化還元酵素により媒介されるジスルフィド結合形成や,オリゴ糖転移酵素による14糖(2.37 kDa)からなるN型糖鎖のAsn残基(Asn-X-Thr/Ser, XはPro以外の任意アミノ酸)への付加などがあげられる.小胞体で合成される約80%のタンパク質が有するN型糖鎖は,三つのグルコース,九つのマンノース,および二つのN-アセチルグルコサミン(Glc3Man9GlcNAc2)から構成され,G3M9と呼ばれる.N型糖鎖は凝集しやすいアミノ酸配列の近傍に付加されることでタンパク質凝集を直接抑制する保護機構としての役割を持つ2)とともに,その形状が,小胞体のレクチンシャペロンやレクチン分解因子によって読み取られ,タンパク質の立体構造形成と分解に大きく関与する.近年では,これがタンパク質の運命決定にも寄与していることが明らかになってきている.そしてこの小胞体タンパク質品質管理分野の最近の進展として,液液相分離がタンパク質品質管理に寄与することも明らかにされた.さらには,小胞体オートファジーも小胞体関連分解によって分解できないような凝集や基質の分解を行い,小胞体プロテオスタシスの維持に大きく貢献することも報告されている3, 4).本稿では,小胞体タンパク質品質管理機構に関連した研究の最前線について,筆者らの分野への貢献も合わせて紹介したい.

2. 小胞体のマンノース切除機構とその糖鎖形態の意義

N型糖鎖に付加された三つのグルコース残基は,まずグルコシダーゼIにより一つが除去され,その後グルコシダーゼIIにより残り二つが段階的にトリミングされる.グルコースが一残基となったGM9構造は,レクチンシャペロンであるCalnexin(CNX)またはCalreticulin(CRT)に認識され,基質糖タンパク質の構造形成が促される.さらにグルコースのトリミングが進みマンノースを九つ有するM9構造などになると,タンパク質が正しく立体構造を獲得した場合に限り,分泌経路へと進行する.一方,M9段階に至っても構造形成が完了していない場合,糖鎖はUDP-glucose:glycoprotein glucosyltransferase 1(UGGT1)によって再び一つのグルコースが付加される.これにより基質は再度CNX/CRTのターゲットとなり,折りたたみの再試行が行われる.この糖鎖修飾と品質チェックを伴う構造形成プロセスは,CNX/CRTサイクルと呼ばれる1).

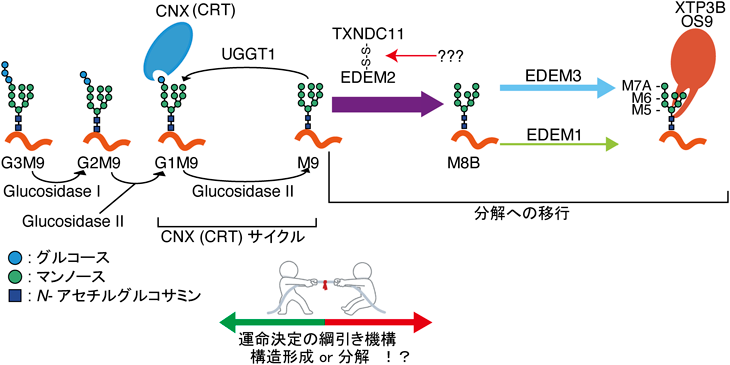
しかし,このサイクルによっても構造形成が達成されない糖タンパク質は,分解への運命をたどることになる.その際には,糖鎖のマンノース残基の切除が開始される.すなわち,マンノースのトリミングは,糖タンパク質を「構造形成の継続」から「分解への移行」へと導くためタンパク質の運命を決定する機構といえる.小胞体におけるマンノースのトリミング機構は,筆者らを中心に解かれてきた.2014年に,遺伝子破壊株を用いた解析によって,M9からM8BへはEDEM2が,M8BからM7・M6・M5へはEDEM3やEDEM1がトリミングするという新規マンノーストリミング機構を提案した(図1)5).しかし,EDEM2の単独の精製ではマンノシダーゼ酵素活性がないことが示されていたため,EDEM2のパートナー分子TXNDC11(Thioredoxin Domain Containing 11)を同定し,ジスルフィド結合によって両者が連結した安定的な複合体EDEM2-S-S-TXNDC11を精製することによって明確なin vitroマンノシダーゼ酵素活性を検出した6).また同様の手法を用いて,EDEM3, EDEM1のM8からM7・M6・M5へトリミングを行う,in vitro酵素活性も明確に示すことができた7).これらにより,近年では世界的にも筆者らが提唱した新規糖鎖トリミングモデルが支持されるようになってきた8).

Journal of Japanese Biochemical Society 98(2): 327-331 (2026)

図1 小胞体における糖鎖を中心としたタンパク質品質管理機構

M9からM8BへはEDEM2-S-S-TXNDC11が,M8BからはEDEM3, EDEM1がトリミングを行い,小胞体糖タンパク質を分解へと導く.この際,UGGT1, CNX(CRT)とEDEMファミリー間で基質の競合があり,構造形成に向かうか,分解へ向かうかというタンパク質の運命が決定される.またEDEM2-S-S-TXNDC11複合体形成がどのような因子によって触媒されるのか?など,今後の研究が待たれる.

3. UGGT1による分解抑制機構とタンパク質運命決定への影響

この上流のグルコース再付加酵素である構造形成因子UGGT1は,分解には関与しないことが報告されていた9).この報告では,小胞体膜上でドリコール結合型糖鎖前駆体に最初のグルコースを転移するグルコース転移酵素であるALG6を欠損させたALG6-KO細胞[その結果,グルコースを欠いたM9型糖鎖(Glc0Man9GlcNAc2)のみが新生タンパク質に付加される]とグルコシダーゼの阻害剤であるデオキシノジリマイシンを組み合わせた手法を用いていたが,ALG6-KO細胞では完全長の糖鎖が産生されないためか糖鎖付加も一部非効率的であり,薬剤も用いる特殊な条件下では,解釈には制限がある可能性があると考えた.そこで,筆者らはこれを直接的に証明するためにUGGT1-KO細胞を作製し,UGGT1が分解に関与するかを調べた.その結果,UGGT1-KO細胞では,不安定な糖タンパク質ATF6の分解が加速されることを見いだした.つまりUGGT1はATF6の分解を抑制していることが支持された.さらにUGGT1がどのような基質の分解を抑制しているか調べると,糖タンパク質Grp170, Sil1,非糖タンパク質CRTのように分解速度が遅く安定的に存在する分子の分解は抑制せず,C末端がトランケートされる遺伝的変異により構造異常タンパク質となった分解基質NHKの分解を抑制することがわかった.またRibophorin Iは安定的に存在しUGGT1の分解抑制効果を受けないが,Ribophorin Iを一部削った基質RI332は,UGGT1-KO細胞において分解が加速されることがわかり,UGGT1が分解抑制に関与していることが示唆された.同様にEMC1全長の半減期にはUGGT1が関わらないが,そのドメインを一部削ったEMC1-ΔPQQでは,UGGT1が分解抑制効果を示した.これらより,分解速度の遅いタンパク質は,UGGT1の有無にかかわらず安定的に存在するが,小胞体関連分解基質のような不安定なタンパク質は,UGGT1により分解が抑制されていることがわかった10).ただしUGGT1のパラログであるUGGT2に関しては,使用したHCT116細胞における遺伝子破壊株では,上記いずれのタンパク質品質管理への貢献も確認できなかった.Hungらの報告にあるようにUGGT2は脂質恒常性に寄与している可能性も考えられる11).

上述のようにUGGT1-KOではNHKの分解が加速するが,UGGT1のみの過剰発現では分解抑制効果は得られなかった.UGGT1に加えてCNXを過剰発現すると,NHKの分解抑制効果が得られた.過去の報告のとおりEDEMファミリーを過剰発現するとNHKの分解が促進するが12),これと拮抗するUGGT1+CNXを同時に発現させると,EDEMファミリーの分解促進効果が打ち消された.これらにより,小胞体の糖タンパク質の運命は,構造形成因子と分解因子の綱引きによって決定されることが支持された10).

4. 液液相分離による小胞体タンパク質品質管理

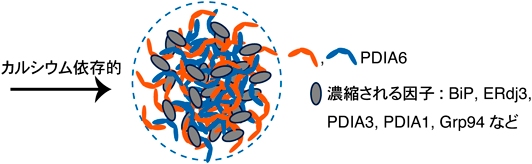
小胞体内のタンパク質品質管理として液液相分離が機能することはこれまで報告されていなかったが,最近,東北大学の奥村ら13)およびバーゼル大学のHillerら14)の二つの研究グループによって,PDIA6を中心とする小胞体タンパク質品質管理顆粒が形成されることが示され,小胞体腔内における品質管理の様式に新たな要素が加わった(図2).この顆粒では,Ca2+依存性にPDIA6二量体が弱くかつ特異的に相互作用することで形成されることが示された.この顆粒に関して,奥村らは,主として構造形成因子であるPDIA3を中心に,一部PDIA1, BiPが取り込まれていることを示している.一方,Hillerらは,BiP, ERdj3, PDIA1, Grp94などからなる別の構造形成因子群の存在を報告している(CNXおよびCRTは入らない).面白いことに,PDIA6は,典型的な液液相分離を駆動する分子にみられるようなintrinsically disordered regionを持たない.これについて,Hillerらは,PDIA6のa0ドメインとaドメインの間に位置する柔軟なlinker配列が,分子間相互作用を仲介し,凝縮核として働くことを示している.一方で奥村らは,折りたたまれたドメイン(特にa0およびaドメイン)自体が十分に凝縮を駆動できるとしており興味深い.この液滴は可逆的であり,Ca2+枯渇や小胞体ストレス条件では速やかに消失するが,Ca2+環境の回復に伴い再形成される.さらに,このPDIA6タンパク質品質顆粒には折りたたみ途上のプロインスリンが選択的に取り込まれ,酸化的フォールディングが促進されるとともに,アミロイド様凝集が抑制される.これは,PDIA6タンパク質品質顆粒が単なるストレージや隔離の場ではなく,分泌前駆体が成熟するための場として機能することを意味している.またBiP自身も液液相分離に起因する液滴様構造を形成しうることが報告されており15),今後の小胞体内における相分離様構造とタンパク質品質管理のさらなる解明が待たれる.

Journal of Japanese Biochemical Society 98(2): 327-331 (2026)

図2 液液相分離によるタンパク質品質管理機構

PDIA6の二量体化しやすい構造が液液相分離の核形成の一因となる.これはカルシウム依存的に形成され,報告により若干の違いはあるが,BiP, ERdj3, PDIA3, PDIA1, Grp94などが高濃度に集積する(CNX, CRTは内包されない).

5. 小胞体のもう一つの分解系:小胞体オートファジー

小胞体オートファジー自体は,増加した小胞体膜がオートファゴソーム/リソソーム系を介して除去されることを示した1973年の古典的研究にさかのぼる3).しかし当時は,現象として観察されていただけであり,オートファジーの分子基盤や小胞体が偶発的に巻き込まれているのか,あるいは選択的に取り込まれるのかは不明であった.そして飢餓条件下で小胞体がオートファジー関連遺伝子依存的にオートファゴソームへ取り込まれ液胞へ輸送されることが明らかとなり,小胞体がオートファジーによって積極的に分解されることが分子レベルで実証された3).そしてここから大きな進展をもたらしたのが,酵母における小胞体オートファジー受容体Atg40の発見16),および高等動物におけるAtg40の機能的ホモログFAM134Bの発見である17).これらの知見により,小胞体はミトコンドリアやペルオキシソームと同様,専用の受容体により選択的にオートファジー輸送されるオルガネラであることが明確に示された.その後,研究が加速的に進み,飢餓条件下で主要な受容体として小胞体オートファジーを担うTEX26418)など,作動条件や機能特性の異なる多様な小胞体オートファジー受容体が同定された.さらなる詳細については,既報の総説を参照されたい3).

現在では,小胞体関連分解と小胞体オートファジーは互いに独立した経路ではなく,基質の性質や小胞体にかかる負荷に応じて機能を分担する補完的な関係にあると考えられている.小胞体関連分解は逆行輸送可能な比較的小型の分解基質の処理に適しているのに対し,巨大な凝集体や局所的で過剰な拡張といった構造的問題に対しては,小胞体オートファジーが優先的に作動する3).実際に,SEL1L–HRD1複合体を中心とする主要な小胞体関連分解経路は,ミスフォールドタンパク質の分解を担うことで小胞体オートファジーの活性化を抑制しており,この経路が障害されると,ミスフォールドタンパク質を含む小胞体断片が形成され,小胞体オートファジーによって除去されることが報告されている4).このような小胞体関連分解と小胞体オートファジー間の連携の一端として,FAM134Bは小胞体関連分解に関与するE3ユビキチンリガーゼgp78のユビキチン化を受け,クラスター形成を介して小胞体オートファジー活性を制御することも報告された19).これらの知見を踏まえると,小胞体関連分解は分子単位での精密な品質管理を担うのに対し,小胞体オートファジーはオルガネラ単位での恒常性維持を担うことで,両者は階層的かつ協調的に小胞体のプロテオスタシスを支えていると理解できる.すなわち,小胞体関連分解による選択的な分解が第一線として機能し,それを小胞体オートファジーが補完することで,細胞は多様な小胞体ストレス条件に柔軟に対応していると考えられる.

6. おわりに

このように小胞体におけるタンパク質品質管理機構は多層的であり,その理解は近年急速に進展している.しかしその一方で,小胞体に局在し分泌経路へ進まないタンパク質がどのような基準で品質評価され,維持・修復・隔離・分解のいずれに振り分けられているのかという点については,依然として十分に理解されていない.さらに,小胞体で行われる品質管理が,細胞膜タンパク質の細胞表面発現や分泌タンパク質の細胞外発現効率に最終的にどの程度寄与しているか,その定量的・因果的理解もいまだ限定的である.これは,小胞体における品質管理が単なる局所的分子イベントではなく,細胞全体のタンパク質出荷・膜組成・分泌能にどう影響するか?という点で非常に重要である.そして,このような小胞体の理解は細胞恒常性維持機構の解明にとどまらず,分泌負荷疾患,免疫応答,神経変性疾患,再生医療,タンパク質医薬・生物製剤生産技術に直結するものであり,今後の応用的研究の発展が期待される.

引用文献References

1) Ninagawa, S., George, G., & Mori, K. (2020) Mechanisms of productive folding and endoplasmic reticulum-associated degradation of glycoproteins and non-glycoproteins. Biochim. Biophys. Acta, Gen. Subj., 1865, 129812.

2) Duran-Romana, R., Houben, B., De Vleeschouwer, M., Louros, N., Wilson, M.P., Matthijs, G., Schymkowitz, J., & Rousseau, F. (2024) N-glycosylation as a eukaryotic protective mechanism against protein aggregation. Sci. Adv., 10, eadk8173.

3) Wu, S.A., Li, Z.J., & Qi, L. (2025) Endoplasmic reticulum (ER) protein degradation by ER-associated degradation and ER-phagy. Trends Cell Biol., 35, 576–591.

4) Wu, S.A., Shen, C., Wei, X., Zhang, X., Wang, S., Chen, X., Torres, M., Lu, Y., Lin, L.L., Wang, H.H., et al. (2023) The mechanisms to dispose of misfolded proteins in the endoplasmic reticulum of adipocytes. Nat. Commun., 14, 3132.

5) Ninagawa, S., Okada, T., Sumitomo, Y., Kamiya, Y., Kato, K., Horimoto, S., Ishikawa, T., Takeda, S., Sakuma, T., Yamamoto, T., et al. (2014) EDEM2 initiates mammalian glycoprotein ERAD by catalyzing the first mannose trimming step. J. Cell Biol., 206, 347–356.

6) George, G., Ninagawa, S., Yagi, H., Saito, T., Ishikawa, T., Sakuma, T., Yamamoto, T., Imami, K., Ishihama, Y., Kato, K., et al. (2020) EDEM2 stably disulfide-bonded to TXNDC11 catalyzes the first mannose trimming step in mammalian glycoprotein ERAD. eLife, 9, e53455.

7) George, G., Ninagawa, S., Yagi, H., Furukawa, J.I., Hashii, N., Ishii-Watabe, A., Deng, Y., Matsushita, K., Ishikawa, T., Mamahit, Y.P., et al. (2021) Purified EDEM3 or EDEM1 alone produces determinant oligosaccharide structures from M8B in mammalian glycoprotein ERAD. eLife, 10, e70357.

8) Guay, K.P., Chou, W.C., Canniff, N.P., Paul, K.B., & Hebert, D.N. (2025) N-glycan-dependent protein maturation and quality control in the ER. Nat. Rev. Mol. Cell Biol., 26, 926–939.

9) Tannous, A., Patel, N., Tamura, T., & Hebert, D.N. (2015) Reglucosylation by UDP-glucose:glycoprotein glucosyltransferase 1 delays glycoprotein secretion but not degradation. Mol. Biol. Cell, 26, 390–405.

10) Ninagawa, S., Matsuo, M., Ying, D., Oshita, S., Aso, S., Matsushita, K., Taniguchi, M., Fueki, A., Yamashiro, M., Sugasawa, K., et al. (2024) UGGT1-mediated reglucosylation of N-glycan competes with ER-associated degradation of unstable and misfolded glycoproteins. eLife, 12, RP93117.

11) Hung, H.H., Nagatsuka, Y., Solda, T., Kodali, V.K., Iwabuchi, K., Kamiguchi, H., Kano, K., Matsuo, I., Ikeda, K., Kaufman, R.J., et al. (2022) Selective involvement of UGGT variant: UGGT2 in protecting mouse embryonic fibroblasts from saturated lipid-induced ER stress. Proc. Natl. Acad. Sci. USA, 119, e2214957119.

12) Mast, S.W., Diekman, K., Karaveg, K., Davis, A., Sifers, R.N., & Moremen, K.W. (2005) Human EDEM2, a novel homolog of family 47 glycosidases, is involved in ER-associated degradation of glycoproteins. Glycobiology, 15, 421–436.

13) Lee, Y.H., Saio, T., Watabe, M., Matsusaki, M., Kanemura, S., Lin, Y., Mannen, T., Kuramochi, T., Kamada, Y., Iuchi, K., et al. (2025) Ca(2+)-driven PDIA6 biomolecular condensation ensures proinsulin folding. Nat. Cell Biol., 27, 1952–1964.

14) Leder, A., Mas, G., Szentgyorgyi, V., Jakob, R.P., Maier, T., Spang, A., & Hiller, S. (2025) A multichaperone condensate enhances protein folding in the endoplasmic reticulum. Nat. Cell Biol., 27, 1422–1430.

15) Li, J., Zi, X., Fang, J., Liang, M., Ju, M., Sun, Z., Shen, B., & Zhang, X. (2025) Endoplasmic reticulum stress induces liquid-liquid phase separation of GRP78 and modulates protein aggregation dynamics. ACS Sens., 10, 4535–4543.

16) Mochida, K., Oikawa, Y., Kimura, Y., Kirisako, H., Hirano, H., Ohsumi, Y., & Nakatogawa, H. (2015) Receptor-mediated selective autophagy degrades the endoplasmic reticulum and the nucleus. Nature, 522, 359–362.

17) Khaminets, A., Heinrich, T., Mari, M., Grumati, P., Huebner, A.K., Akutsu, M., Liebmann, L., Stolz, A., Nietzsche, S., Koch, N., et al. (2015) Regulation of endoplasmic reticulum turnover by selective autophagy. Nature, 522, 354–358.

18) Chino, H., Hatta, T., Natsume, T., & Mizushima, N. (2019) Intrinsically disordered protein TEX264 mediates ER-phagy. Mol. Cell, 74, 909–921.e906.

19) Gonzalez, A., Covarrubias-Pinto, A., Bhaskara, R.M., Glogger, M., Kuncha, S.K., Xavier, A., Seemann, E., Misra, M., Hoffmann, M.E., Brauning, B., et al. (2023) Ubiquitination regulates ER-phagy and remodelling of endoplasmic reticulum. Nature, 618, 394–401.

著者紹介Author Profile

谷川 友亮(たにがわ ゆうすけ)

神戸大学大学院農学研究科博士課程前期課程2回生.学士(農学).

略歴

2003年大阪府生まれ.25年3月神戸大学農学部卒業.25年4月同大学院農学研究科博士前期課程入学.

研究テーマと抱負

EDEM2-TXNDC11複合体の精製系を利用した研究.タンパク質を上手く精製するために奮闘中.

趣味

登山,料理.

松尾 將生(まつお まさき)

神戸大学大学院農学研究科博士課程後期課程2回生.修士(農学).

略歴

2000年大阪府生まれ.23年神戸大学農学部卒業.23年同大学院農学研究科博士前期課程入学.25年同博士後期課程入学.

研究テーマと抱負

小胞体タンパク質品質管理機構において機能する因子の基質に関する研究.ウェットもドライもできる研究者を目指しています.

趣味

サイクリング,釣り.

蜷川 暁(にながわ さとし)

神戸大学バイオシグナル総合研究センター 准教授.博士(理学).

略歴

1981年岡山県生まれ.2005年京都大学理学部卒業.11年同大学院理学研究科において学位取得.21年神戸大学バイオシグナル総合研究センター助教.25年10月より現職.

研究テーマと抱負

小胞体におけるタンパク質品質管理機構を中心とした研究.分野を盛り上げるべく奮闘中.

ウェブサイト

https://www2.kobe-u.ac.jp/~ninagawa/index.html

趣味

サッカー,将棋.

This page was created on 2026-03-18T16:38:48.027+09:00
This page was last modified on 2026-04-17T17:56:06.000+09:00


このサイトは(株)国際文献社によって運用されています。