Online ISSN: 2189-0544 Print ISSN: 0037-1017
公益社団法人日本生化学会 The Japanese Biochemical Society
Journal of Japanese Biochemical Society 98(2): 332-337 (2026)
doi:10.14952/SEIKAGAKU.2026.980332

みにれびゅうMini Review

異常ミトコンドリア伝播を介した新たながん免疫逃避機構の解明Novel cancer immune evasion mechanism through abnormal mitochondrial Transfer

1 千葉大学大学院医学研究院呼吸器内科学Department of Respirology, Graduate School of Medicine, Chiba University ◇ 〒260–8670 千葉県千葉市中央区亥鼻1–8–1 医学系総合研究棟7階(728) ◇ 7F (728), Medical Research Building, 1–8–1 Inohana, Chuo-ku Chiba 260–8670, Japan

2 千葉県がんセンター研究所細胞治療開発研究部Division of Cell Therapy, Chiba Cancer Center Research Institute ◇ 〒260–8717 千葉県千葉市中央区仁戸名町666–2 ◇ 666–2 Nitona-cho, Chuo-ku, Chiba, Chiba 260–8717, Japan

3 岡山大学学術研究院医歯薬学域腫瘍微小環境学分野Department of Tumor Microenvironment, Faculty of Medicine, Dentistry and Pharmaceutical Sciences, Okayama University ◇ 〒700–8558 岡山県岡山市北区鹿田町2–5–1 ◇ 2–5–1 Shikata-cho, Kita-ku, Okayama 700–8558, Japan

発行日:2026年4月25日Published: April 25, 2026
HTMLPDFEPUB3

1. はじめに

がんに対する治療法は,細胞傷害性抗がん薬や分子標的薬に加え,免疫チェックポイント阻害薬(immune checkpoint inhibitor:ICI)の登場により大きな変革を遂げた.抗PD-1/PD-L1抗体に代表されるICIは,疲弊したT細胞の再活性化を促すことで抗腫瘍効果をもたらし,多くのがん種において標準治療の地位を確立している.しかしながら,一部の患者ではICI治療に反応せず,また初期には奏効してもやがて耐性を獲得する問題は依然として課題であり,この治療抵抗性の背景には,腫瘍微小環境(tumor microenvironment:TME)における複雑かつ多層的な免疫抑制ネットワークの存在がある1).TME内では,がん細胞,免疫細胞,線維芽細胞,血管内皮細胞などが密接に相互作用し,がんの生存に有利な環境を形成している2).特に低酸素や低グルコース,乳酸の蓄積といった過酷な環境は,腫瘍浸潤リンパ球(tumor-infiltrating lymphocyte:TIL)の代謝機能を著しく障害し,CD8陽性の細胞傷害性T細胞では抗腫瘍効果の機能維持に不可欠なミトコンドリア機能の障害を来すことが明らかになってきた3, 4).

ミトコンドリアは,酸化的リン酸化(OXPHOS)によるATP産生のみならず,生体分子合成,活性酸素種(ROS)を介したシグナル伝達,アポトーシス制御,カルシウム恒常性維持など,細胞の運命決定に関わる多様な機能を担う細胞小器官(オルガネラ)である5).従来,がん細胞のミトコンドリアは機能不全に陥っていると考えられてきたが,近年の知見によりがんはミトコンドリア代謝を活発に利用し,腫瘍の生存や転移,さらには免疫回避に積極的に関与させていることが再認識されている6).免疫細胞においても,活性化,分化,メモリー形成といった運命決定はミトコンドリアの機能やダイナミクスの変化によって制御されている7).

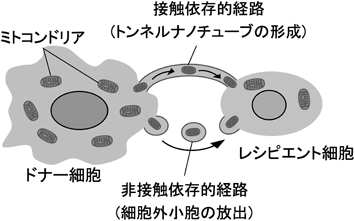
近年,ミトコンドリアそのものが細胞の境界を越えて移動する「細胞間ミトコンドリア伝播(mitochondrial transfer)」という現象が発見され,生命科学の分野で新たな細胞間コミュニケーションツールとして注目を集めている(図1).本稿では,ホットトピックである細胞間ミトコンドリア伝播の現象が,TMEでがんの進展や抗腫瘍免疫応答にどのような影響を及ぼすかを概説するとともに,我々が最近明らかにしたがんからTILへのミトコンドリア伝播によるがん免疫逃避機構8)についてその詳細を解説する.

Journal of Japanese Biochemical Society 98(2): 332-337 (2026)

図1 細胞間ミトコンドリア伝播の主要な経路

ミトコンドリアの細胞間移動は,受容細胞(レシピエント細胞)の代謝や機能を変化させる現象であり,その経路は主に二つに分類される.一つはトンネルナノチューブ(TNTs)を介した細胞接触依存的な経路であり,もう一つは細胞外小胞(EVs)を介した非接触依存的な経路である.

2. 細胞間ミトコンドリア伝播の歴史とメカニズム

細胞間でミトコンドリアが移動するという概念の萌芽は約40年前に遡り,酵母プロトプラストの融合や培養細胞へのマイクロインジェクションによって異種細胞間でミトコンドリアDNA(mtDNA)が移植可能であり,レシピエント細胞で機能しうることが報告された9, 10).しかし,これらは人為的な操作によるものであり,生理的条件下での自律的な移動の証明には至っていなかった.この分野に画期的なブレークスルーがもたらされたのは2006年のSpeesらによる報告であり,彼らはmtDNAを欠損させOXPHOS機能を失った増殖不能なヒト肺がん細胞株(ρ0細胞)をヒト骨髄由来間葉系幹細胞(BMSC)と共培養したところ,ρ0がん細胞がBMSCからミトコンドリアを受け取り,呼吸能を回復して再増殖することを見いだした11).この発見はミトコンドリア伝播が単なる現象論ではなく,損傷した細胞の機能を救済・回復させる生理的役割を持つことを示したものであった.以降,脳卒中後の神経細胞へのアストロサイトからのミトコンドリア供給や,心筋虚血時の間質細胞からの伝播など,多様な組織の修復や恒常性維持における重要性が次々と報告されている12).

ミトコンドリア伝播のメカニズムは,大きく「接触依存的」な経路と「非接触依存的」な経路に分類される(図1).接触依存的経路の代表がトンネルナノチューブ(tunneling nanotubes:TNTs)の形成である.TNTsはアクチンフィラメントによって構成される細胞間の微細な架橋構造であり,細胞質を連続させることで,ミトコンドリアを含むオルガネラや細胞質成分の直接的な往来を可能にする.TNTは,低酸素・炎症性サイトカイン・ROSの蓄積など,TMEに特徴的な環境ストレスによってその形成が強力に促進されることが知られており,TMEでは細胞間ミトコンドリア伝播がより活動的に生じうることが知られている13).一方,非接触依存的経路として注目されるのが細胞外小胞(extracellular vesicles:EVs)である.EVは細胞から分泌される脂質二重膜小胞であり,そのサイズや産生機構によってエクソソームとマイクロベシクルに分類される.近年の解析技術の進歩により,これらEVの中にミトコンドリアそのものや,その構成成分(mtDNA,関連タンパク質など)を内包することが確認され,注目されている.EVを介した伝播は,細胞が直接接触していない遠隔の細胞に対しても影響を及ぼしうる点で,TNTを介した伝播とは異なる生物学的意義を持つと考えられる12).

3. TMEにおけるミトコンドリア伝播の影響

実際にTMEで,がんはミトコンドリア伝播を自身の生存戦略として巧みに利用している.がんは周囲のBMSCやがん関連線維芽細胞(CAF)から健常なミトコンドリアを獲得することで,自身の代謝能力を増強し,化学療法に対する薬剤耐性を獲得することが報告されている14).また最近,Hooverらは乳がん細胞が神経細胞からミトコンドリアを獲得することで,OXPHOS機能や幹細胞性,抗酸化能を向上させ,その結果として転移能が増強されることを明らかにした15).実際にマウスモデルの肺や脳転移巣では,神経細胞由来ミトコンドリアを保持するがん細胞が濃縮されており,転移先という新たなニッチ環境への適応において,他細胞からのミトコンドリア獲得が重要な役割を担っていることが示された15).また,がんは周囲の免疫細胞からもミトコンドリアを奪取することで利益を得ているという報告もある.Sahaらは,がん細胞がTNTを介して細胞傷害性T細胞やNK細胞からミトコンドリアを奪い,自身の代謝を強化する一方で,免疫細胞のエネルギー産生を障害させて細胞障害活性を低下させることを明らかした16).このように,がん細胞はTME内の多様な細胞をドナーとして利用する代謝リプログラミングにより,増殖や転移,薬剤耐性といった悪性形質を能動的に獲得していることが明らかになりつつある.

4. がんのミトコンドリア伝播による抗腫瘍免疫応答の抑制

ミトコンドリア伝播は,がんの悪性化だけでなく,抗腫瘍免疫応答にも大きな影響を及ぼす.最近我々は,ヒトの臨床検体を用いて,がんが自身のmtDNA変異型ミトコンドリアをT細胞に伝播させることで,抗腫瘍免疫応答を抑制するというメカニズムを明らかにした8).

1)がんとTIL間でのmtDNA変異の共有とミトコンドリア伝播の実証

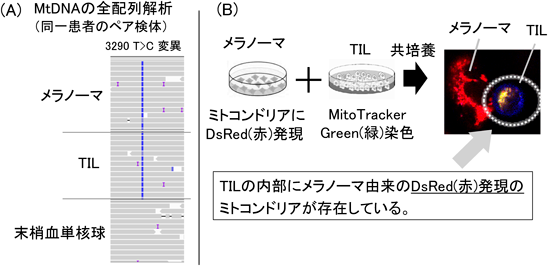
まず,我々は同一患者由来のがん細胞とTILのペア検体に対して網羅的なmtDNAシーケンス解析を行った.その結果,複数の症例においてがん細胞とTILが同一のmtDNA変異を共有していることが判明した(図2A).電子顕微鏡による観察でも,変異を共有する両細胞のミトコンドリアはクリステ構造が崩壊した異常形態を示しており,野生型mtDNAを持つ細胞群の正常な形態とは対照的であった.この現象は,培養細胞のみならず,ホルマリン固定パラフィン包埋(FFPE)腫瘍組織内でも確認されたことから,培養上のアーチファクトではなく,生体内で実際に起きている現象であることが示唆された.

Journal of Japanese Biochemical Society 98(2): 332-337 (2026)

図2 がん細胞とTILにおけるミトコンドリア共有の証明

(A)同一のメラノーマ患者から得られたがん細胞,腫瘍浸潤リンパ球(TIL),および末梢血単核球を用いてミトコンドリアDNA(mtDNA)の全配列解析を行った結果,がん細胞とTILにおいて共通のmtDNA変異が同定された.(B)ミトコンドリアを赤色蛍光タンパク質のMitoDsRedで標識したがん細胞とTILを共培養したところ,MitoDsRedを持つがん細胞由来のミトコンドリアがTILの内部に取り込まれている様子が観察され,直接的な伝播が確認された.

mtDNA変異が共有されるメカニズムを解明するため,我々はがん細胞からTILへのミトコンドリア伝播に着目した.がん細胞のミトコンドリアを赤色蛍光タンパク質(MitoDsRed)で標識し,T細胞と共培養してライブセルイメージングを行ったところ,共培養開始から24時間経過後,がん細胞からT細胞へとミトコンドリアが移動し,取り込まれる様子が観察された(図2B).この伝播経路の特定にあたり,接触依存性経路であるTNTsと,非接触依存性経路であるEVsの関与を検証した.アクチン重合阻害剤や物理的な隔壁を用いた実験によりTNTsの関与が示される一方,小型EV放出阻害剤(GW4869)を用いた実験などにより,小型EVsの関与も明らかになった.培養上清から単離した小型EVs内にミトコンドリア構成タンパク質が含まれていることも確認し,すなわち,がん細胞からのミトコンドリア伝播は,TNTsを介した直接接触と小型EVsを介した非接触経路の双方が独立して機能していることが示された.

2)mtDNAのホモプラスミー置換と成立機序

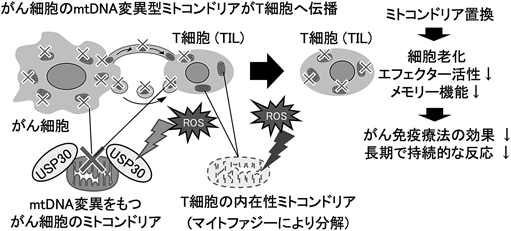
この伝播が一過性のものか,恒久的な遺伝的書き換えを伴うものかを検証するため,野生型mtDNAを持つTILと変異mtDNAを持つがん細胞を長期間共培養し,単一細胞レベルでのmtDNA解析を行った.その結果,培養15日後には一部のT細胞において,内在性の野生型mtDNAが完全に消失し,がん由来の変異型mtDNAに置き換わる「ホモプラスミー置換」が生じていることが確認された.この現象はマウスを用いたin vivoモデルでも再現された.この不可逆的な置換を可能にするメカニズムとして,ミトコンドリア品質管理機構であるマイトファジーが重要な役割を果たしていることが判明した.がん細胞由来のROSは,T細胞本来の正常ミトコンドリアに対してマイトファジーによる分解を促進する.一方で,がん細胞から伝播してくるミトコンドリアは,その外膜上に脱ユビキチン化酵素USP30を高発現しており,これがマイトファジー阻害因子として機能していた.つまり,がん由来のROSがT細胞の内在性ミトコンドリアを選択的に排除する一方で,USP30という「盾」を持つがん由来ミトコンドリアは分解を免れて蓄積し,最終的にT細胞内を占拠するという巧妙な置換モデルが明らかになった(図3).ただしこれらミトコンドリアの置換や維持の機序は,USP30ではまだ部分的にしか証明できていないと考えている.

Journal of Japanese Biochemical Society 98(2): 332-337 (2026)

図3 マイトファジーの回避によるミトコンドリア置換メカニズム

腫瘍微小環境(TME)における活性酸素種(ROS)は,TIL本来の内在性ミトコンドリアに対してマイトファジーによる分解を誘導する.その一方で,がん細胞から伝播したミトコンドリアは脱ユビキチン化酵素USP30を発現しており,これがマイトファジーへの耐性を付与する.この結果,分解を免れたがん由来ミトコンドリアのみが選択的にTIL内に蓄積し,最終的にミトコンドリアの置換が生じる.図中の×印はミトコンドリアDNA変異を保有する品質不良なミトコンドリアを表す意図.

3)変異ミトコンドリア獲得によるT細胞の機能不全

がんからのミトコンドリア伝播がTILの機能へ与える影響について解析したところ,がん由来のmtDNA変異型ミトコンドリアを獲得したTILは代謝異常と機能不全に陥ることが明らかになった.ドナーであるがん細胞と同様に,これらのTILではOXPHOSの低下と解糖系への依存,ミトコンドリア膜電位の低下,細胞内ROSの過剰産生が認められた.この酸化ストレスは細胞老化を誘導し,老化マーカー(β-ガラクトシダーゼ,p16, p53)の発現亢進や,炎症性サイトカインを放出する老化関連分泌表現型(SASP)の誘導を引き起こした.その結果,TILは増殖能を喪失し,アポトーシス感受性が高まるとともに,抗腫瘍免疫の要である活性化応答やセントラルメモリーT細胞への分化も障害された.

4)生体内での抗腫瘍免疫応答への影響と臨床的意義

マウスモデルを用いた検証では,変異型mtDNAを持つ腫瘍を移植されたマウスにおいて,ミトコンドリア伝播を受けたTILの老化,末期疲弊などの機能不全徴候が目立ち,抗PD-1抗体に対する治療抵抗性が認められた.しかし,EV放出阻害剤を用いてミトコンドリア伝播を抑制すると,TILの機能が回復し,ICIの効果も改善した.これは,がんからTILへのミトコンドリア伝播による免疫逃避機構が,ICI抵抗性の原因の一つであることを示唆している.最後に,ヒト臨床検体(メラノーマおよび非小細胞肺がん患者計181名)を用いた解析において,機能的なmtDNA変異を持つ患者群は,持たない群に比べてICI治療後の無増悪生存期間(PFS)および全生存期間(OS)が有意に短縮していることを明らかにした.この相関は化学療法群ではみられなかったことから,TMEにおけるmtDNA変異の有無は,ICI治療の効果を予測する有用なバイオマーカーとなりうることが示唆された.

5. 抗腫瘍免疫応答におけるミトコンドリア伝播の多面的な作用

我々はがんからT細胞へのミトコンドリア伝播が腫瘍免疫応答を抑制することを見いだした.一方で,ミトコンドリアのドナー細胞の種類によっては,ミトコンドリア伝播が抗腫瘍免疫応答を増強する可能性も明らかになりつつある.Baldwinらは,BMSCからCD8陽性T細胞へのミトコンドリア伝播がT細胞の抗腫瘍活性を増強することを報告している17).BMSC由来の健常なミトコンドリアを受け取ったT細胞は,予備呼吸能をはじめとするOXPHOS機能が向上し,疲弊しにくい幹細胞様の代謝プロファイルを獲得し,これによりTME内での生存能と細胞傷害活性が維持され,高い抗腫瘍効果を発揮した.この知見は,CAR-T療法などの養子免疫療法に応用可能なポジティブな現象と考えられる.

これら近年の報告は,ミトコンドリア伝播がTMEにおいて多面的で双方向的な役割を果たしていることを示唆している.特にドナー細胞の種類とミトコンドリアの品質という二つの要因により,T細胞の抗腫瘍免疫応答は,抑制と増強のどちらに導かれるかの影響を受ける.この複雑な制御機構の全容を解明していくことは,今後のミトコンドリア伝播を標的とした新規治療法開発において重要な課題であると考えられる.

6. おわりに—今後の学術的課題—

本稿ではTMEにおける細胞間ミトコンドリア伝播が,抗腫瘍免疫応答に対して多面的かつ重要な役割を果たしていることを概説した.かつて細胞内エネルギー工場とみなされてきたミトコンドリアは,細胞の境界を越えて移動して多様な影響を及ぼし,がんと免疫細胞間の生存競争を左右するシグナル伝達の中継点であることが明らかとなった.我々は,がんが自身の変異型ミトコンドリアをT細胞へ伝播させ,USP30を介してマイトファジーによる分解を回避させることで,T細胞を機能不全に陥らせる新たな免疫逃避機構を解明した.ただし,この現象の詳細を理解するためには,依然として解決すべき学術的課題は残されている.第一にミトコンドリアの伝播の方向性を規定する要因である.TME内では,がん細胞はドナーとなるだけでなく,BMSCや神経細胞,さらには免疫細胞からミトコンドリアを能動的に獲得,奪取する現象が報告されている.特定の細胞種間でなぜその方向の伝播が生じるのか,レシピエント側の代謝ストレスシグナルや,TNT形成に関わるモータータンパク質(Miro1など)の発現に伴う制御機構18)が存在している可能性など考えられるが未解明な課題であり,今後のさらなる検証が必要である.第二に,この現象の普遍性と生理的意義との関連である.ミトコンドリア伝播はがん特有の現象ではなく,脳卒中後におけるアストロサイトから神経細胞への供給や,心筋虚血時における間質細胞からの伝播など,正常組織の恒常性維持や修復機構としても報告されている.つまり普遍的に人体に備わっている生体機能である可能性があるが,TMEにおける現象ががん細胞によって改変された病的プロセスであると強調してよいかはさらなる検証が必要である.

また,受容細胞内におけるミトコンドリアの排除と維持のバランスを精密に制御する分子ネットワーク像の解明も依然として不十分であると考える.USP30はミトコンドリア外膜に局在する脱ユビキチン化酵素であり,本来はマイトファジーを抑制的に制御してミトコンドリアのプールを維持する機能を持つ19).USP30を介したミトコンドリア置換が他のあらゆるがん種や,あるいは損傷上皮細胞や老化細胞など他の病態でも同様に機能しているかは不明である.加えて,USP30だけではミトコンドリア置換や維持の機序を部分的にしか証明できておらず,受容細胞内におけるミトコンドリア排除と蓄積のバランスを決定する分子ネットワーク像の全容解明のためには,他の分子の関与も含めたさらなる研究の深化が必要である.一方で,正常な間質細胞からT細胞への健常なミトコンドリア供給は,抗腫瘍能力を向上させる.この事実は,ドナー細胞の種類やミトコンドリアの質といった条件の違いが免疫応答の方向性を決定づけることを示しており,これら多面的な作用の理解が今後の治療標的化の鍵となる.

近年ホットトピックとなった本分野はいまだ発展途上にあり,伝播メカニズムの全容解明や制御薬剤の開発,安全性の確立など課題は多い.しかし,ミトコンドリア伝播という新たな視点から微小環境を見つめ直し,細胞間オルガネラ動態の制御に基づく治療戦略を開発することは,がん薬物療法の効果を高め,患者に新たな希望をもたらすと期待される.

謝辞Acknowledgments

本稿で紹介した我々の研究成果は,千葉県がんセンター研究所の河津正人先生,竹永啓三先生をはじめとする多くの共同研究者の先生方,ならびに技術補佐員の方々のご尽力によるものです.また,貴重な臨床検体の解析にご協力いただいた千葉大学皮膚科の猪爪隆史教授や,岡山大学・千葉大学,その他多くの大学の先生方皆様,何より臨床検体をご提供くださった患者様とご家族様に感謝申し上げます.また科研費や各種財団等による研究費のサポートのおかげでこのような研究ができていることにも,この場をお借りして感謝申し上げます.

引用文献References

1) Nagasaki, J., Ishino, T., & Togashi, Y. (2022) Mechanisms of resistance to immune checkpoint inhibitors. Cancer Sci., 113, 3303–3312.

2) DePeaux, K. & Delgoffe, G.M. (2021) Metabolic barriers to cancer immunotherapy. Nat. Rev. Immunol., 21, 785–797.

3) Scharping, N.E., Menk, A.V., Moreci, R.S., Whetstone, R.D., Dadey, R.E., Watkins, S.C., Ferris, R.L., & Delgoffe, G.M. (2016) The tumor microenvironment represses T cell mitochondrial biogenesis to drive intratumoral T cell metabolic insufficiency and dysfunction. Immunity, 45, 374–388.

4) Reina-Campos, M., Scharping, N.E., & Goldrath, A.W. (2021) CD8+ T cell metabolism in infection and cancer. Nat. Rev. Immunol., 21, 718–738.

5) Spinelli, J.B. & Haigis, M.C. (2018) The multifaceted contributions of mitochondria to cellular metabolism. Nat. Cell Biol., 20, 745–754.

6) Wang, Y. & Patti, G.J. (2023) The Warburg effect: A signature of mitochondrial overload. Trends Cell Biol., 33, 1014–1020.

7) Weinberg, S.E., Sena, L.A., & Chandel, N.S. (2015) Mitochondria in the regulation of innate and adaptive immunity. Immunity, 42, 406–417.

8) Ikeda, H., Kawase, K., Nishi, T., Watanabe, T., Takenaga, K., Inozume, T., Ishino, T., Aki, S., Lin, J., Kawashima, S., et al. (2025) Immune evasion through mitochondrial transfer in the tumour microenvironment. Nature, 638, 225–236.

9) Fukuda, H. & Kimura, A. (1980) Transfer of mitochondria into protoplasts of Saccharomyces cerevisiae by mini-protoplast fusion. FEBS Lett., 113, 58–60.

10) Clark, M.A. & Shay, J.W. (1982) Mitochondrial transformation of mammalian cells. Nature, 295, 605–607.

11) Spees, J.L., Olson, S.D., Whitney, M.J., & Prockop, D.J. (2006) Mitochondrial transfer between cells can rescue aerobic respiration. Proc. Natl. Acad. Sci. USA, 103, 1283–1288.

12) Brestoff, J.R., Singh, K.K., Aquilano, K., Becker, L.B., Berridge, M.V., Boilard, E., Caicedo, A., Crewe, C., Enríquez, J.A., Gao, J., et al. (2025) Recommendations for mitochondria transfer and transplantation nomenclature and characterization. Nat. Metab., 7, 53–67.

13) Pinto, G., Brou, C., & Zurzolo, C. (2020) Tunneling nanotubes: The fuel of tumor progression? Trends Cancer, 6, 874–888.

14) Moschoi, R., Imbert, V., Nebout, M., Chiche, J., Mary, D., Prebet, T., Saland, E., Castellano, R., Pouyet, L., Collette, Y., et al. (2016) Protective mitochondrial transfer from bone marrow stromal cells to acute myeloid leukemic cells during chemotherapy. Blood, 128, 253–264.

15) Hoover, G., Gilbert, S., Curley, O., Obellianne, C., Lin, M.T., Hixson, W., Pierce, T.W., Andrews, J.F., Alexeyev, M.F., Ding, Y., et al. (2025) Nerve-to-cancer transfer of mitochondria during cancer metastasis. Nature, 644, 252–262.

16) Saha, T., Dash, C., Jayabalan, R., Khiste, S., Kulkarni, A., Kurmi, K., Mondal, J., Majumder, P.K., Bardia, A., Jang, H.L., et al. (2022) Intercellular nanotubes mediate mitochondrial trafficking between cancer and immune cells. Nat. Nanotechnol., 17, 98–106.

17) Baldwin, J.G., Heuser-Loy, C., Saha, T., Schelker, R.C., Slavkovic-Lukic, D., Strieder, N., Hernandez-Lopez, I., Rana, N., Barden, M., Mastrogiovanni, F., et al. (2024) Intercellular nanotube-mediated mitochondrial transfer enhances T cell metabolic fitness and antitumor efficacy. Cell, 187, 6614–6630.e6621.

18) Ahmad, T., Mukherjee, S., Pattnaik, B., Kumar, M., Singh, S., Rehman, R., Tiwari, B.K., Jha, K.A., Barhanpurkar, A.P., Wani, M.R., et al. (2014) Miro1 regulates intercellular mitochondrial transport & enhances mesenchymal stem cell rescue efficacy. EMBO J., 33, 994–1010.

19) Bingol, B., Tea, J.S., Phu, L., Reichelt, M., Bakalarski, C.E., Song, Q., Foreman, O., Kirkpatrick, D.S., & Sheng, M. (2014) The mitochondrial deubiquitinase USP30 opposes parkin-mediated mitophagy. Nature, 510, 370–375.

著者紹介Author Profile

池田 英樹(いけだ ひでき)

千葉大学大学院医学研究院呼吸器内科学 特任助教.博士(医学).

略歴

2015年千葉大学医学部医学科を卒業,呼吸器内科医の経験を経て21年に千葉大学大学院博士課程に進学,冨樫庸介先生ご指導のもと抗腫瘍免疫応答の研究に従事し,24年3月に大学院博士課程を早期修了.25年より現職.

研究テーマと抱負

これまでの研究を基盤に,酸化ストレスの強いがんや発がん過程の病態解明と治療予防を目指す.さらに慢性炎症・代謝疾患へ展開し,組織間ネットワークの視点から幅広い病態と生体機能の深い理解に挑みたい.

ウェブサイト

https://iaar.chiba-u.jp/belong/detail/belong61.html

趣味

ワイン,キャンプ,筋トレ,アニメ.

This page was created on 2026-03-18T17:33:06.927+09:00
This page was last modified on 2026-04-17T18:01:14.000+09:00


このサイトは(株)国際文献社によって運用されています。